摘要
Dirigent(DIR)蛋白在植物体内参与木质素和木脂素的生物合成过程,在植物生长发育和胁迫应答等过程中发挥重要作用。该研究在茶树(Camellia sinensis)全基因组中筛选到40个CsDIR基因,并对该基因家族的理化性质、系统进化树、保守基序、染色体定位、顺式作用元件结构特征和茶炭疽病胁迫下的基因表达模式进行分析。结果表明:(1)进化分析表明,CsDIR基因可分为3个亚家族,其启动子区域包含生长素、脱落酸、创伤和病原菌等响应元件。(2)蛋白结构及蛋白保守结构域分析表明,40个CsDIR蛋白均含有由8条反向平行β-折叠组成的β-桶。此外,39个CsDIR蛋白含有Dirigent结构域,1个CsDIR蛋白含有Dirigent superfamily结构域。(3)染色体定位及共线性分析结果表明,40个CsDIR基因分布在10条染色体和5个不同的Contig上,CsDIR基因家族中有12对串联重复基因和4对共线性基因。(4)茶炭疽病胁迫下12个CsDIR基因的表达模式分析表明,12个CsDIR基因均响应茶炭疽病胁迫。该研究结果为进一步研究DIR基因家族在茶树应对生物胁迫时的功能提供参考。
Abstract
Dirigent (DIR) proteins play crucial roles in lignin and lignan biosynthesis process, significantly influencing plant growth, development and stress responses. This study identified 40 CsDIR genes through genome-wide screening in Camellia sinensis, and analysed for physicochemical properties, phylogenetic tree, conserved motifs, chromosomal localization, cis-acting element structural features, and gene expression patterns of DIR gene family under tea anthracnose stress. The results were as follows: (1) Phylogenetic analysis showed that the CsDIR genes were divided into three subfamilies, and their promoter regions contained response elements for auxin, abscisic acid, wounding and pathogens. (2) Analysis of protein structures and protein conserved domains confirmed that 40 CsDIRs contained a β-barrel composed of eight antiparallel β-strands. In addition, 39 CsDIRs possessed a Dirigent domain, while one contained a Dirigent superfamily domain. (3) Results of chromosomal localization and collinearity analysis indicated that 40 CsDIR genes were distributed across 10 chromosomes and 5 distinct Contigs. Within CsDIR gene family, we identified 12 pairs of tandemly duplicated genes and 4 pairs of collinear genes. (4) Expression pattern analysis of 12 CsDIR genes under tea anthracnose stress demonstrated that all 12 CsDIR genes uniformly responded to tea anthracnose stress. This study provides a foundation for future research on the function of DIR gene family in response to biotic stresses in tea plants.
茶树(Camellia sinensis)是中国具有重要经济价值的多年生木本植物(吴应奇等,2023)。随着茶产业的持续发展,茶叶已跃居全球主要消费饮品之列(Farag et al., 2023)。茶树富含矿物质、糖类及氨基酸等初级代谢产物,此外还富含儿茶素等次级代谢物。这些化合物赋予茶树显著的抗菌活性、抗氧化能力及抗炎镇静等药用特性,不仅有益人体健康,还能通过激活防御机制增强植株对生物与非生物胁迫的抗性。作为典型的叶用经济作物,茶树真菌性叶部病害是导致其品质劣化与产量损失的主要原因之一,对优质茶叶生产构成持续性压力。其中,茶炭疽病作为茶树重要的叶部病害之一,在茶园生态系统中呈广域发生特征,对茶叶产能形成显著威胁(张玉丹等,2023)。茶树对生长环境的变化极为敏感,逆境会严重影响其生长发育及茶叶的产量和品质(徐晓寒等,2022)。
植物为应对生物和非生物胁迫,进化出一系列防御措施,包括氧化裂解、木脂素合成、木质素沉积和脱落酸、茉莉酸等信号途径等,以快速应对复杂的环境,减少损害并争取更多的生存资源(Zulfiqar & Ashraf, 2022)。Dirigent(DIR)基因编码的蛋白质在木质素合成过程中通过识别特定底物指导木脂素单体偶联形成二聚体,参与木质素的组装。然而,在木脂素合成过程中,DIR蛋白可指导镜像松柏醇偶联生成木脂素。DIR基因几乎存在于所有维管植物中,作为木质素和木脂素生物合成过程的重要调控因子来调节植物的抗逆反应(Mo et al., 2021)。例如,Shi等(2012)研究表明,棉花(Gossypium hirsutum)DIR家族基因GhDIR1在棉花中过表达会导致棉花木质素含量增加且提高了其对黄萎病菌(Verticillium dahliae)的抗性;大豆(Glycine max)接种大豆疫霉菌(Phytophthora sojae)后,GmDIR22的表达上调,与野生型相比,过表达GmDIR22的大豆木脂素总积累量显著增加,对大豆疫霉菌的抗性增强(Li et al., 2017);PnDIR1在三七(Panax notoginseng)中的过表达显著提高了参与木质素和木脂素生物合成相关基因的表达,并增强了三七对茄腐镰刀菌(Fusarium solani)的抗性(关瑞攀,2018);沉默辣椒(Capsicum annuum)CaDIR7基因降低了辣椒根系活性,削弱了辣椒的防御能力,导致辣椒对辣椒疫霉和盐胁迫的耐受性显著降低(Khan et al., 2018);玉米(Zea mays)中DIR家族基因ZmESBL的突变导致凯氏带受损,芽中Na+积累增加,并且由于内胚层凯氏带的低木质化而对盐胁迫的敏感性增强(Wang et al., 2022);复苏植物牛耳草(Boea hygrometrica)中BhDIR1基因能够迅速对干旱、冷害和高温等胁迫做出响应,还受乙烯(ethylene, ET)、脱落酸(abscisic acid, ABA)和水杨酸(salicylic acid, SA)等信号分子的调控(吴仁花等,2008);与未处理茉莉酸甲酯(methyl jasmonate, MeJA)的菘蓝(Isatis indigotica)相比,经MeJA处理后的菘蓝根中的IiDIR8、IiDIR9、IiDIR10和IiDIR16基因均有不同程度的表达,且IiDIR8和IiDIR9基因呈持续上调的趋势(Li et al., 2014)。综上可知,DIR基因在植物应对生物和非生物胁迫时起着重要的作用。
为了解茶树DIR基因(CsDIR)在茶树应对生物胁迫时的作用,本研究以茶树全基因组为材料,采用生物信息学方法和实时荧光定量 PCR 技术,对CsDIR基因家族进行全基因组鉴定、系统进化树、基因结构、保守结构域和基序、启动子顺式作用元件、种内和种间共线性及生物胁迫响应过程中的表达模式等分析,拟探讨以下问题:(1)CsDIR基因家族成员的理化性质;(2)CsDIR家族成员的基因和蛋白结构、蛋白保守结构域及保守基序分析;(3)CsDIR基因家族成员的染色体定位及其物种内和不同物种间的共线性分析;(4)CsDIR基因家族成员在茶炭疽病胁迫下的表达模式分析。本研究旨在为深入研究CsDIR基因的功能提供参考依据,也为培育茶树抗逆新品种提供重要基因资源。
1 材料与方法
1.1 材料
实验材料为‘黔茶1号’一年生茶树,生长于贵州大学茶学院人工气候室(贵州,贵阳)。培养条件为光照强度2 000 lx、培养温度(24±2) ℃、光照时长16 h/黑暗时长8 h,生长健康,无病虫害。所用茶树炭疽病菌为保种于贵州大学茶学院的围小丛壳菌(Glomerella cingulata)。
1.2 方法
1.2.1 CsDIR基因家族成员的鉴定和理化性质分析
从TPIA(http://tpdbtmp.shengxin.ren:81/web/Download)中获取茶树基因组数据。从Pfam数据库(http://pfam.xfam.org/)中获得DIR基因家族的HMM模型文件(PF03018)(Mistry et al., 2020),通过HMMER 3.0软件筛选茶树基因组中的CsDIRs作为初步候选蛋白(E-value<1e-5)(Finn et al., 2016)。在删除冗余序列后,利用在线工具Pfam(http://www.pfam.org/)、SMART(http://smart.embl-heidelberg.de/)对候选蛋白序列进行筛选,最终确定CsDIR基因家族的成员。通过ExPASy在线工具(http://web.expasy.org/protparam/)分析茶树DIR家族成员的蛋白质分子量、等电点和亲疏水性等理化特性(Artimo et al., 2012)。利用WoLF PSORT(https://wolfpsort.hgc.jp/)对CsDIRs进行亚细胞定位预测(Horton et al., 2007)。
1.2.2 进化树构建
利用MEGA 7.0软件邻接法(neighbor-joining, NJ)对茶树、毛果杨(Populus trichocarpa)、水稻(Oryza sativa)和拟南芥(Arabidopsis thaliana)的DIR家族成员的蛋白序列进行系统进化树构建,Bootstrap设置为1 000次重复。将生成的Newick文件上传至在线工具Evolview(https://evolgenius.info//evolview-v2/#login)作图。
1.2.3 蛋白高级结构及GO富集分析
利用Prabi在线分析软件secondary structure prediction模块的SOPMA(https://npsa-prabi.ibcp.fr/cgi-bin/npsa_automat.pl?page=/NPSA/npsa_sopma_f.html)预测茶树DIR家族蛋白的二级结构。利用在线工具SWISS-MODEL(https://swissmodel.expasy.org/)对茶树DIR家族蛋白的三级结构进行建模。利用EggNOG 5.0数据库(http://eggnog5.embl.de/#/app/home)对CsDIR基因进行GO功能富集分析,并用TBtools进行可视化。
1.2.4 基因结构、保守结构域及保守基序分析
利用在线工具MEME(http://meme-suite.org/)鉴定茶树DIR家族蛋白序列的保守基序,基序(motif)数量选择10(Bailey et al., 2006)。运用NCBI的Batch-CD-Search(https://www.ncbi.nlm.nih.gov/Structure/bwrpsb/bwrpsb.cgi)导出茶树DIR家族成员的保守结构域数据。使用TBtools对CsDIR基因内含子/外显子、保守结构域和保守基序进行可视化(Chen et al., 2020)。
1.2.5 种内和种间共线性分析及染色体定位
利用MCScanX(Wang et al., 2012)分析拟南芥和茶树及茶树自身具有默认参数的共线块,再利用TBtools对共线性文件进行分析,并用TBtools中的Advanced circos功能绘制茶树的种内和种间共线性图。利用TBtools软件对茶树DIR基因家族的染色体分布进行可视化。
1.2.6 CsDIR基因家族成员启动子顺式作用元件分析
提取CsDIR基因上游2 000 bp核酸序列,使用PlantCARE数据库(http://bioinformatics.psb.ugent.be/webtools/plantcare/html/)对启动子区域的顺式作用元件进行分析,将所得结果文件利用TBtools软件进行可视化。
1.2.7 CsDIR基因家族成员在茶树抗病过程中的分析
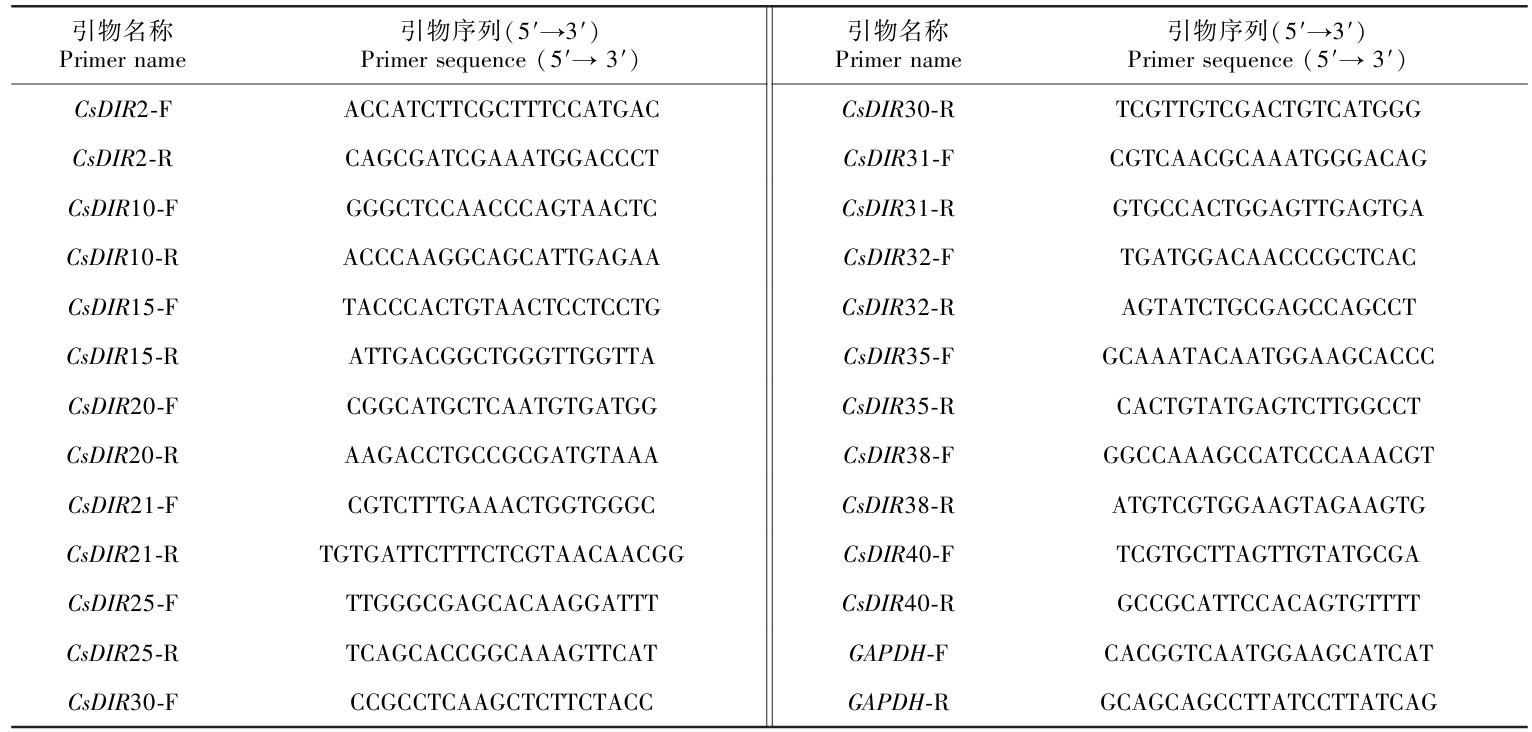
选取长势一致且健康的茶树上新生叶片,经75%酒精擦拭1次后再用无菌水冲洗3次,待叶片表面水分自然晾干后使用无菌刀片在叶片中部近叶缘区域制造人为伤口,将分离获得的茶炭疽菌菌丝块接种在叶片背面创伤位点,作为实验组。以未接菌处理的野生型为对照组。每个处理组均设置3个生物学重复。使用SteadyPure植物RNA提取试剂盒(湖南艾科瑞生物工程有限公司,AG21019)提取茶树叶片 RNA。使用反转录试剂盒(大连Takara,RR037A)将总RNA反转为cDNA,利用NCBI(https://www.ncbi.nlm.nih. gov/tools/primer-blast)分别设计实时荧光定量PCR(real-time quantitative PCR, qRT-PCR)引物(表1),内参为茶树GAPDH。使用SGExcel FastSYBR Mixture试剂盒 [生工生物工程(上海)股份有限公司,B532955]进行qRT-PCR分析,检测目的基因和内参基因Ct值,3个生物学重复。使用2-ΔΔCt计算相对表达量并进行分析,利用Excel 2019软件整理数据,使用SPSS 18软件进行数据的统计,并采用t-test进行差异显著性分析,运用GraphPad Prism 9.0软件制图。
表
1
实时荧光定量PCR(qRT-PCR)引物序列
Table
1
Primer sequence for real time quantitative PCR (qRT-PCR)
2 结果与分析
2.1 CsDIR基因家族成员的基本信息
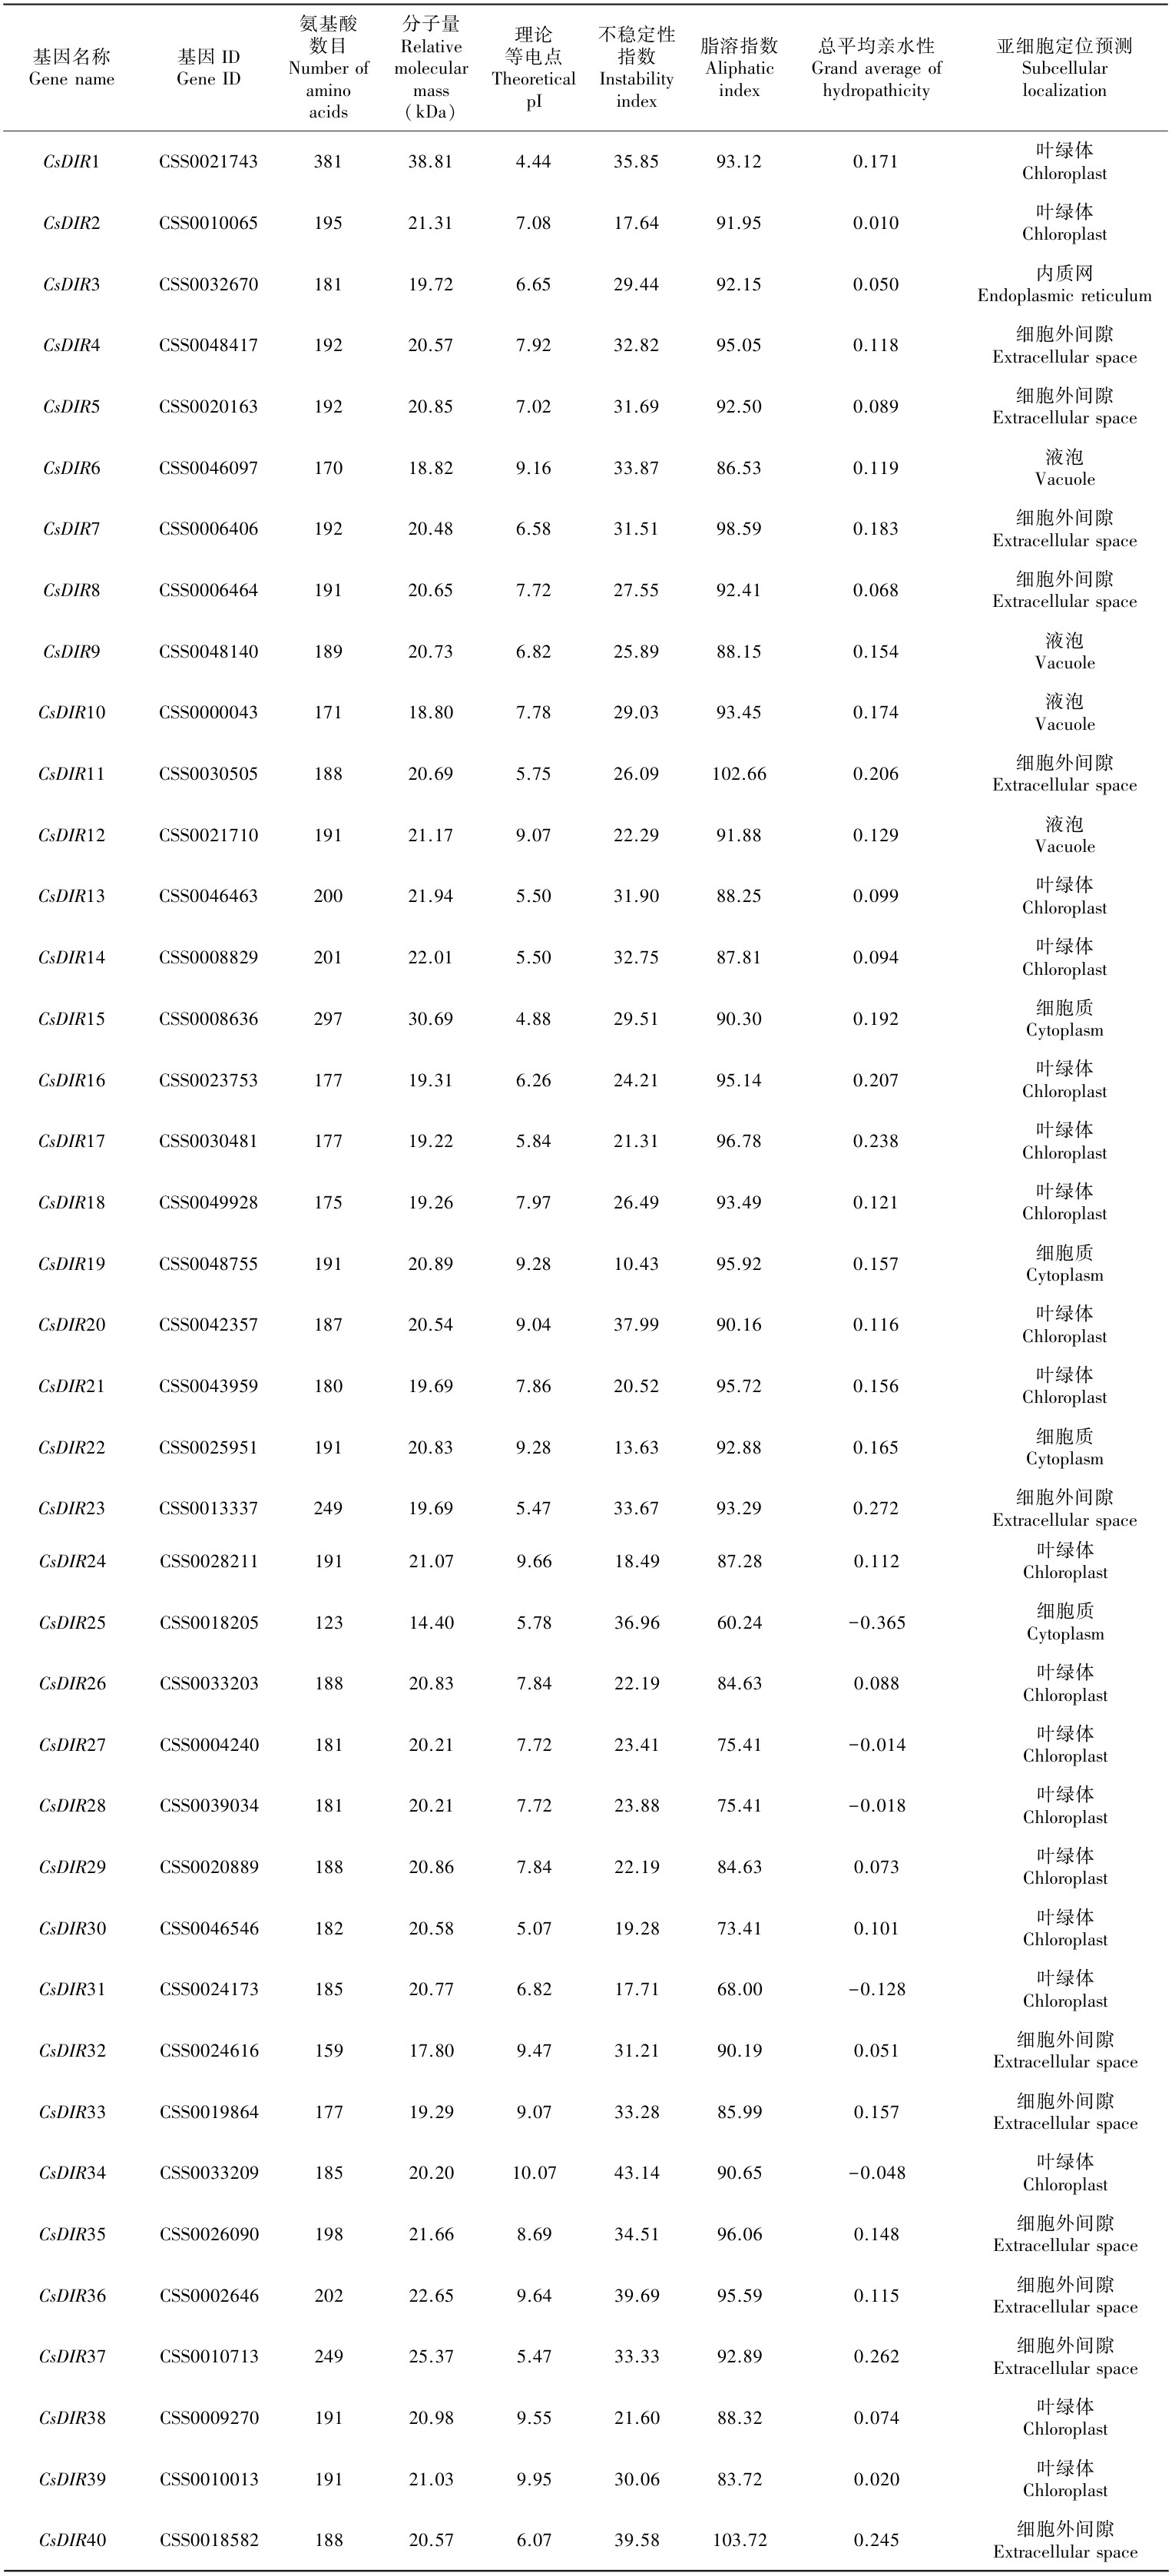
从茶树中筛选到40个DIR基因(表2)。根据各基因在染色体上的位置,依次命名为CsDIR1-CsDIR40。40个CsDIR基因编码的蛋白氨基酸长度为123(CsDIR25)~381(CsDIR1)个氨基酸,蛋白分子量为14.40 kDa(CsDIR25)~38.81 kDa(CsDIR1)。预测等电点范围为4.44(CsDIR1)~10.07(CsDIR34)。除CsDIR34属于不稳定蛋白(不稳定性指数大于40)以外,其余CsDIRs属于稳定蛋白。脂溶指数范围为60.24(CsDIR25)~103.72(CsDIR40)。大部分CsDIRs为疏水性蛋白,其中CsDIR25、CsDIR27、CsDIR28、CsDIR31和CsDIR34为亲水性蛋白。亚细胞定位预测大部分CsDIRs定位于叶绿体和细胞外间隙,少数定位于细胞质、液泡和内质网。
2.2 CsDIR家族系统进化分析
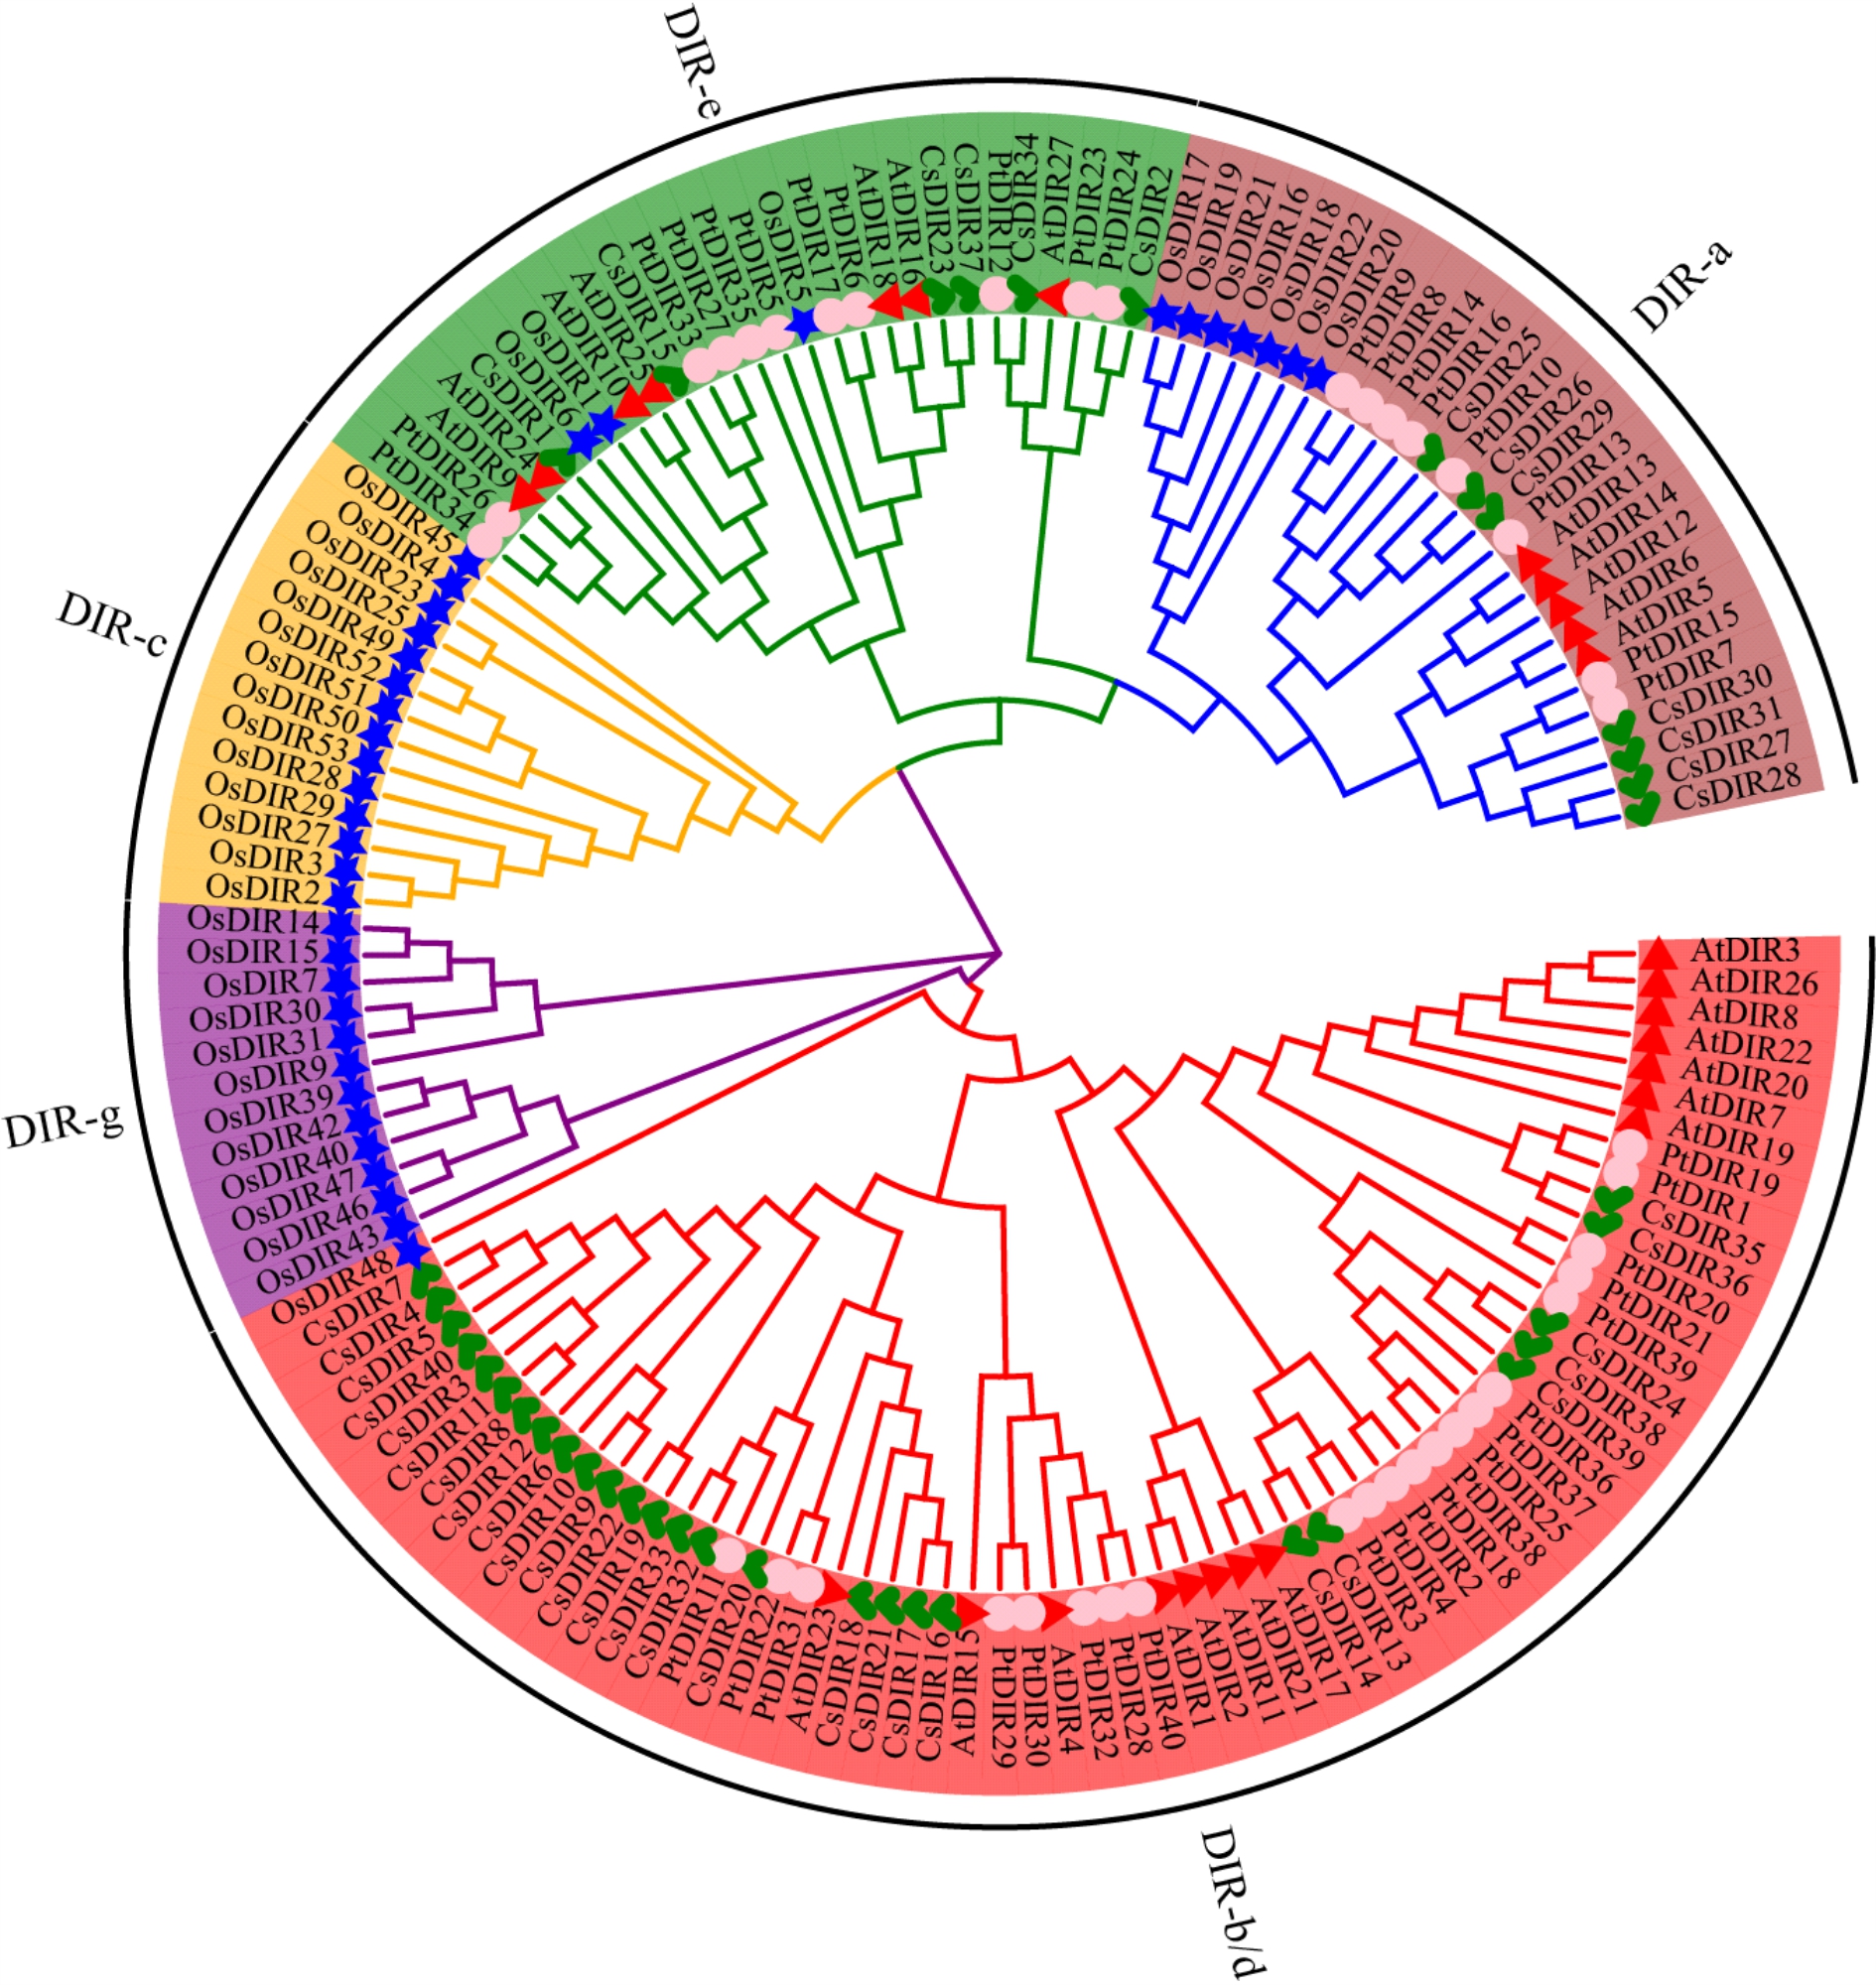
为探究茶树DIR基因家族成员的系统进化关系,利用拟南芥(27个)、水稻(37个)、毛果杨(40个)和茶树(40个)共144个DIR蛋白序列构建系统进化树。结果(图1)显示,DIR蛋白可分为5个亚族(DIR-a、DIR-b/d、DIR-c、DIR-e和DIR-g)。茶树DIR蛋白分布在DIR-a、DIR-b/d和DIR-e 3个亚族中,其中DIR-b/d亚族包含的CsDIR最多(27个),DIR-a亚族包含7个CsDIR,DIR-e亚族包含6个CsDIR。分析4个物种DIR家族蛋白的进化关系,发现茶树、拟南芥和毛果杨DIR蛋白仅在DIR-a、DIR-b/d和DIR-e 3个亚族中分布,而DIR-c和DIR-g仅包含来自单子叶植物水稻的DIR蛋白,这些结果表明植物DIR基因家族的进化伴随单、双子叶植物的分化出现明显的分歧。
表
2
CsDIR基因家族信息
Table
2
Information of CsDIR gene family
图
1
茶树(Cs)、毛果杨(Pt)、水稻(Os)与拟南芥(At)的DIR蛋白系统进化树
Fig.
1
Phylogenetic tree of DIR proteins of Camellia sinensis(Cs), Populus trichocarpa(Pt), Oryza sativa(Os) and Arabidopsis thaliana(At)
2.3 CsDIR蛋白高级结构分析
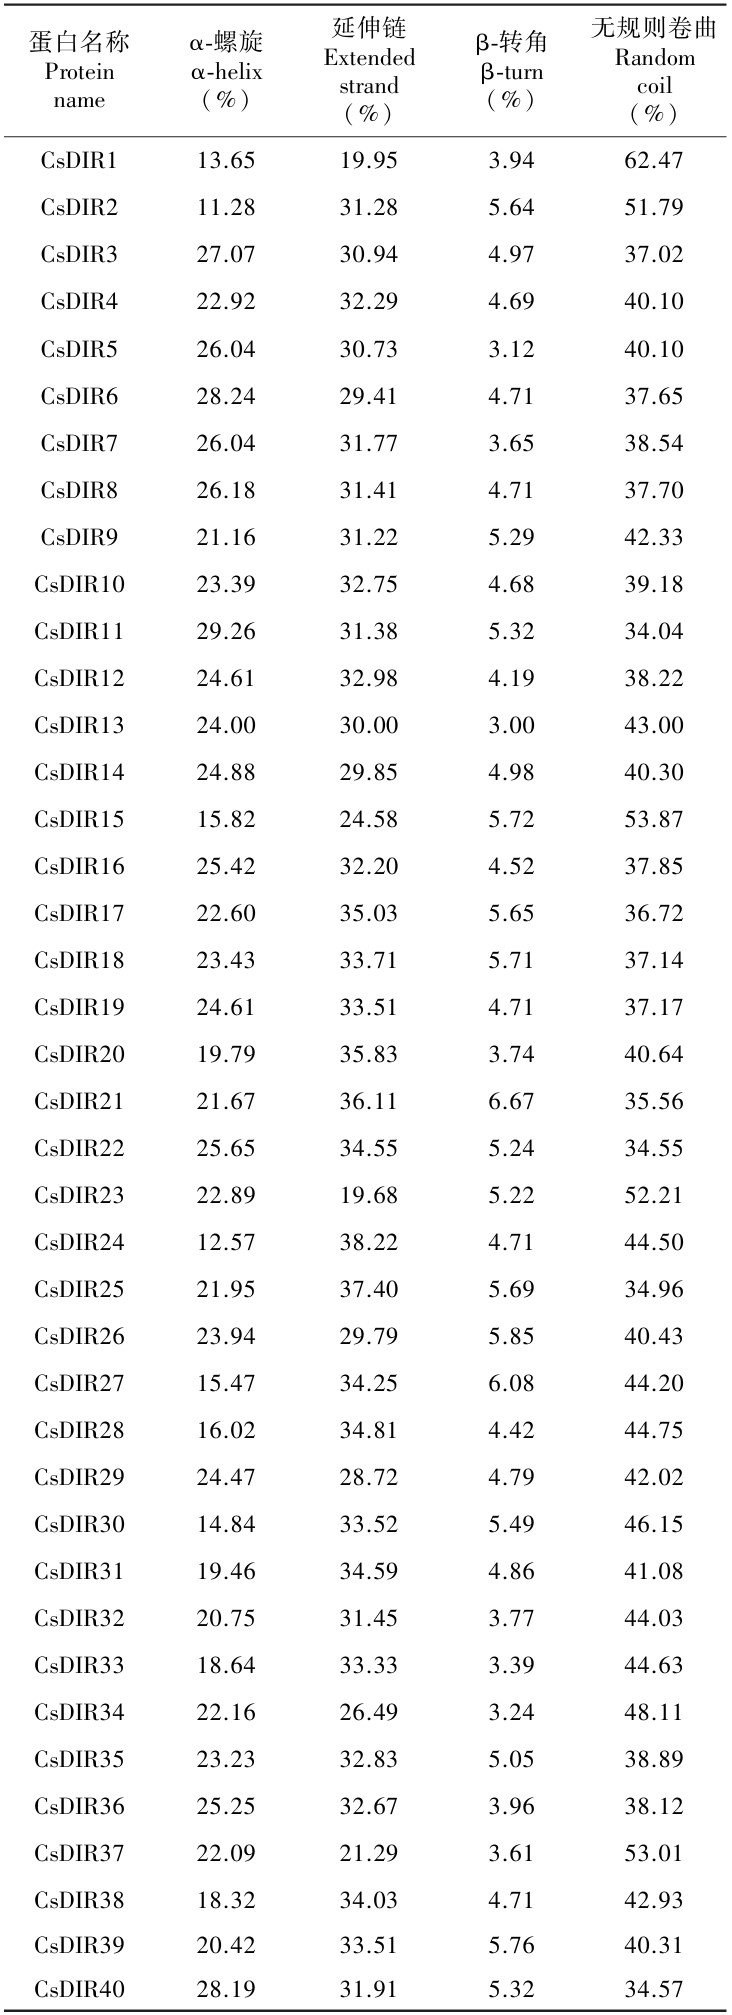
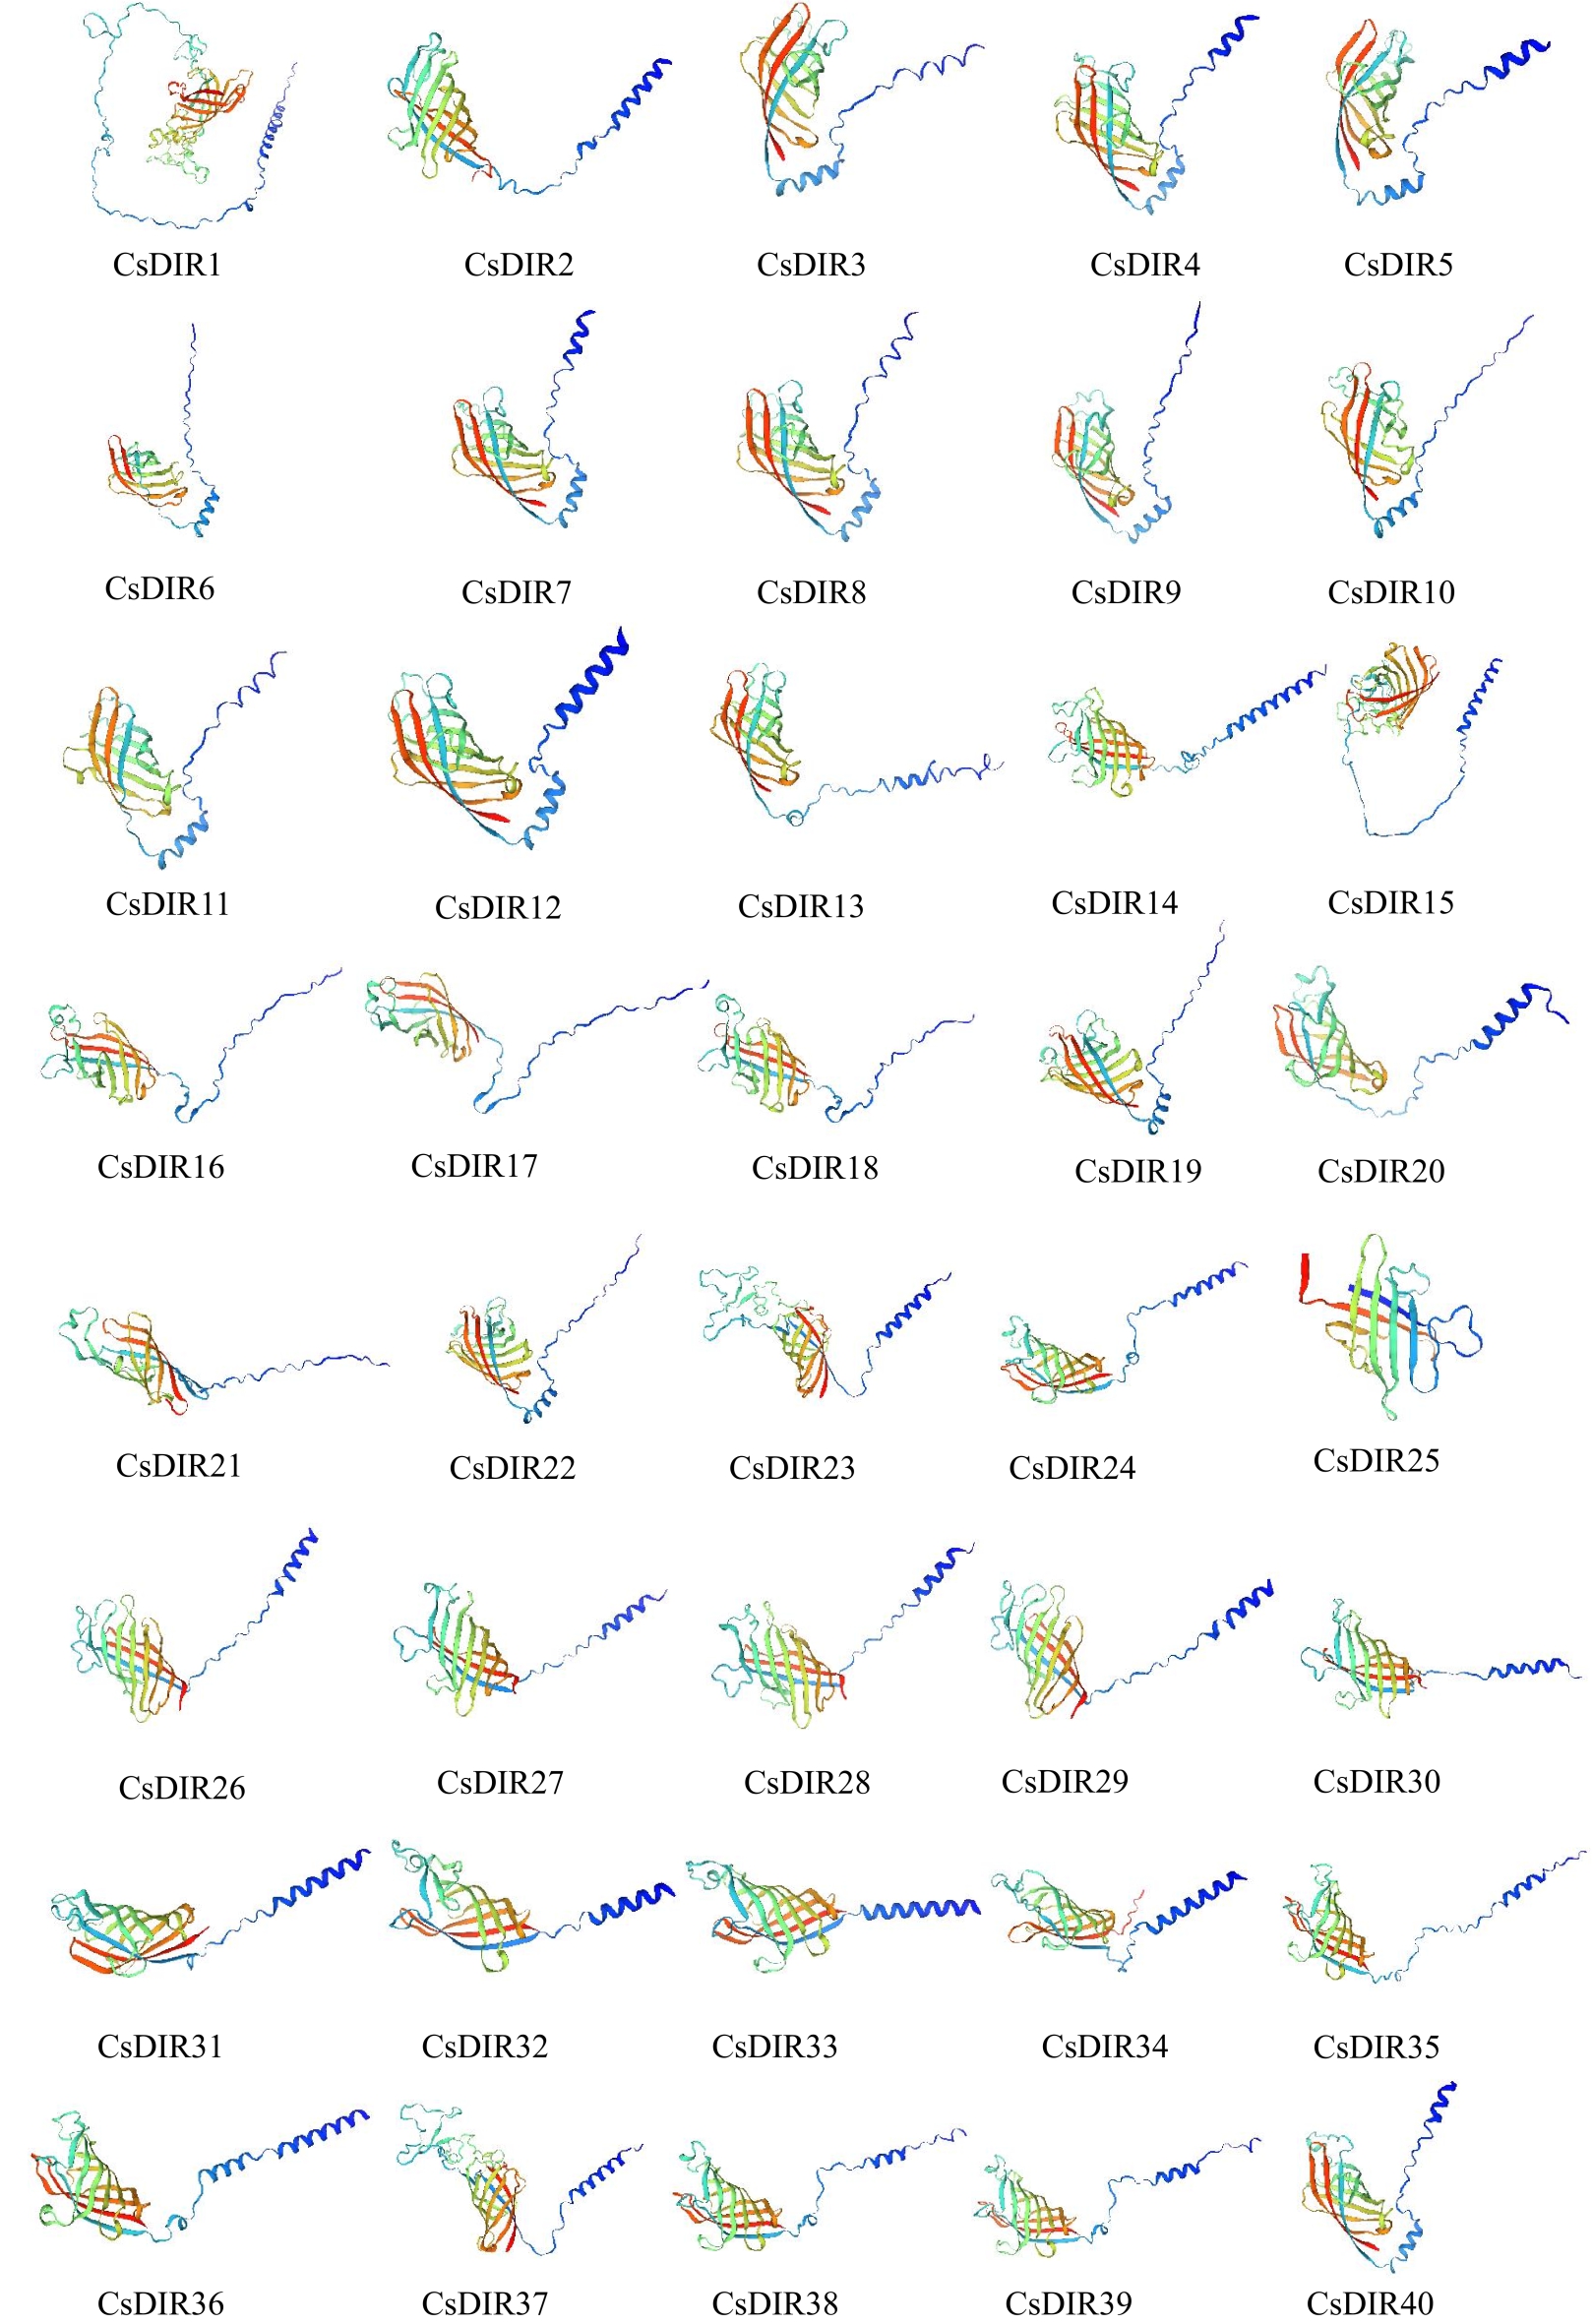
为探究茶树DIR蛋白的结构特征,对DIR蛋白进行二级结构预测(表3),茶树DIR蛋白具有α-螺旋、延伸链、β-转角和无规则卷曲4种结构形式,α-螺旋的比例为11.28%(CsDIR2)~29.26%(CsDIR11),β-转角的比例为3.00%(CsDIR13)~6.67%(CsDIR21),延伸链的比例为19.68%(CsDIR23)~38.22%(CsDIR24),无规则卷曲的比例为34.04%(CsDIR11)~62.47%(CsDIR1),其中延伸链和无规则卷曲的比例相对较高,两者总比例均占序列的65%以上。蛋白质三级结构建模如图2所示,40个DIR蛋白均含有由8条反向平行β-折叠组成的β-桶。
2.4 CsDIR基因GO功能富集
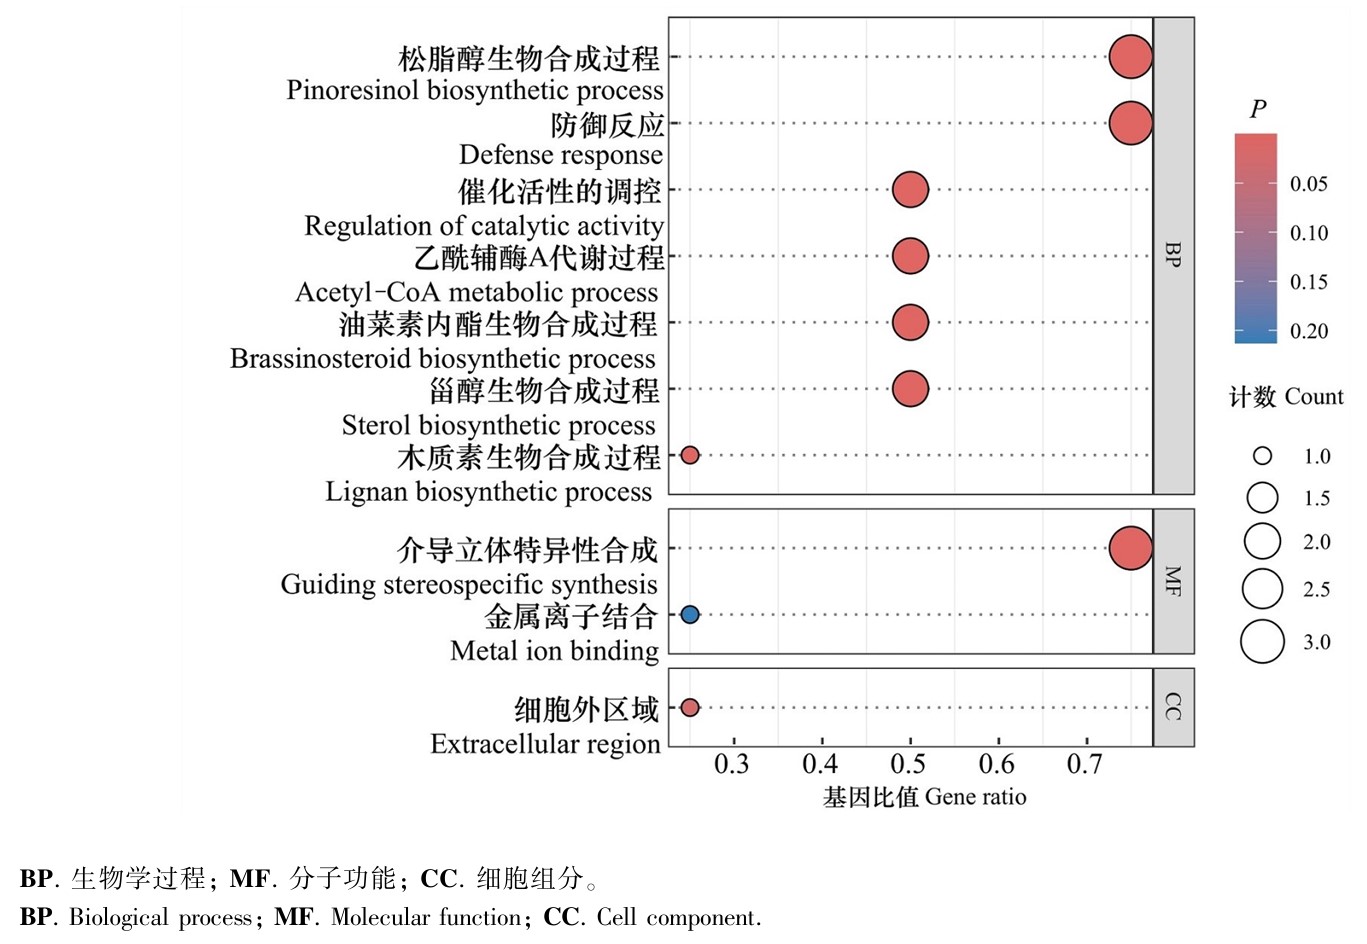
为更全面地揭示CsDIR基因潜在功能,利用EggNOG 5.0工具对其进行详尽的功能注释和分类(图3)。CsDIR参与松脂醇生物合成过程、防御反应、催化活性的调控、乙酰辅酶A代谢过程、油菜素内酯生物合成过程、甾醇生物合成过程、木质素生物合成等生物学过程(biological process,BP);主要分子功能(molecular function,MF)涉及介导立体特异性合成、金属离子结合;在细胞组分(cell component,CC)类别中,获得的与细胞成分相关的基因数量相对较少,位于细胞外区域。
2.5 CsDIR基因家族成员的基因结构、蛋白保守结构域及保守基序分析
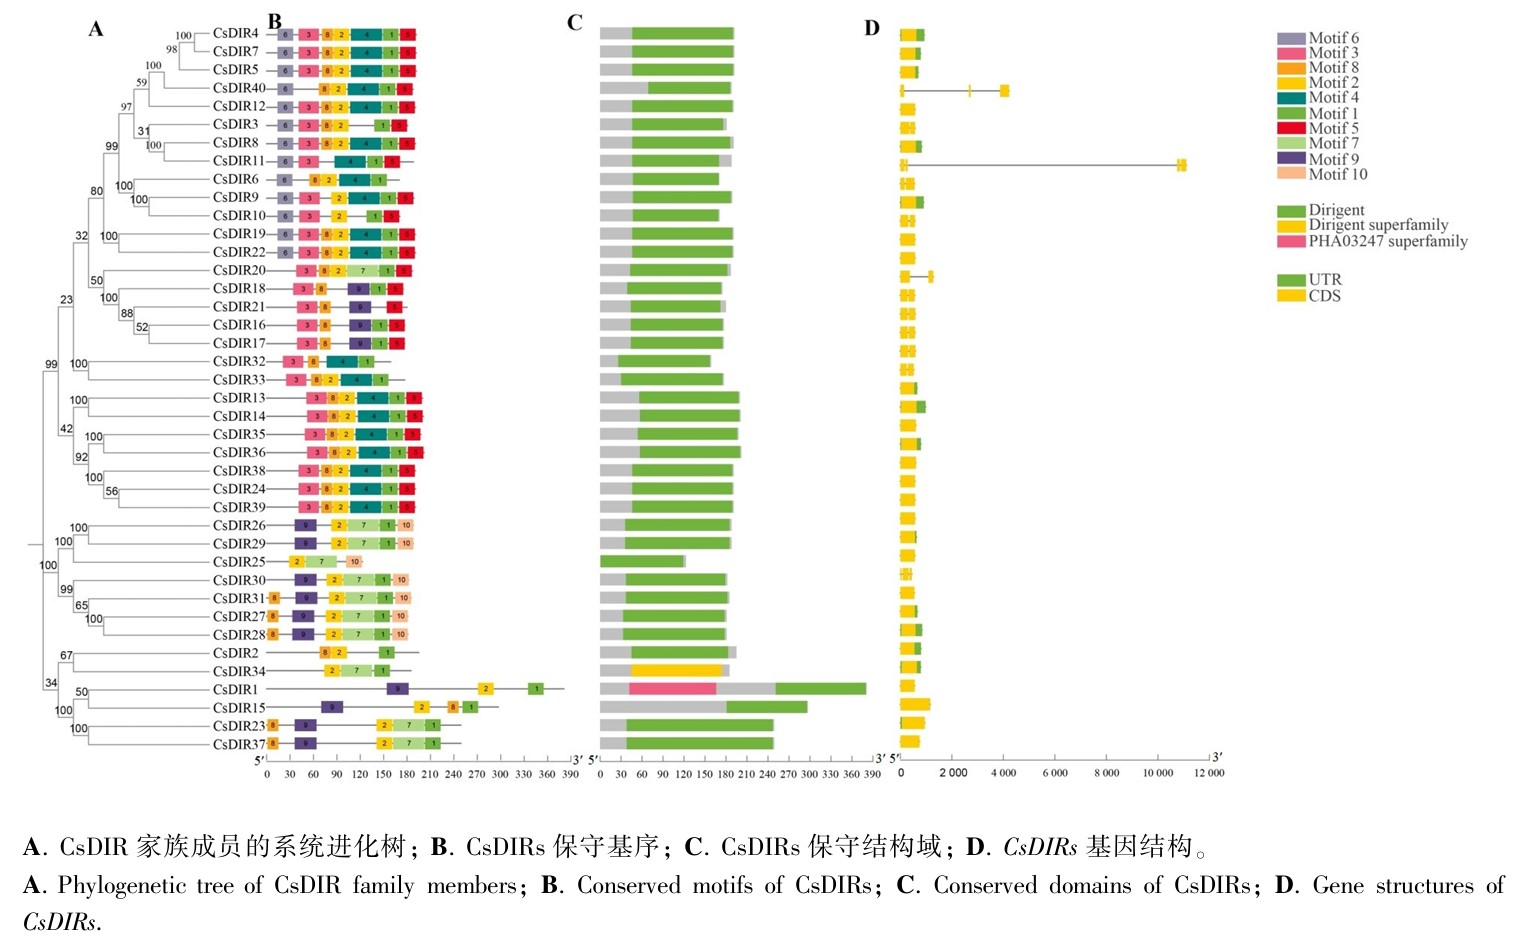
为进一步探究茶树DIR基因家族的结构特征,分析CsDIR蛋白保守基序,结果(图4:B)显示,位于同一亚族的DIR基因家族成员的保守基序较为相似。CsDIRs包含3~7个保守基序,绝大部分CsDIRs均含有Motif 1(38个)(图4:B)。CsDIR基因编码的蛋白质序列结构域分析(图4:C)显示,除CsDIR34含有1个Dirigent superfamily结构域以外,其余CsDIRs蛋白序列均含有1个保守的Dirigent结构域,其中CsDIR1还含有1个PHA03247 superfamily结构域。对CsDIR基因家族成员结构进行分析(图4:D)显示,大部分CsDIR基因(29个)无内含子,仅有1个外显子,有9个CsDIR基因(CsDIR3、CsDIR6、CsDIR10、CsDIR16、CsDIR17、CsDIR18、CsDIR20、CsDIR21、CsDIR32)含有1个内含子和2个外显子,有2个CsDIR基因(CsDIR25、CsDIR40)含有2个内含子和3个外显子,其中CsDIR11含有3个内含子和4个外显子。
表
3
CsDIR蛋白二级结构
Table
3
Secondary structures of CsDIR proteins
2.6 CsDIR基因家族成员的染色体定位及共线性分析
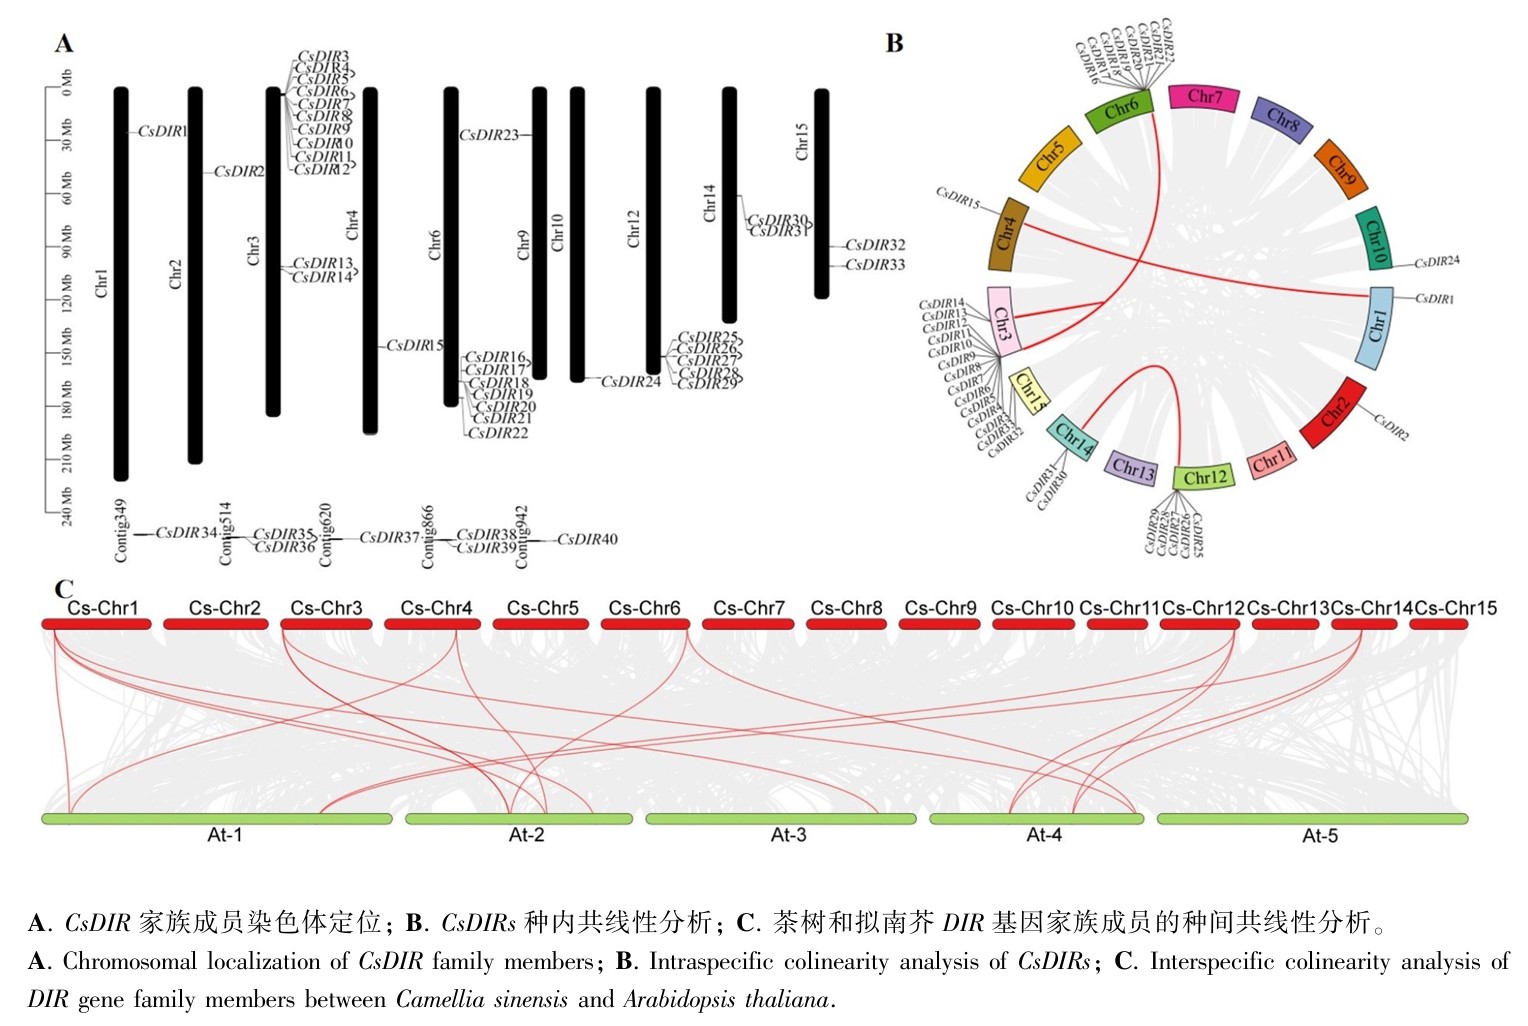
CsDIR基因家族成员在染色体上的位置(图5:A)显示,33个CsDIR基因以不均匀的方式分布在茶树10条染色体,7个CsDIR基因分布在5个不同的Contig上。第3号染色体上分布的基因最多(12个基因),第6号染色体上分布7个基因,第12号染色体上分布5个基因,第14和第15号染色体均分布2个基因,第1、第2、第4、第9和第10号染色体均分布1个基因,Contig514和Contig866上均分布2个DIR基因,其余3个Contig各分布1个DIR基因。CsDIR基因家族中有12对串联重复基因共21个基因,分别为CsDIR4与CsDIR5、CsDIR6与CsDIR7、CsDIR7与CsDIR8、CsDIR8与CsDIR9、CsDIR11与CsDIR12、CsDIR13与CsDIR14、CsDIR16与CsDIR17、CsDIR25与CsDIR26、CsDIR26与CsDIR27、CsDIR28与CsDIR29、CsDIR30与CsDIR31、CsDIR35与CsDIR36,占CsDIR基因的比例为21/40=52.5%。表明在CsDIR基因进化过程中,串联复制可能起着重要作用。
物种内共线性分析检测出4对共线性基因,CsDIR1和CsDIR15、CsDIR3和CsDIR22、CsDIR13和CsDIR14、CsDIR25和CsDIR30(图5:B)。这8个CsDIR基因是基因复制的结果,表明全基因组片段的复制对茶树基因组中DIR基因家族成员数量的增加起到重要作用。为进一步分析不同物种中CsDIR基因家族的系统发育历史,绘制茶树与拟南芥的同源性关系图,茶树与拟南芥中的17对基因之间呈共线性关系(图5:C)。其中,CsDIR1与拟南芥中的4个DIR基因存在共线性关系,CsDIR25和CsDIR30分别与拟南芥中的3个DIR基因存在共线性关系,CsDIR15和CsDIR22分别与拟南芥中的2个DIR基因存在共线性关系。上述结果表明这17对基因可能在DIR基因家族进化过程中发挥了重要作用。
图
2
CsDIR蛋白三级结构
Fig.
2
Tertiary structures of CsDIR proteins
图
3
CsDIR基因的GO功能富集分析
Fig.
3
GO function enrichment analysis of CsDIR genes
图
4
CsDIR基因家族成员的基因结构、蛋白保守结构域及保守基序分析
Fig.
4
Gene structures, protein conserved domains and conserved motifs of CsDIR gene family members
图
5
CsDIR基因家族成员染色体定位分析及物种间共线性分析
Fig.
5
Chromosomal localization analysis and interspecific colinearity analysis of CsDIR gene family members
2.7 CsDIR基因家族成员启动子顺式作用元件分析
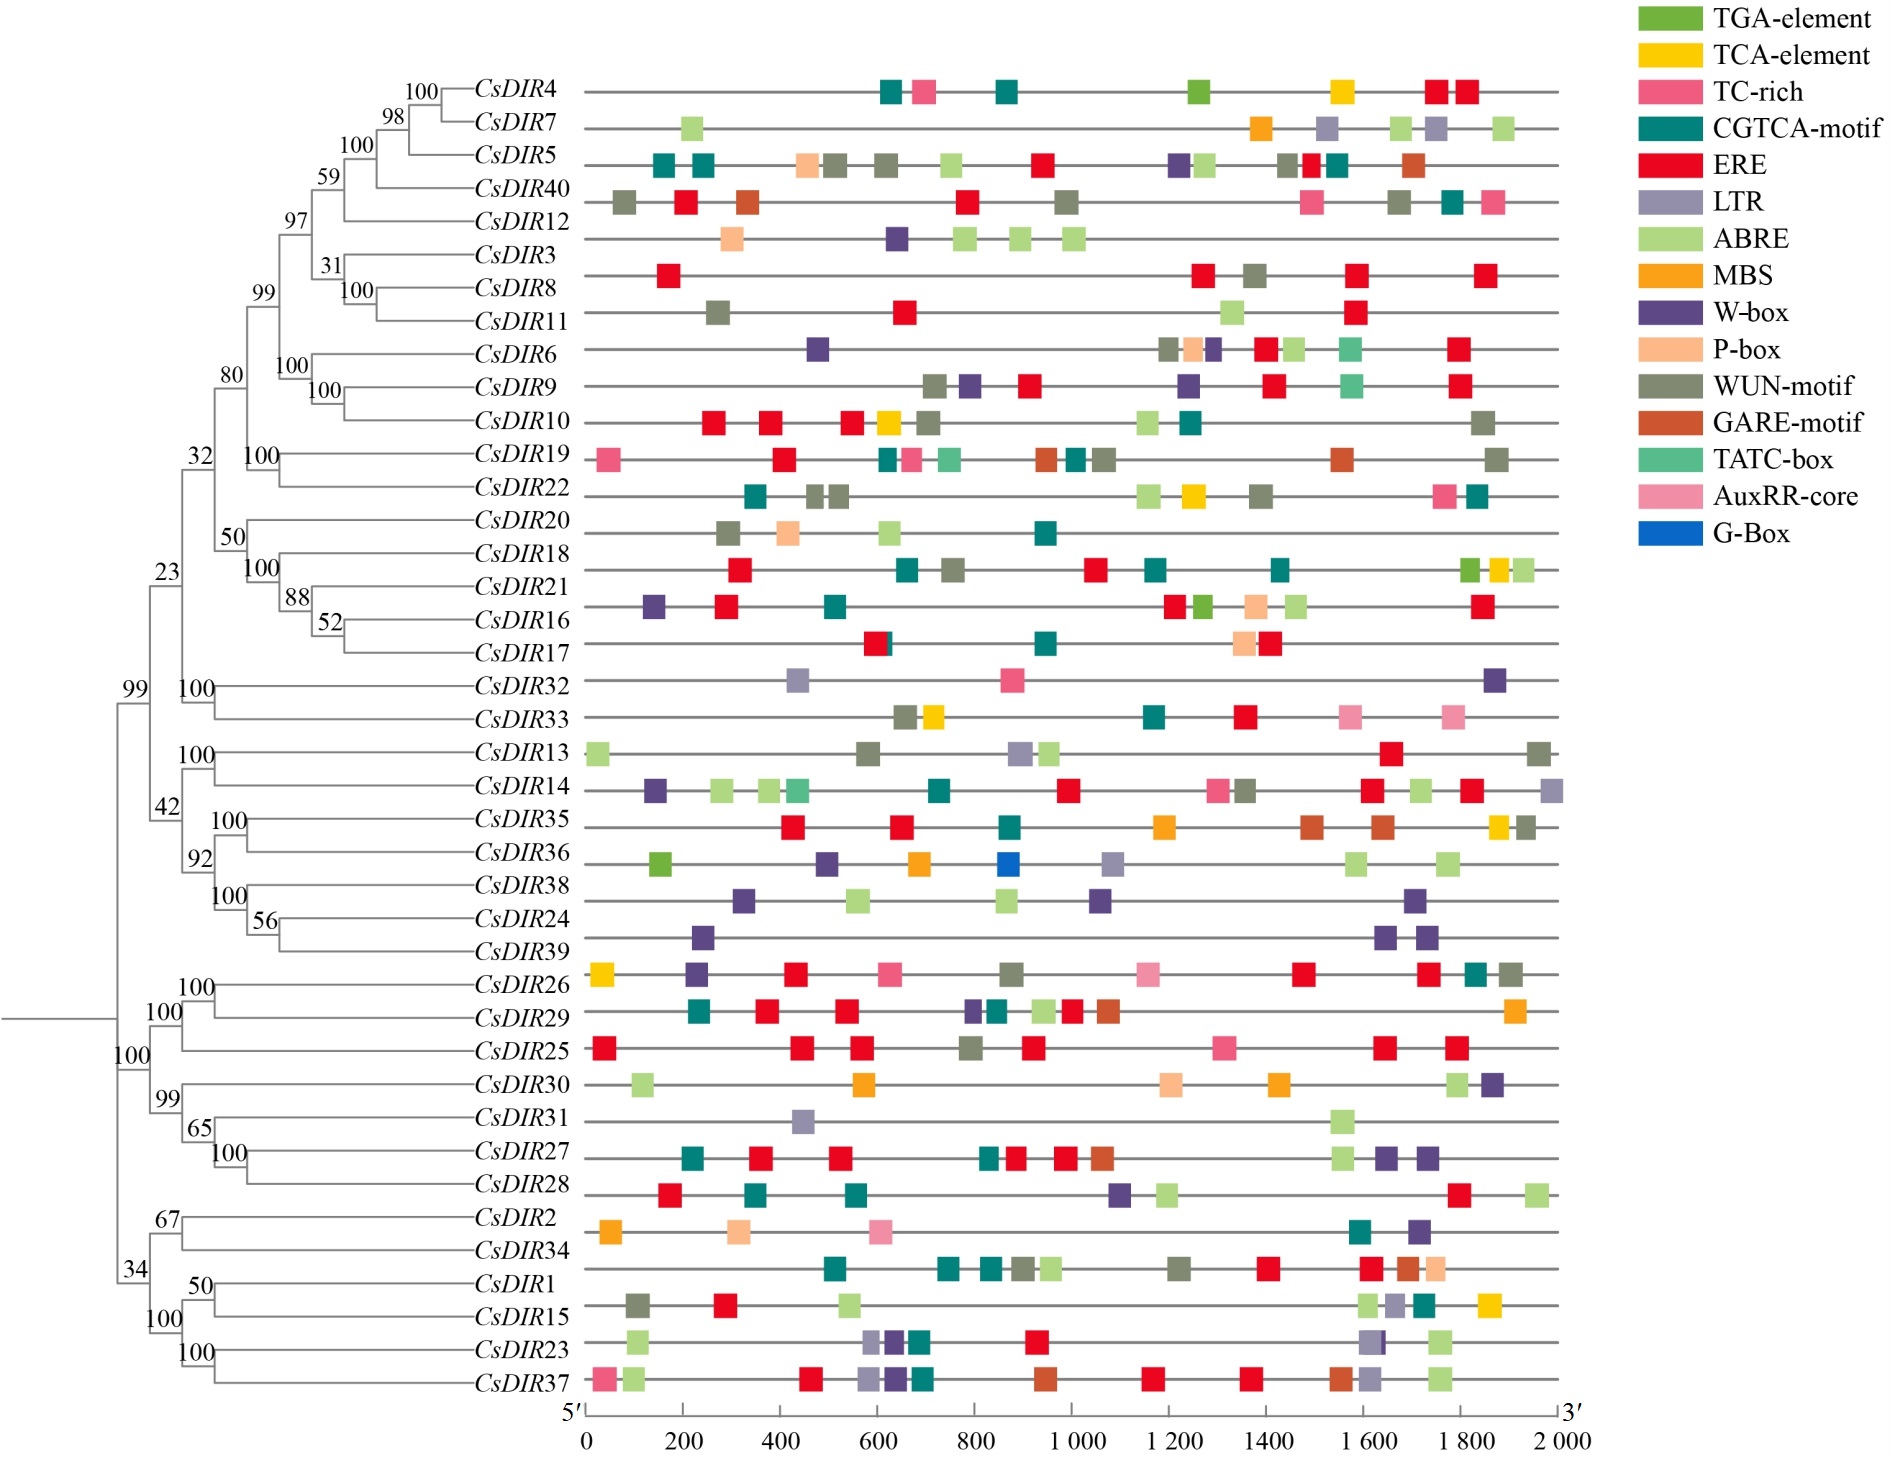
为研究CsDIR基因家族的调控作用,对CsDIR基因上游2 000 bp启动子区域的顺式作用元件进行预测和分析(图6)。40个CsDIR基因启动子共筛选到15种启动子顺式作用元件。植物激素和胁迫响应元件在该家族基因启动子区域中分布广泛。其中,28个CsDIR基因启动子区域均含有乙烯响应元件(ERE),26个CsDIR基因启动子区域含有脱落酸响应元件(ABRE),25个CsDIR基因启动子区域含有茉莉酸响应元件(CGTCA-motif),22个CsDIR基因启动子区域含有创伤响应元件(WUN-motif),20个CsDIR基因启动子区域含有病原菌响应元件(W-box),18个CsDIR基因启动子区域含有赤霉素响应元件(GARE-motif、P-box和TATC-box),11个CsDIR基因启动子区域含有低温响应元件(LTR),9个CsDIR基因启动子区域含有水杨酸响应元件(TCA-element),9个CsDIR基因启动子区域含有防御和应激反应元件(TC-rich),8个CsDIR基因启动子区域含有干旱响应元件(MBS),7个CsDIR基因启动子区域含有生长素响应元件(TGA-element和AuxRR-core),仅CsDIR38启动子区域具有光响应及茉莉酸信号交叉调控元件(G-Box),表明大多数CsDIR基因具有响应激素和环境胁迫的顺式作用元件。
图
6
CsDIR基因家族成员的启动子顺式作用元件
Fig.
6
Promoter cis-acting elements of CsDIR gene family members
2.8 CsDIR基因家族成员在炭疽病害胁迫下的表达模式
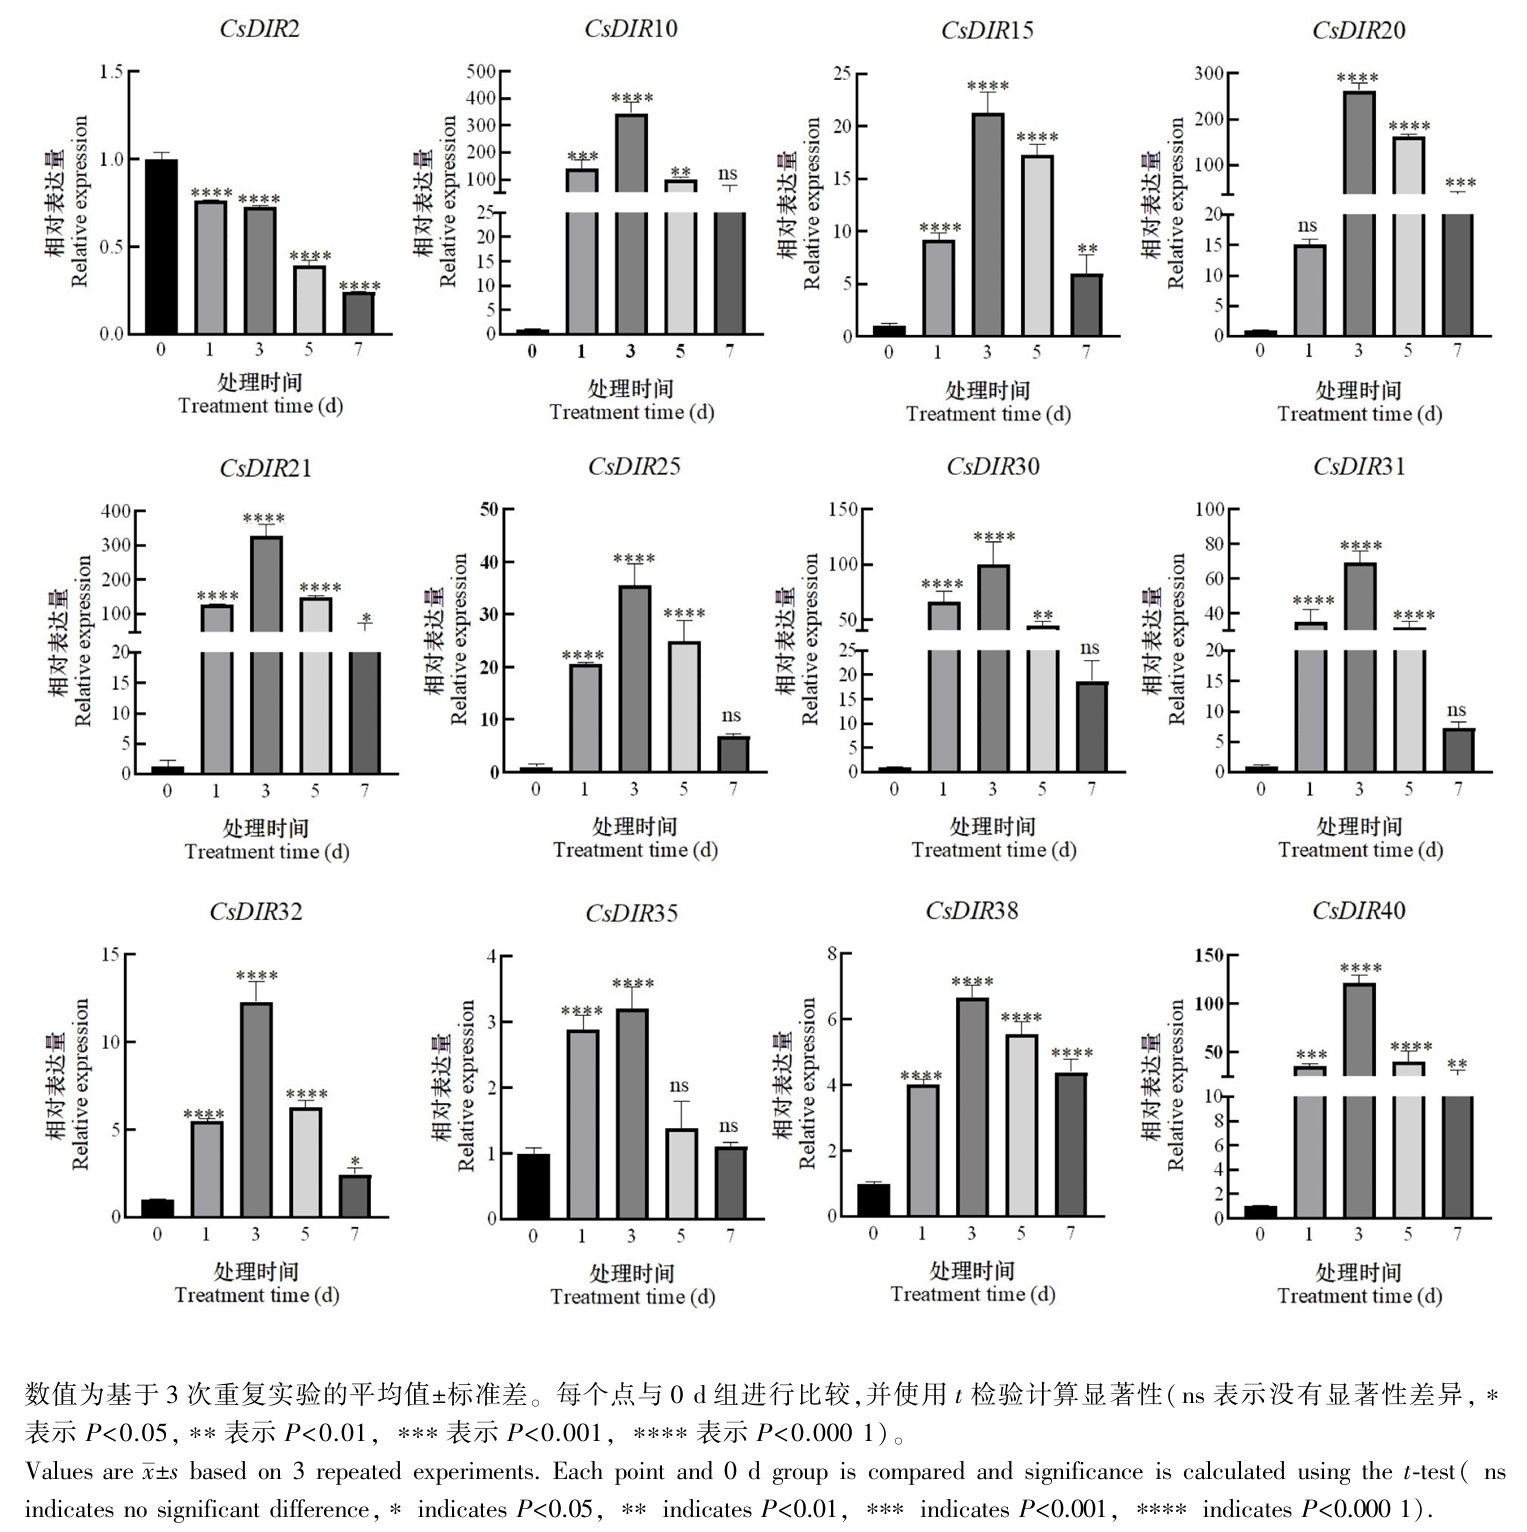
为探究CsDIR基因在茶树应对茶炭疽病害胁迫时的作用,本研究选取DIR-a亚族的CsDIR25、CsDIR30和CsDIR31,DIR-b/d亚族的CsDIR10、CsDIR20、CsDIR21、CsDIR32、CsDIR35、CsDIR38和CsDIR40,DIR-e亚族的CsDIR2和CsDIR15共12个基因。通过qRT-PCR技术分析12个CsDIR基因在茶树接种茶炭疽菌后不同时间的表达模式。结果(图7)显示,除CsDIR2以外,其余CsDIR基因相对表达量均随着接种时间的增加呈先升高后下降的趋势,在第3天时达到峰值。其中,CsDIR10、CsDIR20、CsDIR21、CsDIR30和CsDIR40相对表达量在接种3 d后上调了100倍以上。其中,接种3 d后CsDIR10基因相对表达量是接种0 d的345.68倍,接种3 d后CsDIR20基因相对表达量是接种0 d的263.19倍,接种3 d后CsDIR21基因相对表达量是接种0 d的328.73倍,接种3 d后CsDIR30基因相对表达量是接种0 d的100.32倍,接种3 d后CsDIR40基因相对表达量是接种0 d的121.65倍,表明这5个基因可能在茶树抗茶炭疽病过程中起到非常重要的作用。CsDIR2基因的相对表达量随着接种时间的增加呈下降趋势,表明CsDIR2基因在茶树抗茶炭疽病过程中可能起到负调控作用。
图
7
CsDIR基因家族部分成员在茶炭疽病处理下的定量表达分析
Fig.
7
Quantitative expression analysis of some members of CsDIR gene family under tea anthracnose treatment
3 讨论与结论
DIR基因家族调控木质素和木脂素生物合成过程中氧化偶合反应的立体选择和位置选择,在植物响应生物胁迫和非生物胁迫时发挥重要作用(陈煜等,2022)。目前,已从多种植物中鉴定到DIR基因,如紫花苜蓿(Medicago sativa)(52个)(马永龙等,2025)、谷子(Setaria italica)(41个)(赵玉雪等,2024)、拟南芥(27个)(Kim et al., 2012)、辣椒(24个)(Khan et al., 2018)和菘蓝(19个)(Li et al., 2014)。本研究在茶树基因组中筛选获得40个DIR基因,表明不同物种间DIR数量存在较大差异。理化性质分析发现,97.5%的CsDIR蛋白是稳定蛋白,表明它们可能在应对长期的逆境胁迫时发挥重要作用。此外,87.5%的CsDIR蛋白是疏水蛋白,表明它们可能定位于细胞的膜系统,如叶绿体或内质网膜等,这与玉米(秦涛等,2025)中相关研究结果相似。亚细胞定位结果显示,CsDIRs定位在叶绿体、细胞外间隙、细胞质、液泡和内质网中,这表明CsDIR家族可能在不同环境下发挥不同的生物学功能,在紫花苜蓿(马永龙等,2025)和马铃薯(Solanum tuberosum)(张益瑄等,2025)的有关研究中同样有此结论。本研究发现茶树DIR家族存在12对串联重复基因,占所有基因的52.5%。拟南芥中串联重复基因占比为60%,进化过程中DIR基因家族的扩展在不同物种之间不同。串联重复在茶树和拟南芥的DIR家族扩增中发挥了重要作用。
茶树DIRs仅分布在3个亚族中(DIR-a、DIR-b/d和DIR-e),其中DIR-b/d亚族包含成员最多,该结果与同属于双子叶植物的拟南芥和毛果杨DIRs的系统进化分组情况相似,而DIR-c和DIR-g这两个亚族只含有水稻DIRs,这表明单子叶植物水稻和双子叶植物茶树、毛果杨和拟南芥在分化后可能具有不同的进化模式。Liu等(2021)研究表明,在棉花中,DIR-b/d亚族基因占比高达75%以上,远大于云杉(Picea asperata)(34.3%)(Ralph et al., 2007)、水稻(20.4%)和辣椒(50.0%),说明DIR-b/d亚族在棉花中进化较快,在棉花应对逆境胁迫过程中可能具有重要作用。本研究中,茶树的DIR-b/d亚族基因占比为67.5%,也大于云杉和水稻等,说明DIR-b/d亚族在茶树应对逆境胁迫过程中也可能具有重要作用。同一亚族CsDIRs保守基序的分布和排列相似,一些保守基序特异性地存在于一些DIR亚族中,导致了DIR-a、DIR-b/d和DIR-e亚族之间的分化,保守基序的特异性可能与同一亚族成员间的功能保守性相关。上述结果与毛果杨和透骨草(Phryma leptostachya)(Pei et al., 2023)保守基序的分布和排列结果相似。大部分茶树DIR家族成员仅含有1个外显子,无内含子,这与马铃薯(张益瑄等,2025)、紫花苜蓿(马永龙等,2025)和谷子(赵玉雪等,2024)DIR家族的基因结构类似。CsDIR蛋白的延伸链和无规则卷曲占比较高,这与厚朴(Houpoea officinalis)(张柏年等,2024)和朝仓花椒(Zanthoxylum piperitum var. inerme)(陈炳竹等,2020)DIR蛋白的二级结构预测结果一致,延伸链和无规则卷曲赋予蛋白质高度柔性和构象可变性并提高空间利用效率,使其能够与多种底物结合并参与多样的生物学过程。CsDIR蛋白均含有保守的由8条反向平行的β-折叠组成的β-桶,这与透骨草和木豆(Cajanus cajan)(Dokka et al., 2024)DIR蛋白的三级结构建模结果吻合,大部分CsDIR蛋白还具有N端尾部结构,这一结构可使其更高效地发挥底物引导作用。
本研究分析CsDIR家族成员接种茶炭疽菌后的表达模式发现,11个CsDIRs基因在接种1 d后即被诱导表达,且在接种3 d时达到最大值,总体呈现先增高后降低的趋势。与本研究结果相似的是,大豆中的GmDIR22(Li et al., 2017)、辣椒中的CaDIR7(Khan et al., 2018)和三七中的PnDIR1(关瑞攀,2018)等在植物抵抗病原菌侵害过程中同样发挥正向调控作用。沙金兰等(2025)研究发现,受炭疽病侵染的辣椒中与木质素合成相关的基因(如 CaLAC1、CaLAC3、CaLAC13、CaLAC14 和 CaLAC18)的表达量明显上调。大部分DIR 家族蛋白均参与木脂素和木质素的合成(Ma & Liu, 2015),本研究同样发现受炭疽病侵染后的茶树中与木质素合成相关的基因(如CsDIR10、CsDIR20、CsDIR21、CsDIR30和CsDIR40)的表达量明显上调,推测这些基因可能与茶树的抗病应激反应密切相关,在炭疽病侵染时期,这几个基因存在一定的协同效应,共同抵御炭疽病的侵染。CsDIR基因的GO富集分析表明,这些家族基因涉及防御反应、油菜素内酯、甾醇、木质素和松脂醇生物合成。王茹苹(2024)研究表明,接种青枯菌(Ralstonia solanacearum)后NbDIR27沉默的植物叶叶盘的叶绿素含量较野生型显著下降,过表达植物的叶片出现叶绿素的增加。提高茶树叶片的叶绿素含量,为增强茶树的抗病能力奠定了良好的物质基础(徐超等,2024)。亚细胞定位预测CsDIRs大多数定位于叶绿体,说明CsDIRs可能在光合作用中发挥重要作用以抵御炭疽病侵染。CsDIR家族基因启动子还存在众多响应激素,以及参与生物胁迫与非生物胁迫的顺式作用元件,说明CsDIR基因在茶树生长发育与非生物胁迫方面发挥着重要作用。如需全面解读茶树DIR基因对逆境响应的表达模式,可结合启动子的生物学功能作进一步的关联分析和鉴定。
本研究筛选获得40个茶树DIR基因,预测并分析其进化树关系、基因和蛋白的结构、亚细胞定位及茶炭疽病胁迫下表达模式分析等,为进一步探究茶树DIR基因家族功能特性提供一定的理论依据。