摘要
为探究查尔酮合酶(CHS)在马缨杜鹃(Rhododendron delavayi)花色形成中的作用,该研究以马缨杜鹃为材料,克隆了RdCHS2编码区全长,并对其组织表达情况、体外催化活性及体内功能进行了解析。结果表明:(1)RdCHS2的编码序列(CDS)全长为1 170 bp,编码389个氨基酸,与其他植物CHS归为一类,具有CHS典型的保守基序。(2)基因表达分析显示,RdCHS2在花葶中表达最高,在雄蕊中表达最低,随开花进程的推进其表达量呈逐渐上升趋势。(3)酶活检测显示,RdCHS2能够分别催化丙二酰辅酶A与对香豆酰辅酶A生成柚皮素查尔酮,以及催化丙二酰辅酶A与肉桂酰辅酶A生成松属素查尔酮。(4)拟南芥tt4突变体互补实验显示,RdCHS2可成功恢复拟南芥tt4突变体子叶与下胚轴中花青素苷的合成。该研究证实,RdCHS2具有典型CHS活性,可参与花青素苷的合成,为今后进一步明确该基因的具体功能奠定了基础。
Abstract
To elucidate the role of chalcone synthase (CHS) in flower color formation of Rhododendron delavayi, the full-length coding region of RdCHS2 was cloned from R. delavayi, and its expression profile, catalytic activity in vitro and biological function in vivo were analyzed. The results were as follows: (1) The full-length coding sequence (CDS) of RdCHS2 was 1 170 bp, encoding 389 amino acids. Phylogenetic analysis showed that RdCHS2 was grouped into the same clade with CHS from other plants and had typical conserved motifs of CHS. (2) Gene expression analysis showed that the expression of RdCHS2 was the highest in scapes and the lowest in stamens, and its expression increased gradually as flowering progressed. (3) Enzymatic assays confirmed that RdCHS2 catalyzed the synthesis of naringenin chalcone from malonyl-CoA and p-coumaroyl-CoA, as well as catalyzed the synthesis of pinocembrin chalcone from malonyl-CoA and cinnamoyl-CoA. (4) Complementation experiments in Arabidopsis thaliana tt4 mutant demonstrated that RdCHS2 successfully restored anthocyanin biosynthesis in cotyledons and hypocotyls of A. thaliana tt4 mutant. These results show that RdCHS2 exhibits typical CHS activity and participates in the biosynthesis of anthocyanin, which lays a foundation for further clarifying the specific function of this gene.
Keywords
马缨杜鹃属于常绿树型杜鹃,叶革质,簇生枝顶,矩圆状披针形,花序伞形顶生,花冠钟形,深红色,极富观赏价值,是贵州省百里杜鹃国家森林公园的重要植物资源之一(黄红霞,2006)。马缨杜鹃因花朵艳丽而具有较高的观赏价值,又因其叶和花均可入药而具有一定的药用价值。多部中医药典籍中记载,马缨杜鹃以花入药,可治疗骨髓炎、月经不调等多种病症(王聿晗等,2023)。花青素苷作为决定马缨杜鹃观赏与药用价值的重要物质,已被证实具有一定的医疗价值,可对阿尔茨海默病产生积极影响,改善糖尿病功能障碍,缓解非酒精性脂肪性肝病,修复肾脏功能障碍及肾小管损伤,以及作为免疫抑制剂(Hyun et al., 2019)减缓癌细胞扩散(Surangi Dharmawansa et al., 2020; Nakano et al., 2020; Li et al., 2021; Liu et al., 2021)。
查尔酮合酶(chalcone synthase,CHS)属于Type Ⅲ 聚酮合酶(Type Ⅲ polyketide synthase,Type Ⅲ PKS)(Huang et al., 2024),在大部分双子叶植物中以多基因家族形式存在,主要包括2个外显子和1个内含子,且在植物的不同组织与不同发育阶段的表达模式存在差异(Ferrer et al., 1999)。CHS以丙二酰辅酶A和香豆酰辅酶A为底物,催化生成柚皮素查尔酮,随后柚皮素查尔酮再经一系列酶的催化作用最终生成花青素苷。CHS作为植物花青素苷合成通路上游的第一个关键酶(Wu et al., 2020),在花青素苷生物合成途径中起重要作用。现阶段已在很多高等植物中对其进行了研究。对金鱼草的研究显示,其只含有1个CHS基因,并且该基因的突变直接导致金鱼草花色变为白色(Sommer & Saedler, 1986)。与金鱼草相同,拟南芥中也只含有1个CHS基因,该基因突变后拟南芥种皮颜色由棕色变为黄色,幼苗子叶与下胚轴由紫色变为绿色,同时花粉和根的形态也发生相应改变(Chang et al., 1988; Buer & Djordjevic, 2009)。在矮牵牛的8个CHS基因中,只有CHS-A和CHS-J在花组织中表达,并且这2个基因在矮牵牛花瓣白色组织中的表达量下调,同时,抑制CHS-A的表达还导致矮牵牛不能产生花粉管(Koes et al., 1989; Koseki et al., 2005)。与矮牵牛的研究不同,抑制玉米CHS基因表达后,花粉管可以发育并进行生长,但只能维持不到12 h,最终仍然导致玉米雄性不育(Pollak et al., 1995)。对大花君子兰和红花的研究表明,2种植物的CHS均可催化香豆酰辅酶A和丙二酰辅酶A生成柚皮素查尔酮,且其在植物着色部位的表达量最高(刘玥等,2021;Tang et al., 2023)。综上,CHS在植物的生长发育和颜色形成过程中均发挥了不可替代的作用。目前,关于植物CHS的研究已较为广泛,但是针对高山杜鹃CHS基因的研究仍然有限,且CHS表达模式与开花进程、花色形成机制的关联尚未见到报道。因此,开展RdCHS2基因研究将为马缨杜鹃花色形成机制解析奠定理论基础。
本研究以马缨杜鹃为材料,克隆得到RdCHS2的全长编码序列,采用生物信息学软件、实时荧光定量PCR、体外酶活检测和拟南芥遗传转化等方法,对RdCHS2是否参与花青素苷的生物合成进行初步解析,拟探究如下问题:(1)通过RdCHS2蛋白的理化性质分析及其与其他物种Type Ⅲ 聚酮合酶之间的进化关系,分析RdCHS2是否具有CHS的潜在功能;(2)分析RdCHS2在马缨杜鹃不同组织和不同开花时期的表达情况,探究该基因的时空表达特性及其与花色形成之间的关系;(3)通过体外酶活检测与拟南芥突变体互补实验证明RdCHS2是否具有CHS活性,在植物中是否参与花青素苷的生物合成。本研究为今后进一步明确该基因的生物学功能及其参与花青素苷合成调控的分子机制奠定了重要基础。
1 材料与方法
1.1 试验材料
盛花期马缨杜鹃花采自百里杜鹃国家森林公园实验样地;农杆菌GV3101、大肠杆菌JM109、BL21(DE3)感受态购自上海唯地生物科技有限公司;哥伦比亚野生型拟南芥(wild type,WT)、tt4突变体拟南芥、真核载体pBI121和原核载体pET-32a(+)由本实验室提供;常规分子试剂购自天根生化科技(北京)有限公司;化学试剂购自北京索莱宝科技有限公司;引物合成与DNA测序由武汉金开瑞生物工程有限公司完成。
1.2 RdCHS2的克隆与生物信息学分析
取马缨杜鹃盛花期花朵,提取获得符合实验要求的RNA并逆转录合成cDNA。基于马缨杜鹃转录组数据,设计基因特异性克隆引物(表1),经PCR扩增、连接和测序,确认RdCHS2的核苷酸序列。
利用Expasy-ProtParam工具(http://web.expasy.org/protparam/)分析RdCHS2的理化性质,利用MEGA 11构建进化树,利用MEME(http://meme-suite.org/index.html)和TBtools软件进行基序分析与可视化。
表
1
研究所用引物序列
Table
1
Primer sequences used in this study
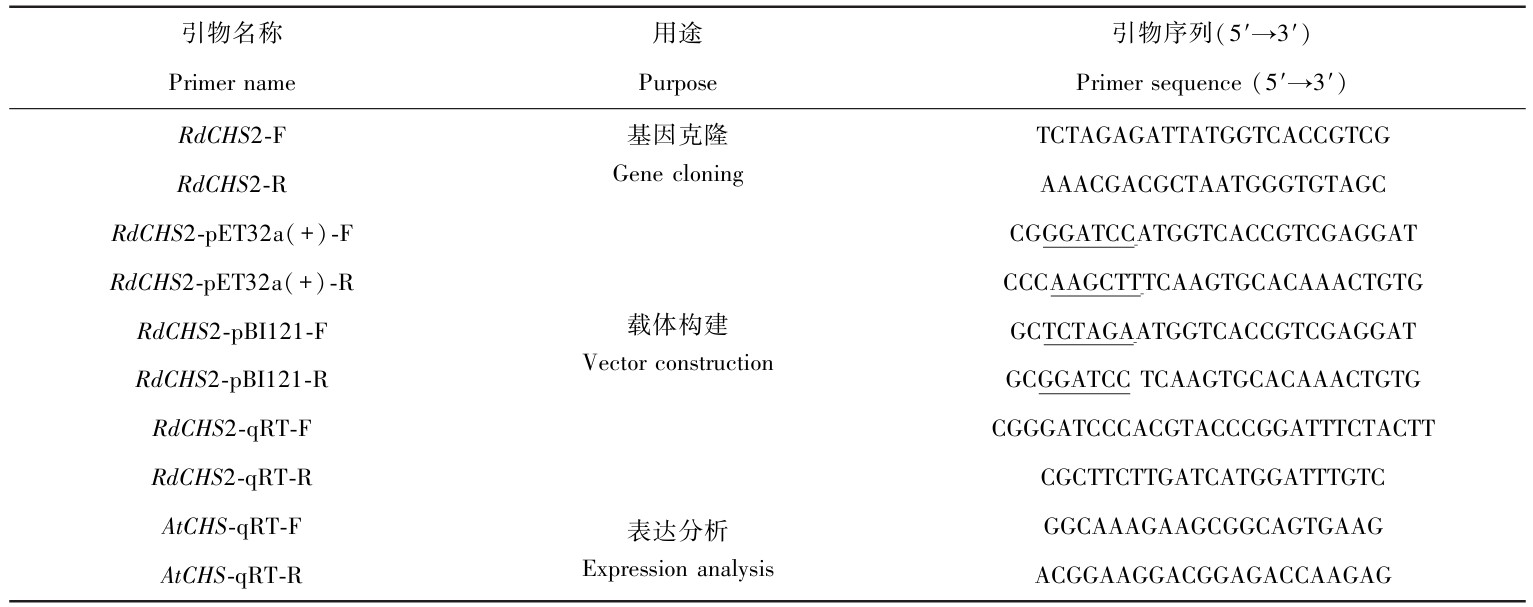
注:酶切位点 [BamH I(GGATCC);Hind Ⅲ(AAGCTT);Xba Ⅰ(TCTAGA)]。
Note: Restriction sites [BamH Ⅰ(GGATCC); Hind Ⅲ(AAGCTT); Xba Ⅰ(TCTAGA)].
1.3 RdCHS2基因表达量分析
提取马缨杜鹃不同组织及不同开花时期的RNA,逆转录为cDNA。设计qRT-PCR引物,内参基因使用RdActin。qRT-PCR扩增程序如下:95 ℃ 60 s;95 ℃ 5 s、60 ℃ 60 s,共40个循环,每个样品设置3个生物学重复,运用2-ΔΔCt计算RdCHS2的表达量。
1.4 RdCHS2原核表达载体构建
将克隆得到的目的基因序列连接到经BamH I和Hind Ⅲ酶切的pET-32a(+)载体上,测序正确的质粒命名为pET-32a(+)-RdCHS2,并转化至BL21(DE3)感受态细胞。
1.5 RdCHS2可溶性重组蛋白的制备
在15 ℃培养温度条件下,对BL21-pET-32a(+)-RdCHS2进行诱导时间及IPTG浓度的摸索。时间梯度设置为24、36、48、60、72 h,IPTG浓度梯度设置为0.1、0.2、0.4、0.7、1.0 mmol·L-1。诱导结束后,超声破碎细胞,离心并取上清液用于SDS-PAGE电泳检测。
按上述最佳诱导表达条件进行重组蛋白大量制备,用不同浓度的咪唑进行洗脱,收集相应浓度的洗脱液,离心并取上清液用于SDS-PAGE电泳检测,确定最佳洗脱条件。选择最佳洗脱条件对目的蛋白进行洗脱,收集纯度和浓度较高的洗脱液进行低温透析与浓缩,随后进行SDS-PAGE蛋白凝胶检测。
1.6 体外酶活鉴定
体外酶活检测参照Sanmugavelan等(2018)的方法稍作修改,酶活反应体系总体积为200 μL,包括pH为7.2的50 mmol·L-1磷酸钾,1 mg·mL-1的底物(丙二酰辅酶A、香豆酰辅酶A和肉桂酰辅酶A)和RdCHS2重组蛋白,以BL21-pET-32a(+)空载体蛋白为对照,柚皮素查尔酮和松属素查尔酮的检测波长分别为304、342 nm。
1.7 RdCHS2真核表达载体构建
利用含有CaMV35S启动子和NPTII的pBI121构建拟南芥双元载体,将扩增得到的RdCHS2,连接至经Xba I和BamH I酶切的pBI121载体上,测序正确的质粒命名为pBI121-RdCHS2,并转化至农杆菌。
1.8 拟南芥tt4突变体的遗传转化
将突变体tt4培养至盛花期,用蘸花法进行遗传转化,获取T2代种子。将T2代、野生型及tt4种子培育7 d,提取RNA,逆转录为cDNA,以β-Actin为内参基因,进行qRT-PCR,运用2-ΔΔCt计算表达量。参照Shin等(2007)的方法测定花青素苷含量。
1.9 数据统计分析
所有实验均进行3个生物学重复,取平均值,利用Excel进行数据统计,利用SPSS version 19.0 的Tukey法进行数据分析,利用GraphPad Prism 8.0.1绘图。
2 结果与分析
2.1 RdCHS2的克隆与分析
以马缨杜鹃花瓣cDNA为模板,成功克隆获得马缨杜鹃查尔酮合酶基因RdCHS2,该基因开放阅读框(open reading frame,ORF)全长为1 170 bp,可以编码389个氨基酸,预测其编码的推定蛋白分子量约为42.6 kDa,分子式为C1898H3037N503O564S20,其中亮氨酸含量最高,占比约为10.8%。理论等电点约为5.72,属于较为稳定的蛋白。
将RdCHS2与不同类型的Type Ⅲ 聚酮合酶构建进化树,结果表明,RdCHS2与其他植物的CHS聚在一起,同时与紫花苜蓿(MsCHS)的亲缘关系最近,表明RdCHS2很可能属于CHS类型的聚酮合酶。基序分析结果显示,除Motif 6、Motif 8、Motif 10外,其余基序在不同物种Type Ⅲ 聚酮合酶的基序中均具有高度保守性,其中Motif 1-Motif 4是典型的保守基序,可能在决定Type Ⅲ 聚酮合酶的功能中发挥重要作用(图1)。
将RdCHS2与已验证功能的CHS进行多序列比对,结果如图2所示,RdCHS2具有CHS发挥功能必需的保守氨基酸与结构域,包括催化位点残基(黄色框)、决定CHS催化特异性的残基(紫色框),以及负责结合底物并参与形成催化口袋的残基(黑色三角形)等。
2.2 RdCHS2基因表达量分析
RdCHS2基因表达量分析显示,其在不同组织中均有表达,在花葶中的表达量最高,在雄蕊中的表达量最低。在马缨杜鹃开花过程中,RdCHS2基因表达量呈逐渐上升趋势(图3)。
2.3 RdCHS2原核表达载体构建
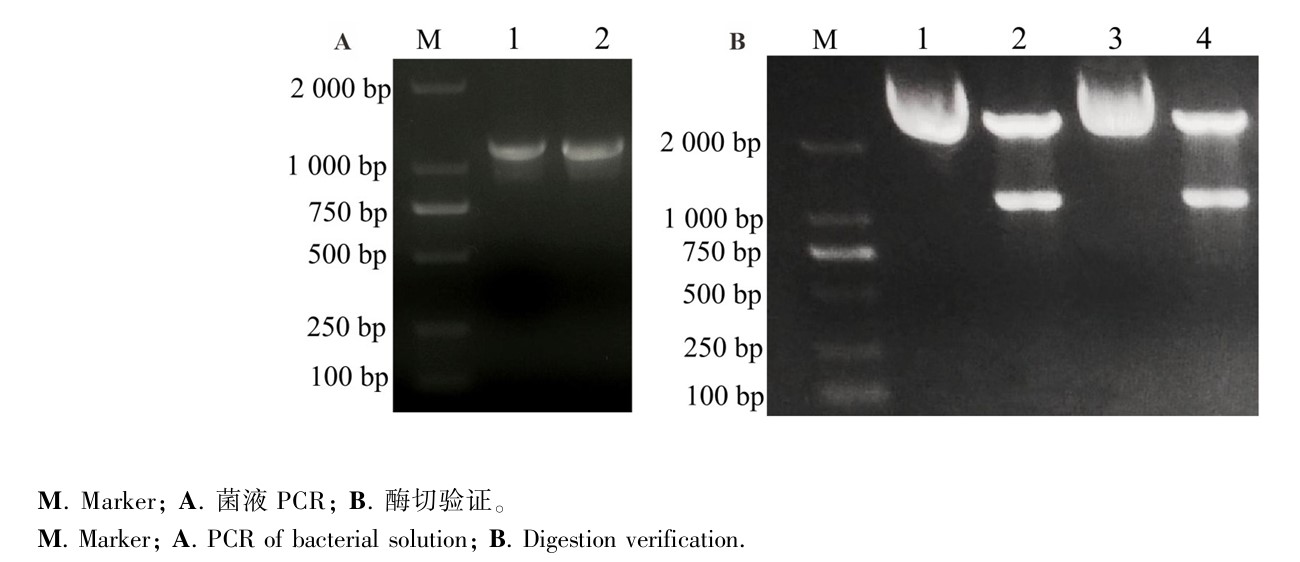
将线性化的RdCHS2与pET-32a(+)进行连接,经菌液PCR、酶切验证、公司测序,结果(图4)表明,原核表达载体pET-32a(+)-RdCHS2构建成功。
2.4 可溶性重组蛋白的制备与酶活检测
将BL21-pET-32a(+)-RdCHS2置于15 ℃条件下,于不同时间与不同IPTG浓度下进行诱导表达,结果如图5所示,RdCHS2重组蛋白在48 h的表达量达到最大,并且后续随着时间延长表达量不再增加;在不同浓度IPTG诱导下,RdCHS2重组蛋白表达量趋于一致。综上,确定RdCHS2重组蛋白最佳诱导表达条件如下:温度为15 ℃,IPTG浓度为0.1 mmol·L-1,诱导表达时间为48 h。
按上述条件对BL21-pET-32a(+)-RdCHS2进行大量诱导培养,收集菌体并超声破碎后获得上清液,在低温条件下进行洗脱,透析与浓缩,结果如图6所示,成功获得浓度与纯度较好的可溶性重组蛋白。
将RdCHS2可溶性重组蛋白与不同底物进行酶活反应,结果如图7所示,RdCHS2可催化丙二酰辅酶A和香豆酰辅酶A反应生成柚皮素查尔酮,也可催化丙二酰辅酶A和肉桂酰辅酶A反应生成松属素查尔酮,证明RdCHS2具有查尔酮合酶的功能。
2.5 RdCHS2真核表达载体构建与tt4突变体的转化
将线性化的RdCHS2与pBI121进行连接,经菌液PCR、酶切验证、公司测序,结果(图8)表明,真核表达载体pBI121-RdCHS2构建成功。
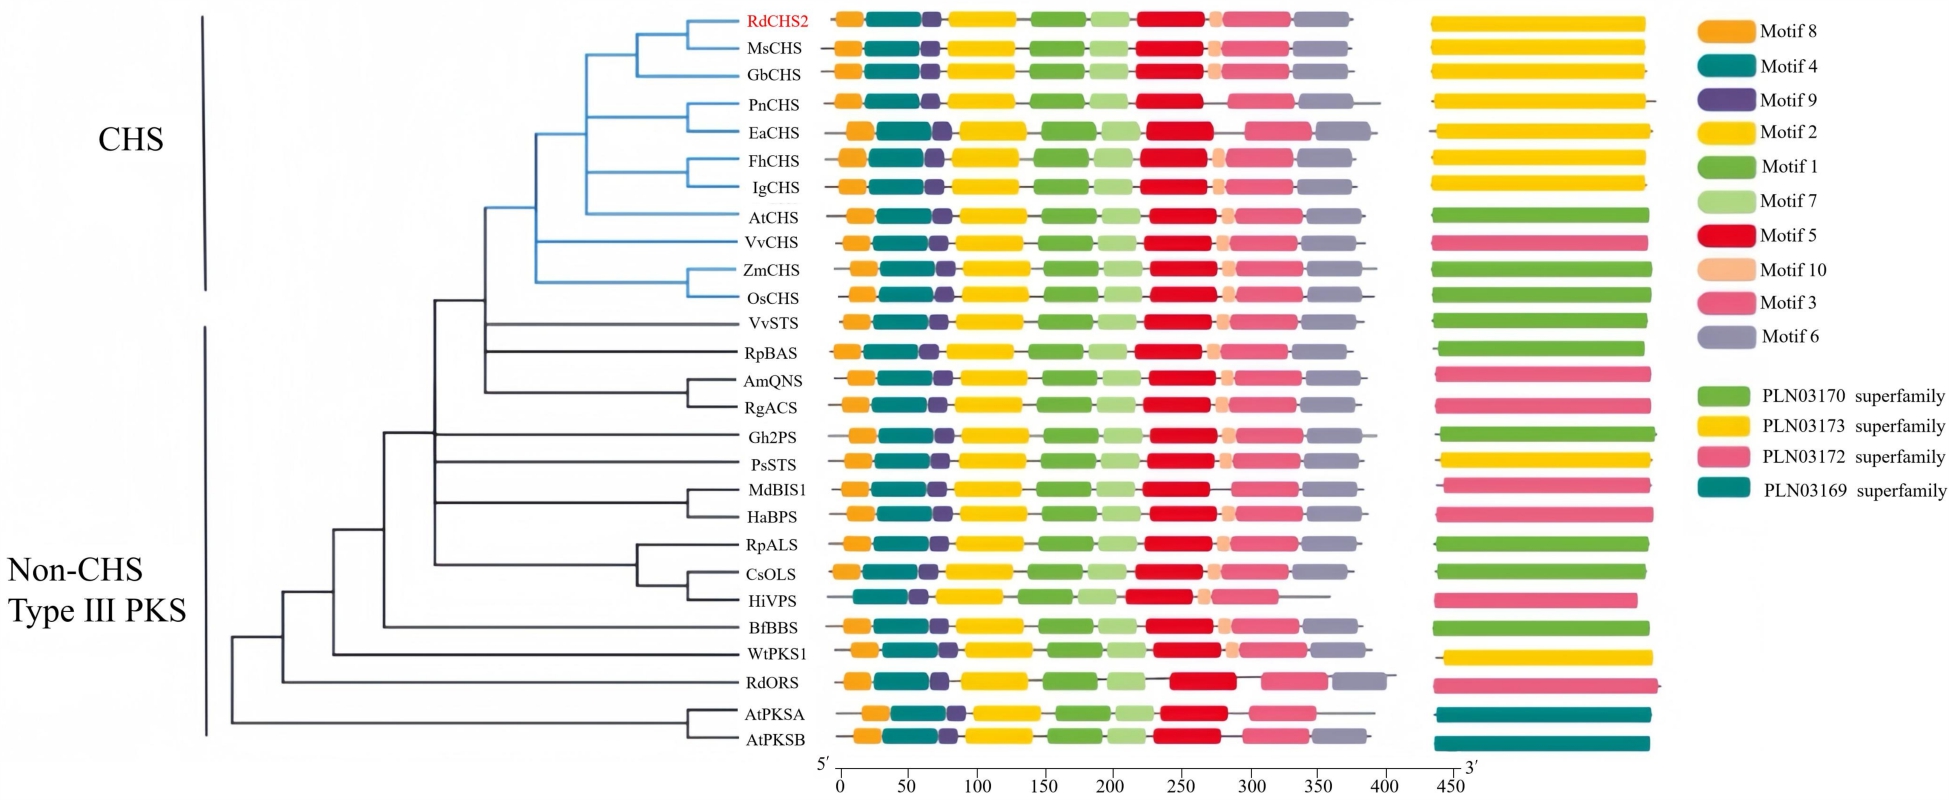
图
1
RdCHS2基序分析
Fig.
1
Motif analysis of RdCHS2
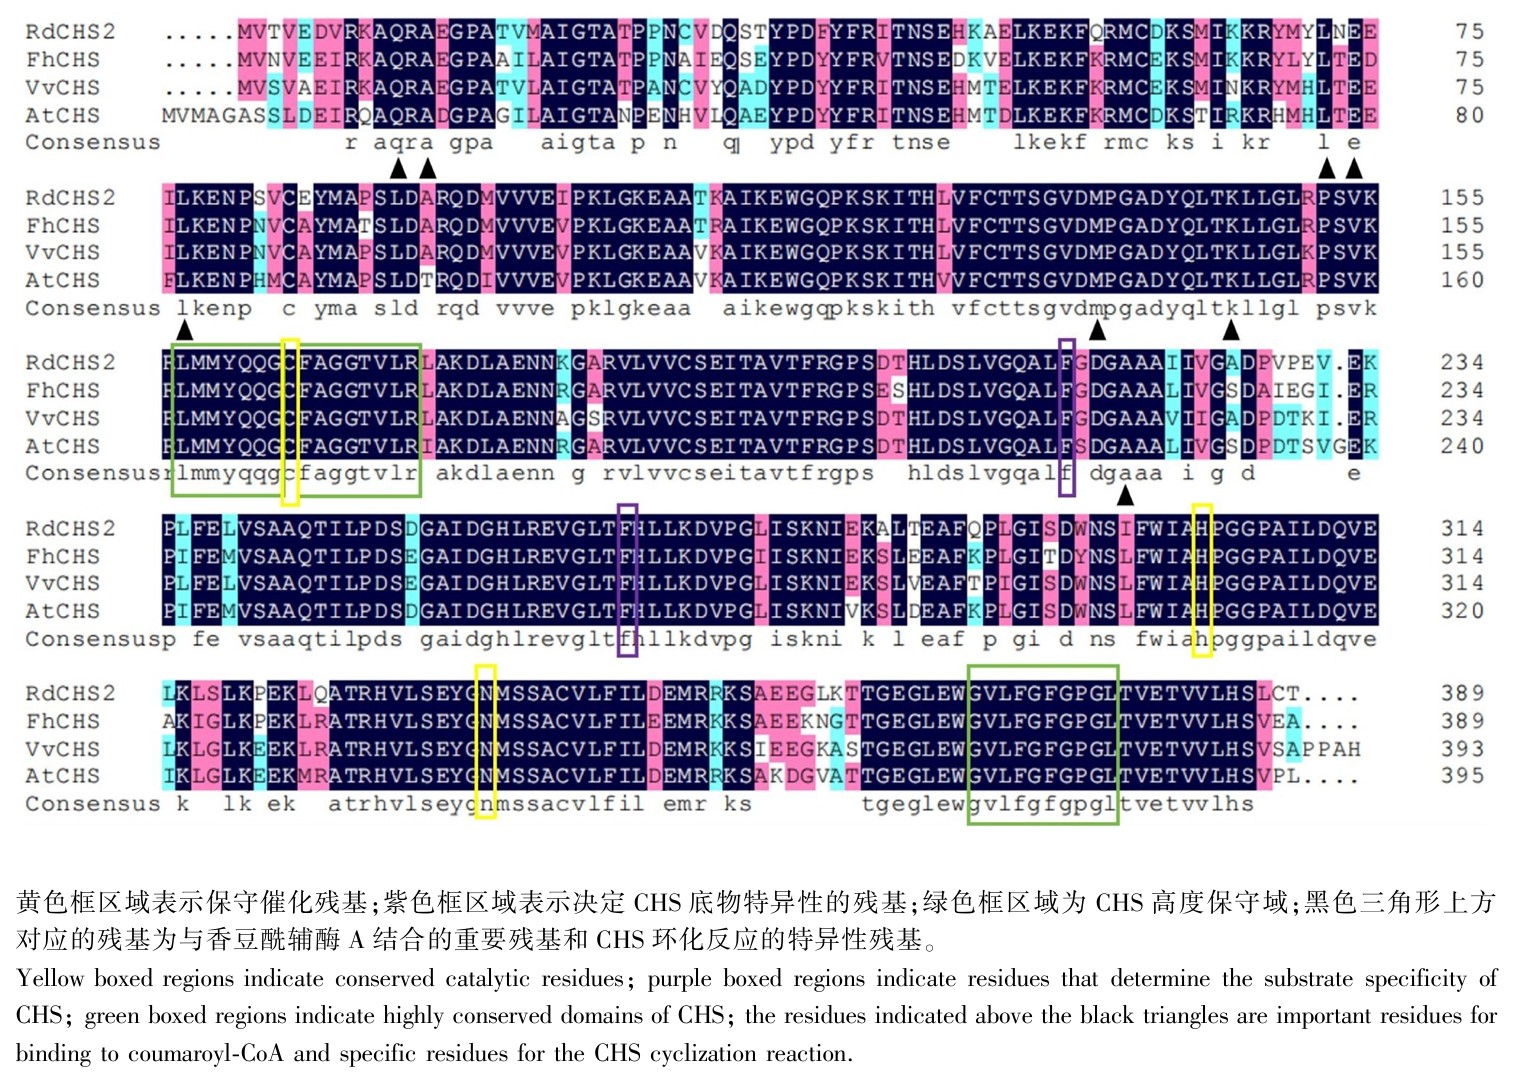
图
2
RdCHS2的多序列比对
Fig.
2
Multiple sequence alignment of RdCHS2
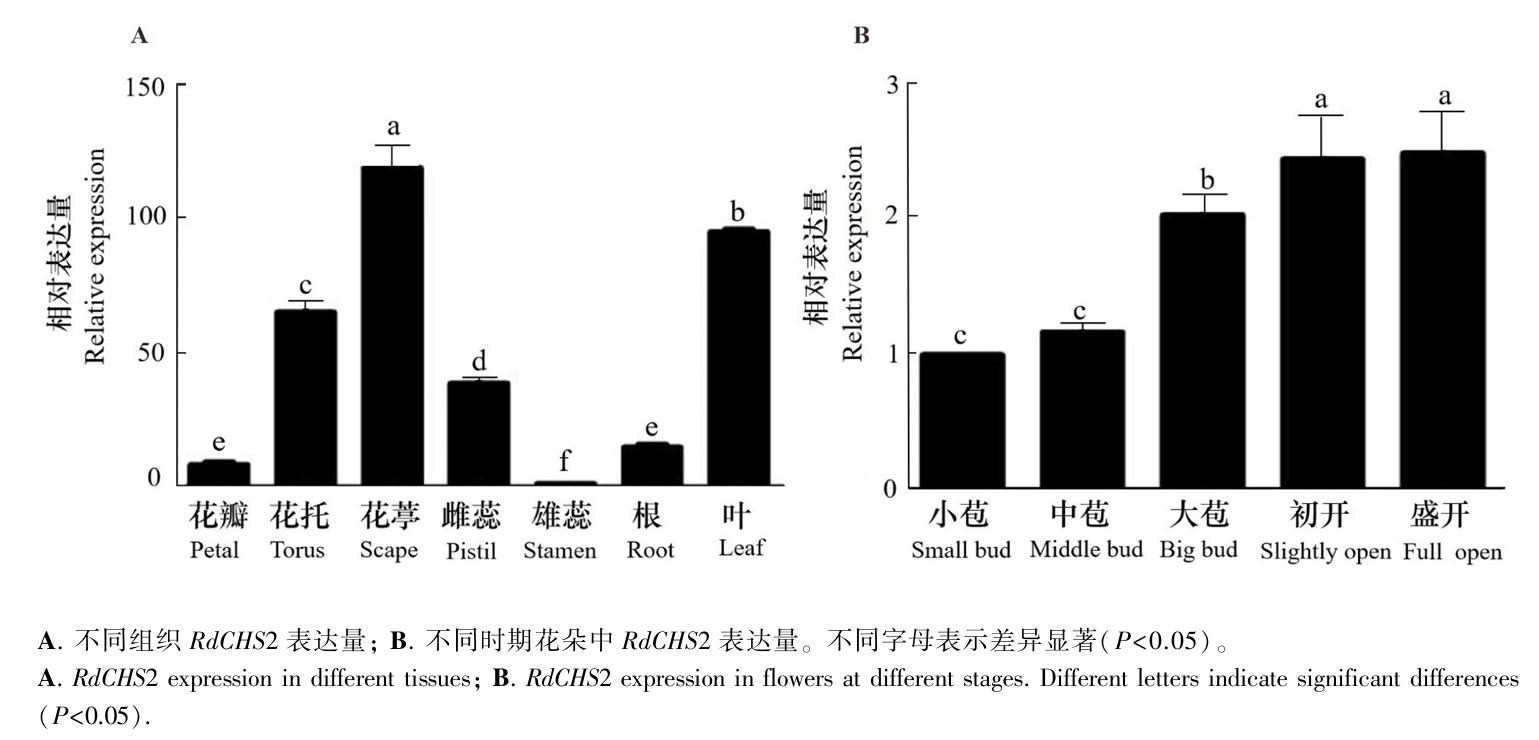
图
3
RdCHS2表达量分析
Fig.
3
Expression analysis of RdCHS2
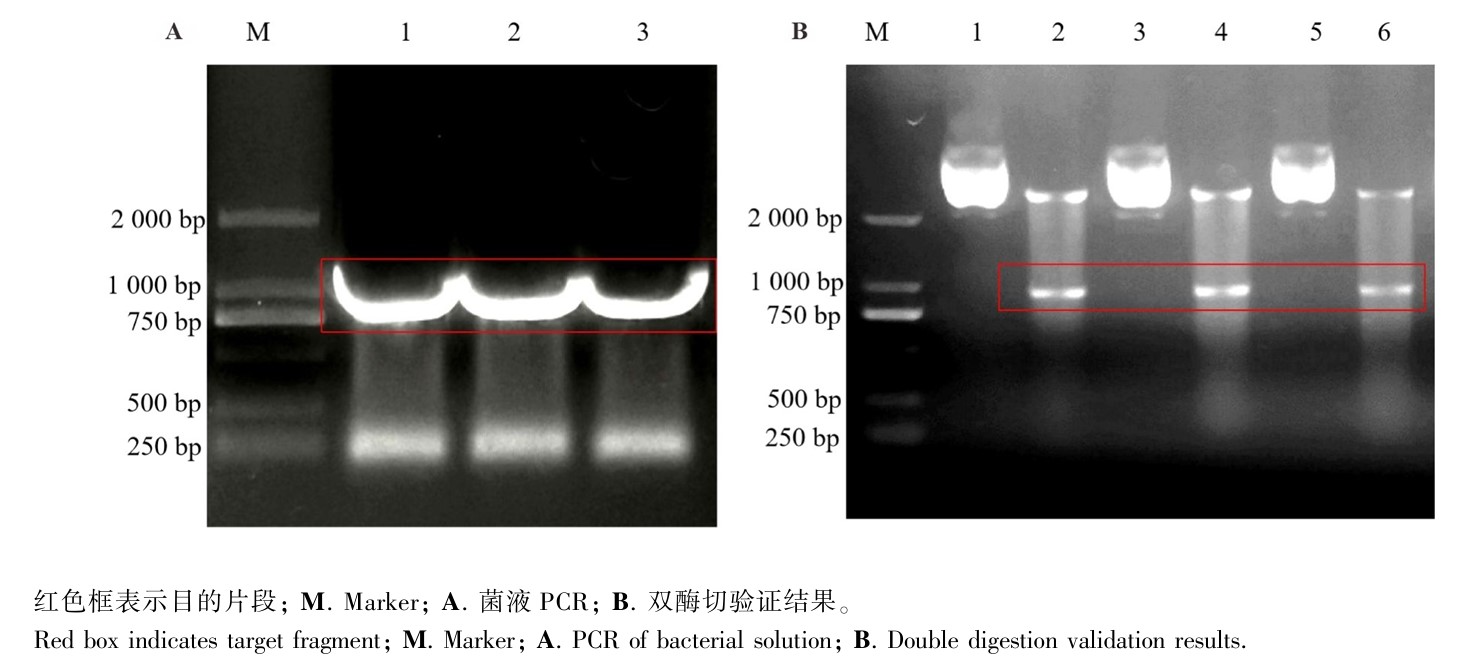
图
4
RdCHS2原核表达载体的构建
Fig.
4
Prokaryotic expression vector construction of RdCHS2
转基因结果如图9:A所示,在体视显微镜下T2代转基因种子及其幼苗与tt4突变体相比,种皮恢复棕色,幼苗子叶及下胚轴恢复紫色,花青素苷合成恢复;qRT-PCR结果(图9:B、C)显示,RdCHS2在转基因植株中的表达与AtCHS在野生型中的表达相似,说明RdCHS2与AtCHS具有相似的功能且均参与花青素苷的生物合成。
3 讨论与结论
关于Type Ⅲ PKS的研究显示,越来越多的Type Ⅲ PKSs(除CHS外),如二苯乙烯合成酶(stilbene synthase,STS)、吖啶酮合成酶(acridone synthase,ACS)和2-吡喃酮合成酶(2-pyrone synthase,2PS)等已被证明与CHS具有相同的催化机制,只是在分子内环化方式和对起始底物的偏好性上存在差异(Martín & Liras, 2022),并且这些Type Ⅲ PKSs在氨基酸水平上也与CHS相似度较高。因此,仅通过序列相似性被判定为CHS的序列,实际上可能编码其他Type Ⅲ PKSs(Ohta et al., 2022)。为了更好地区别CHS与其他Type Ⅲ PKSs,特定位置的氨基酸种类可以帮助鉴定CHS,如第215位和第265位苯丙氨酸,其作为CHS的看家氨基酸,在促进底物装载和适时折叠上发挥重要作用(Morita et al., 2019)。水稻中OsCHS9因为第265位苯丙氨酸被甘氨酸取代,所以检测不到CHS活性(Park et al., 2020)。多序列比对分析显示,RdCHS2第215位和第265位均为苯丙氨酸,系统进化分析显示,它与已经验证功能的CHS聚为一类,表明RdCHS2在马缨杜鹃中很可能发挥典型CHS功能,但具体功能还需要通过实验进一步验证。
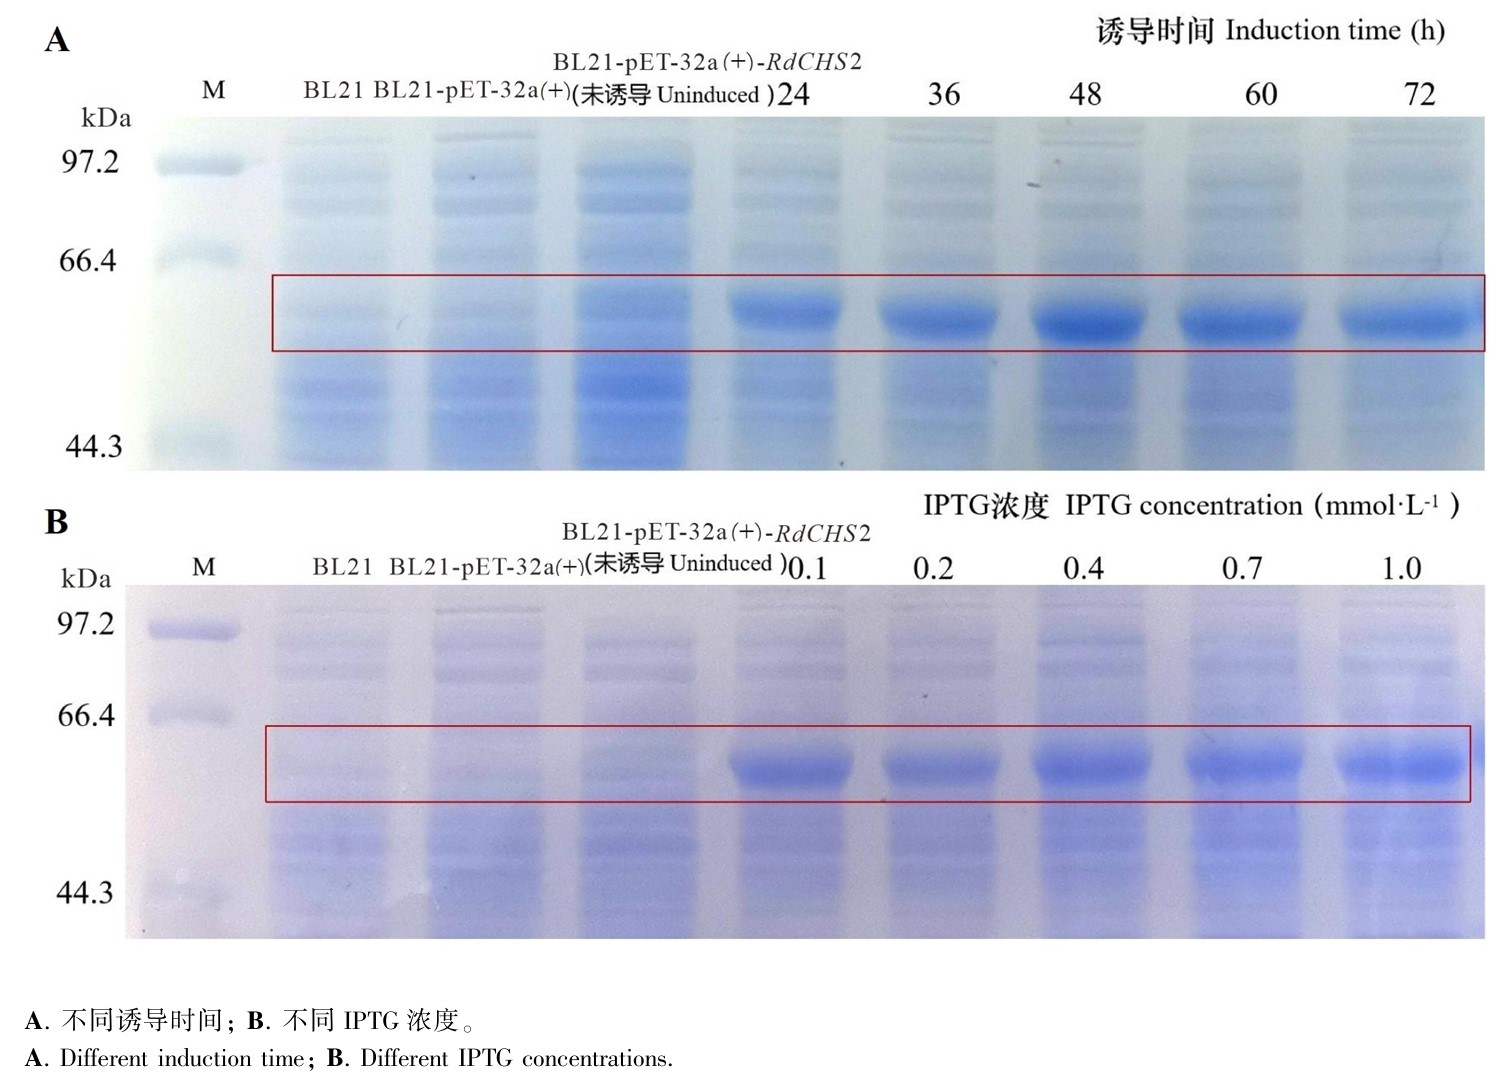
图
5
重组蛋白诱导表达条件的确定
Fig.
5
Determination of inducible expression conditions of recombinant protein
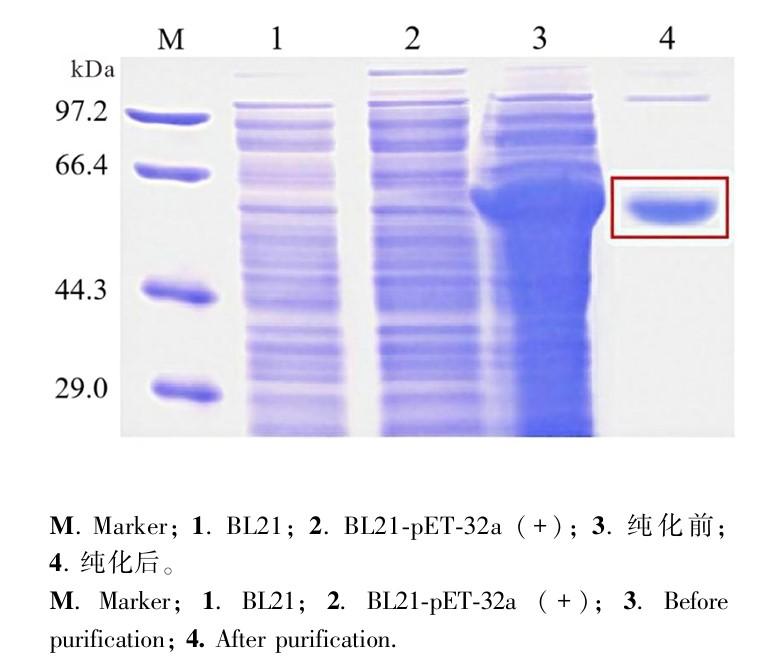
图
6
可溶性重组蛋白的纯化与浓缩
Fig.
6
Purification and concentration of soluble recombinant protein
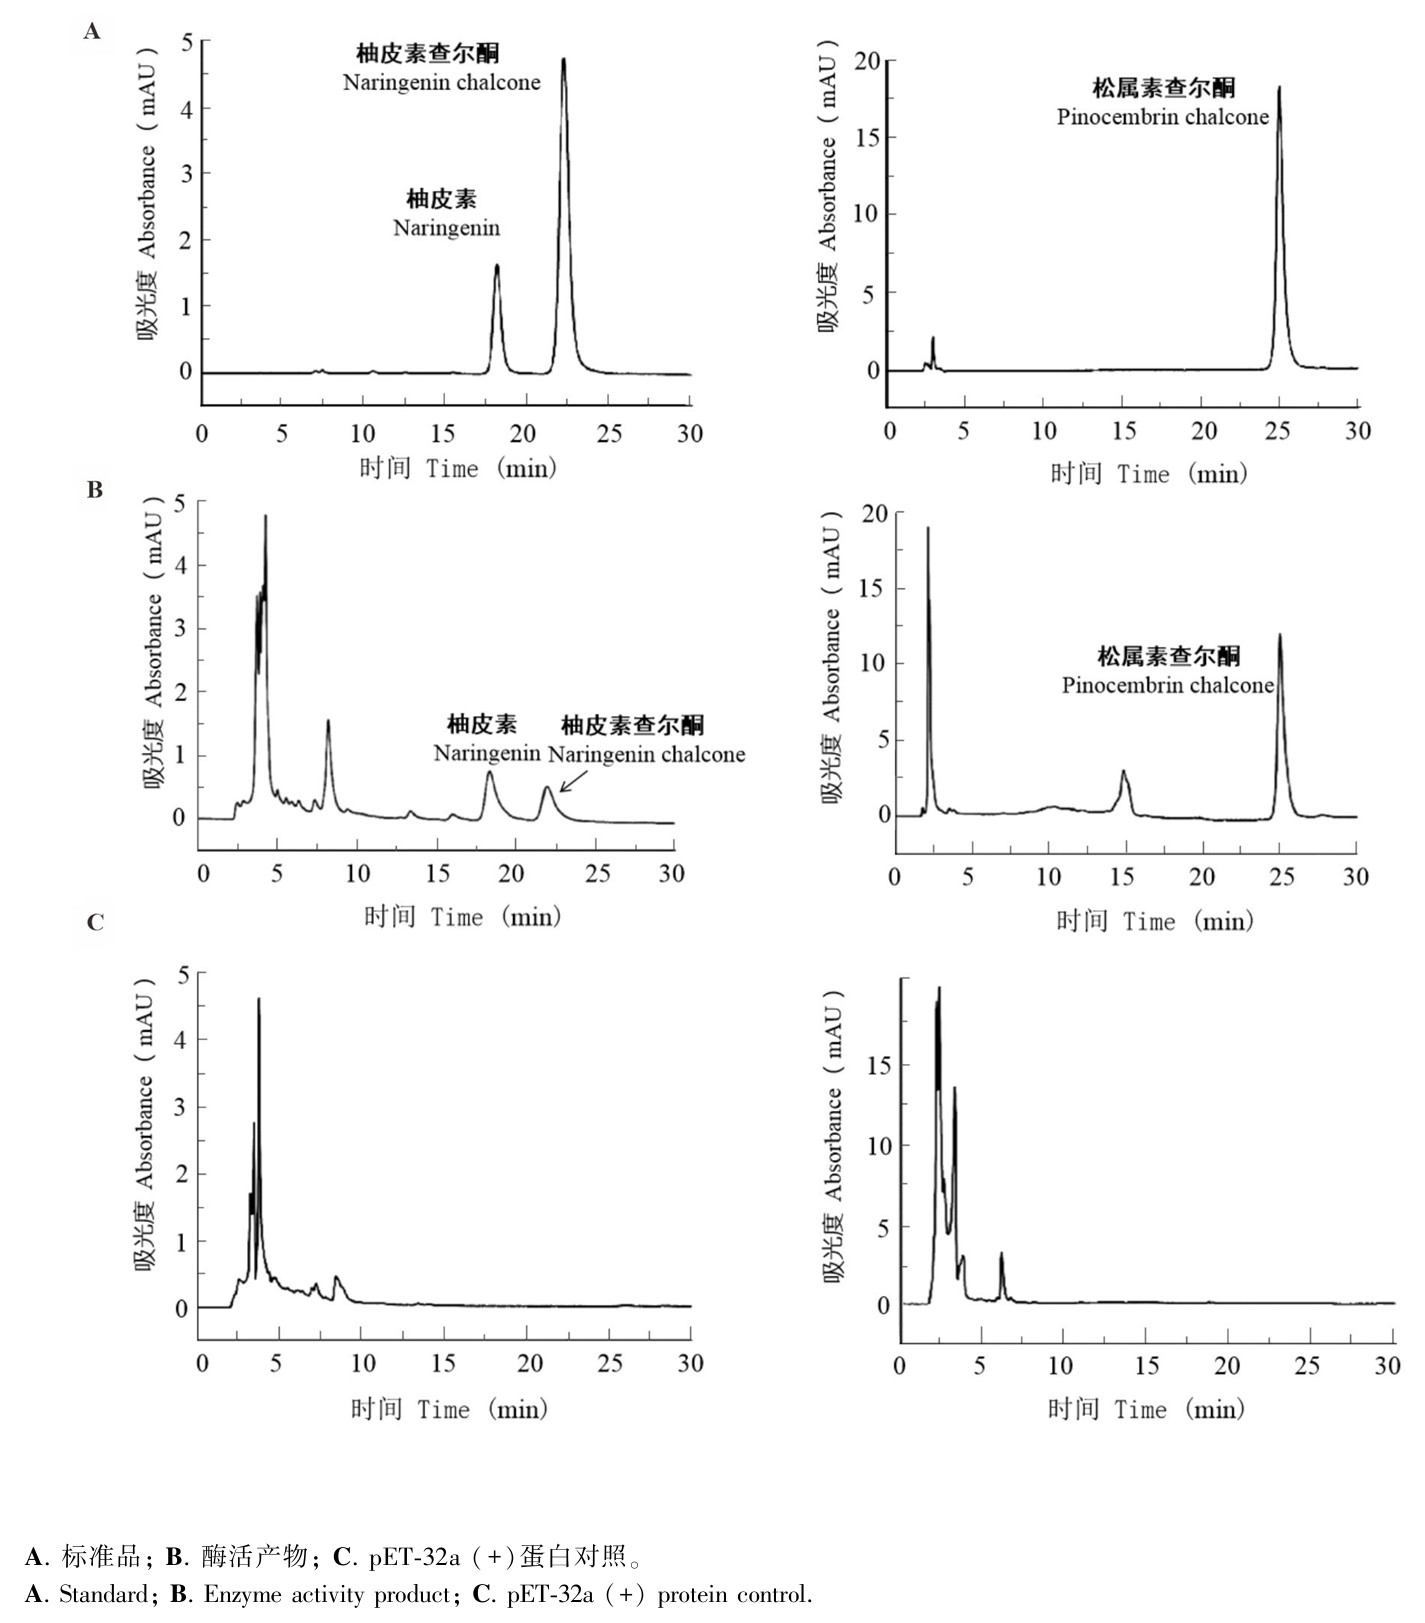
图
7
RdCHS2体外酶活检测
Fig.
7
Enzymatic assay of RdCHS2 in vitro
大多数CHS基因在花器官中高度表达,其基因产物通常参与花青素苷的生物合成,在不含花青素苷的器官中表达的CHS基因可能在其他黄酮类化合物的生物合成中发挥重要作用,执行不同的功能(Pang et al., 2005)。例如,在余甘子中,PeCHS的表达量在花朵中最低,在成熟果实和叶片中表达量最高,以致成熟果实与叶片中的无色黄酮醇及其衍生物积累最多(Singh et al., 2019);苹果MdCHSs在幼叶中表达量最高,其表达量与根皮素二氢查尔酮的形成密切相关(Yahyaa et al., 2017)。RdCHS2在马缨杜鹃花葶中表达量最高,且随着花朵的开放表达量逐渐升高,与马缨杜鹃中花青素苷的积累模式不一致(Sun et al., 2022)。这表明RdCHS2在马缨杜鹃花色形成过程中没有发挥主要作用,或在马缨杜鹃中还存在其他CHS基因主要参与花青素苷的合成。在本研究中,RdCHS2可催化丙二酰辅酶A与香豆酰辅酶A反应产生柚皮素查尔酮,证明RdCHS2确实为CHS且可以发挥催化作用。同时,RdCHS2还能以丙二酰辅酶A和肉桂酰辅酶A为底物反应产生松属素查尔酮,表明其很可能是一个多功能CHS,不仅可以参与花青素苷的合成还可以参与艾纳香素的合成,这与上述表达分析的结果相一致。然而,为进一步证明RdCHS2是否确实为一个多功能CHS,还需要选择更多的底物对其催化功能进行解析。
图
8
RdCHS2真核表达载体构建
Fig.
8
Eukaryotic expression vector construction of RdCHS2
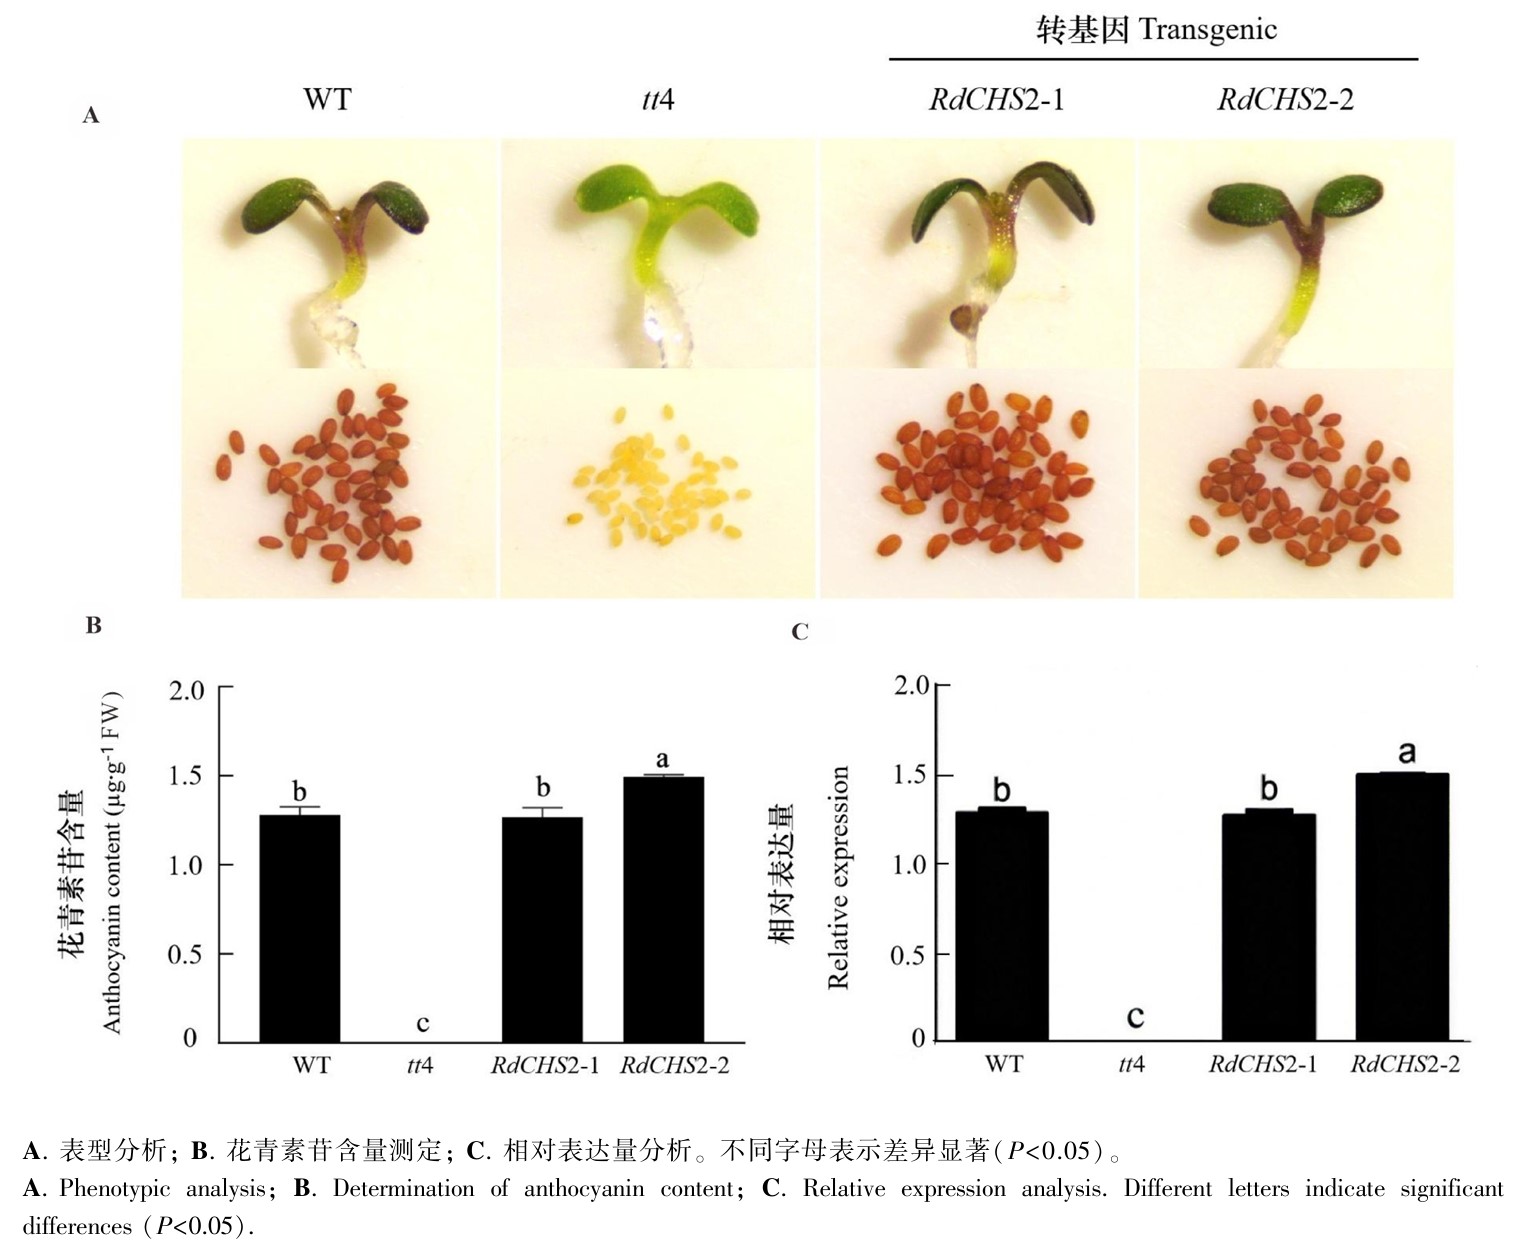
图
9
RdCHS2在拟南芥tt4突变体中的功能互补
Fig.
9
Functional complementarity of RdCHS2 in Arabidopsis thaliana tt4 mutant
拟南芥tt4突变体因CHS功能异常,类黄酮合成途径中断,导致突变体植株呈现黄色种皮与绿色子叶和下胚轴。本研究结果显示,RdCHS2可以将tt4突变体种皮由黄色恢复为棕色,使幼苗由绿色恢复为紫色,证明RdCHS2的导入使拟南芥的类黄酮生物合成恢复正常,表明RdCHS2是AtCHS的功能直系同源基因,具有相似的生物学功能,在类黄酮生物合成中发挥着重要作用,这与短柄草BdCHS的研究结果(Wang et al., 2023)相同。在前期研究中,RdCHS1(Huang et al., 2024)的导入同样能恢复tt4突变体的表型,但其无法催化丙二酰辅酶A和肉桂酰辅酶A反应产生松属素查尔酮,这表明RdCHS1在马缨杜鹃花色形成中发挥主要作用,RdCHS2可能发挥协同作用,而其更倾向于参与除花青素苷以外的其他黄酮类物质的合成。
对鸢尾(Iris halophila)、三角叶杨(Populus trichocarpa)、水母雪莲(Saussurea medusa)、白木香(Aquilaria sinensis)、龙血树(Dracaena cambodiana)等植物的研究发现,CHS除参与花色调控外,还在植物黄酮类化合物合成,茉莉酸及细胞分裂素信号传导中发挥重要作用,并通过增强植物抗逆性,提高植物对炭疽病、灰霉病和霜霉病的抗性(Sun et al., 2011; Wang et al., 2017; 郭泽西等,2022; Liu et al., 2025)。然而,RdCHS2是否能增强植物对非生物胁迫的适应性,尚需进一步研究。