摘要
岩黄连为罂粟科紫堇属多年生草本药用植物,生长于喀斯特地区的岩缝中,也是国家二级保护植物。DELLA蛋白是植物特有的一类转录因子,在植物生长发育中起重要作用。为探究DELLA蛋白在岩黄连生长发育中的功能,该研究基于岩黄连不同组织转录组及不同组织混样全长转录组数据,克隆获得2个DELLA类基因CsDELLA1和 CsDELLA2的编码区序列(CDS),并进一步对其进行了理化性质、结构、转录本相对表达量,以及转录自激活核心区域的鉴定和分析。结果表明:(1)CsDELLA1和 CsDELLA2的CDS 全长分别为1 902 bp和1 614 bp,分别编码633个和537个氨基酸。(2)实时荧光定量PCR结果显示,2个CsDELLAs转录本相对表达量具有显著的叶组织特异性。(3)氨基酸序列同源性比对及进化树分析结果显示,2个CsDELLAs均具有保守的DELLA结构域和GRAS结构域,并且二者均与罂粟科DELLA家族成员具有较高的相似性。(4)蛋白质结构分析结果表明,α-螺旋是CsDELLA1 和CsDELLA2的主要二级结构,并且二者的蛋白三维构象也相似。(5)2个CsDELLAs均具有转录自激活能力,但激活结构域有差异。CsDELLA1和CsDELLA2,以及截断序列CsDELLA1-N52-119 aa、CsDELLA1-N120-259 aa、CsDELLA1-C260-633 aa和CsDELLA2-C93-537 aa均具有自激活能力;而二者的N端序列CsDELLA1-N1-51 aa和CsDELLA2-N1-92 aa则无自激活能力。该研究为后续进一步探究CsDELLAs与其他转录因子间的相互作用,以及在岩黄连生长发育中的生物学功能奠定了基础。
Abstract
Corydalis saxicola, a perennial herbaceous plant of the Papaveraceae family in the genus Corydalis, grows exclusively in karst rock crevices. C. saxicola is also a Chinese national second-class protected plant. DELLA proteins, plant-specific transcriptional factors, play crucial regulatory roles in plant growth and development. In order to explore the function of DELLA proteins in the growth and development of C. saxicola, coding sequence (CDS) of two DELLA-like genes, CsDELLA1 and CsDELLA2, were identified and amplified based on full-length transcriptome and transcriptome data of different tissues of C. saxicola. Molecularly, the physical and chemical properties, structures, the relative expression levels of their transcripts, and key domain transcriptional autoactivation of the two DELLAs were analyzed. The results were as follows: (1) The length of CsDELLA1 and CsDELLA2 CDS were 1 902 bp and 1 614 bp, encoding 633 amino acids (aa) and 537 aa, respectively. (2) Quantitative real-time PCR results showed that the relative expression levels of the two DELLA transcripts were exclusively high in the leaves of C. saxicola. (3) Amino acid sequence homology alignment and phylogenetic tree analysis revealed that both CsDELLA1 and CsDELLA2 possessed conserved DELLA domain and GRAS domain, and both had high similarities with members of the DELLA family of Papaveraceae. (4) The analysis results of protein structures revealed that α-helices were important components of the protein structures of CsDELLA1 and CsDELLA2, and their three-dimensional spatial arrangements were similar, too. (5) Both CsDELLAs exhibited transcriptional autoactivation capacities, but the activation domain sites differed. Specifically, CsDELLA1, CsDELLA2, as well as truncated proteins CsDELLA1-N52-119 aa, CsDELLA1-N120-259 aa, CsDELLA1-C260-633 aa, and CsDELLA2-C93-537 aa, had transcriptional autoactivation capacities; while N-terminal sequence of the two CsDELLA1-N1-51 aa and CsDELLA2-N1-92 aa showed no autoactivation capacity. This study lays a foundation for further exploration of the interactions between CsDELLAs and other transcription factors, as well as their biological functions in the growth and development of C. saxicola.
岩黄连(Corydalis saxicola)为罂粟科(Papaveraceae)紫堇属(Corydalis)植物,主要分布于广西、四川、贵州、云南等喀斯特山地,是传统的壮、瑶、苗等民族药(方鼎等,1985;广西植物研究所科学院,1991;戴斌,2009)。据《贵州草药》记载,岩黄连可全草入药,具清热解毒、利湿、止痛止血等功效(贵州省中医研究所,1970;何志超等,2014);在中医学理论中,其用途包括治疗急性腹痛、便血、肝炎、肝硬化和肝癌等(Zeng et al., 2013;Xie et al., 2021;Wu et al., 2022)。药理学研究证明,岩黄连不仅具有治疗肝脏疾病的疗效,还具有其他药理特性,如抗炎、抗菌、抗氧化、抗癌和保肝作用等(Yu et al., 2018;Li M M et al., 2018;Qiu et al., 2020;Qin et al., 2022)。野生岩黄连生存环境特殊,生长于海拔600~1 690 m的石灰岩缝中,分布零散,自然繁殖率低,长期不合理的开采已导致其野生资源日益匮乏(文和群等,1993;中国科学院中国植物志编辑委员会,1999)。为合理开发利用岩黄连种质资源,研究人员在栽培繁育、药理机制及临床疗效等方面做了很多工作(何志超等,2014;Li M M et al., 2018;于尚平等,2022;Qin et al., 2023;马永鹏等,2024),但对分子生物学方面的研究较少(Ren et al., 2021;Xu & Wang, 2021;Li et al., 2024)。
GRAS转录因子由最早发现的3个成员Gibberellic acid insensitive(GAI)、Repressor of GAI-3 mutant(RGA)和Scarecrow(SCR)的特征字母命名。GRAS转录因子在植物生长过程中具有关键的作用,参与赤霉素(gibberellins,GA)信号转导、维持枝条分生组织、植物生长发育和协助植物应对胁迫等多种生理过程。目前,在拟南芥(Arabidopsis thaliana)和水稻(Oryza sativa)中发现的GRAS家族成员可分为8个亚族:Light signaling through interactions light-responsive transcription factor PIFs(LI-PIFs)、Scarecrow-like3(SCL3)、Short-root(SHR)、SCR、Lateral suppressor(LAS)、Hairy meristem(HAM)、DELLA 和 Phytochrome a signal transduction 1(PAT1)(Hirsch et al., 2009;Anfang & Shani,2021)。其中,DELLA蛋白因其具有高度保守N端DELLA结构域而得名(Hirsch et al., 2009)。作为 GRAS 转录因子家族的一个重要亚家族,DELLA 蛋白特异性地分布于植物中,作为赤霉素(GA)信号通路的重要负调控因子,它在种子萌发、幼苗生长、叶片发育、根和茎伸长及果实成熟等植物生长发育过程中具有关键作用(Hedden & Sponsel,2015)。此外,DELLA蛋白也在开花时间调控、成花时期转换及花器官发育中扮演重要的角色(Hedden & Sponsel,2015)。例如,拟南芥的5个DELLA蛋白gibberellin-insensitive(GAI)、repressor of gal-3(RGA)、RGA-like 1(RGL1)、RGL2和RGL3均可显著抑制开花(Galvão et al., 2012)。
DELLA无DNA结合结构域,因此其通常需要与其他蛋白发生相互作用来参与生物学过程。在GA信号通路中,活性GA先被受体GA-INSENSITIVE DWARF 1(GID1)识别,之后GID1与DELLA蛋白间的相互作用便开始形成(Xu & Wang, 2021)。一旦GA-GID1-DELLA复合体形成,其他GA信号蛋白(如F-box蛋白)便很快参与其中,通过泛素化-蛋白酶体途径降解DELLA蛋白,传递GA信号(Ariizumi et al., 2011),促进种子萌发、根与茎的伸长等(Sun,2010)。此外,DELLA也可以与其他蛋白发生相互作用。例如,水稻的DELLA蛋白可与组蛋白脱乙酰酶HDA702蛋白相互作用,抑制GA下游基因的表达(Li et al., 2023)。DELLA还可与光敏色素相互作用因子(phytochrome interacting factor)和BRASSINAZOLE RESISTANCE 1相互作用,抑制其DNA结合活性,进而抑制下胚轴伸长(Fernández et al., 2016;Ito et al., 2018;Li et al., 2023)。有研究进一步发现,DELLA蛋白N端的DELLA结构域(DELLA/TVHYNP基序)不仅能与GID1-GA复合物结合,而且还能增强SLEEPY 1(SLY1)/GID之间的相互作用(Zhu et al., 2019;Blanco-Touriñán et al., 2020)。在开花调控方面,DELLA蛋白可与促进开花的转录因子SQUAMOSA PROMOTER BINDING PROTEIN-LIKE发生蛋白水平上的相互作用,干扰后者的转录调控活性,进而延迟开花(Chorostecki et al., 2021)。此外,DELLA蛋白的LHRI结构域还可与FLOWERING LOCUS C发生相互作用,进而下调成花促进因子SUPPRESSOR OF OVEREXPRESSION OF CONSTANS 1及成花素FLOWERING LOCUS T的表达,延迟拟南芥开花(Li et al., 2016)。在长日照下,拟南芥的RGA可与CONSTANS发生蛋白水平上的相互作用,干扰后者与转录因子NF-YB2的相互作用,以延迟拟南芥开花(Fernández et al., 2016)。
截至目前,研究人员已在拟南芥(Wen & Chang, 2002)、水稻(Ikeda et al., 2001)、小麦(Peng et al., 1999)、草莓(Li W J et al., 2018)等多种植物中鉴定到了DELLA蛋白,并对它们的功能和调控机制进行了深入研究,但关于岩黄连中DELLA蛋白编码基因的挖掘及其蛋白功能的鉴定尚未有报道。
本研究基于转录组和全长转录组数据,从岩黄连中克隆到2个DELLA蛋白编码基因CsDELLA1和CsDELLA2。采用PCR、实时荧光定量PCR(quantitative real-time PCR,qRT-PCR),以及基于GAL4系统的酵母双杂交等试验手段,利用分析软件,对这2个DELLAs基因及其编码的蛋白进行深入分析,拟探讨以下问题:(1)岩黄连CsDELLA1和CsDELLA2蛋白序列的保守性和进化特性;(2)CsDELLA1和CsDELLA2转录本在不同组织中的表达特性;(3)CsDELLA1和CsDELLA2在Y2HGold酵母细胞中的转录自激活能力。本研究旨在为阐释CsDELLAs在岩黄连生长发育中的功能提供数据支持,为进一步鉴定与其相互作用的蛋白奠定技术基础,丰富岩黄连分子生物学研究内容,并为解析DELLA蛋白在协助岩黄连对喀斯特生境高钙、干旱等逆境响应的分子机制奠定基础。
1 材料与方法
1.1 实验材料
研究材料由广西壮族自治区药用植物园种质资源圃保存,经广西壮族自治区药用植物园高级工程师黄宝优鉴定为罂粟科紫堇属植物岩黄连。
实验所需的2×Phanta Max Master Mix、2×Rapid Taq Master Mix、FastPure Universal Plant Total RNA Isolation Kit、5 minTM TA/Blunt-Zero Cloning Kit、FastPure Gel DNA Extraction Mini Kit、FastPure Plasmid Mini Kit、ClonExpress Ⅱ One Step Cloning Kit、HiScript Ⅱ 1st Strand cDNA Synthesis Kit(+gDNA Wiper)均购自南京诺唯赞生物科技股份有限公司(中国);大肠杆菌Trans-T1化学感受态细胞购自北京全式金生物技术股份有限公司(中国);FastDigest EcoRⅠ、10×FastDigest Green Buffer购自赛默飞世尔科技公司(马萨诸塞州,美国);Y2HGold化学感受态细胞购自上海唯地生物技术有限公司(中国);pGBKT7载体由本实验室保存;引物合成和测序工作由广州天一辉远基因科技有限公司(中国)完成。
1.2 方法
1.2.1 岩黄连总RNA提取及反转录
取适量新鲜的岩黄连成熟叶片放入液氮中研磨,采用FastPure Universal Plant Total RNA Isolation Kit提取岩黄连叶片总RNA。具体步骤:将100 mg充分研磨的组织加入600 μL裂解液中,充分裂解离心后取上清,用带滤膜的离心柱离心过滤,以去除基因组DNA。再用带滤膜的离心柱富集RNA,并用无水乙醇等去除杂质后,用50 μL无RNA酶污染的去离子水回收RNA,即为岩黄连叶片总RNA。其他组织的总RNA提取方法类似。
反转录采用HiScript Ⅱ 1st Strand cDNA Synthesis Kit(+gDNA Wiper),基于说明书的步骤进行。具体如下:将上述提取的总RNA与Oligo(dT) 23 VN(50 μmol·L-1)和Random hexamers(50 ng·μL-1)在65 ℃加热5 min以充分变性,打开二级结构。冰上静置2 min后,在上述混合物中加入4 × gDNA Wiper Mix,42 ℃反应2 min,以充分去除可能残留的基因组DNA。反应完毕后,再继续向上述混合物中加入适当比例的10 × RT Mix以及HiScript Ⅱ Enzyme Mix,依次25 ℃反应5 min、50 ℃反应45 min,最后85 ℃反应2 min以灭活反转录酶,所得溶液即为岩黄连组织cDNA。其他组织的产物保存于-20 ℃冰箱备用。
1.2.2 CsDELLA1、CsDELLA2基因编码区序列及截断序列的克隆
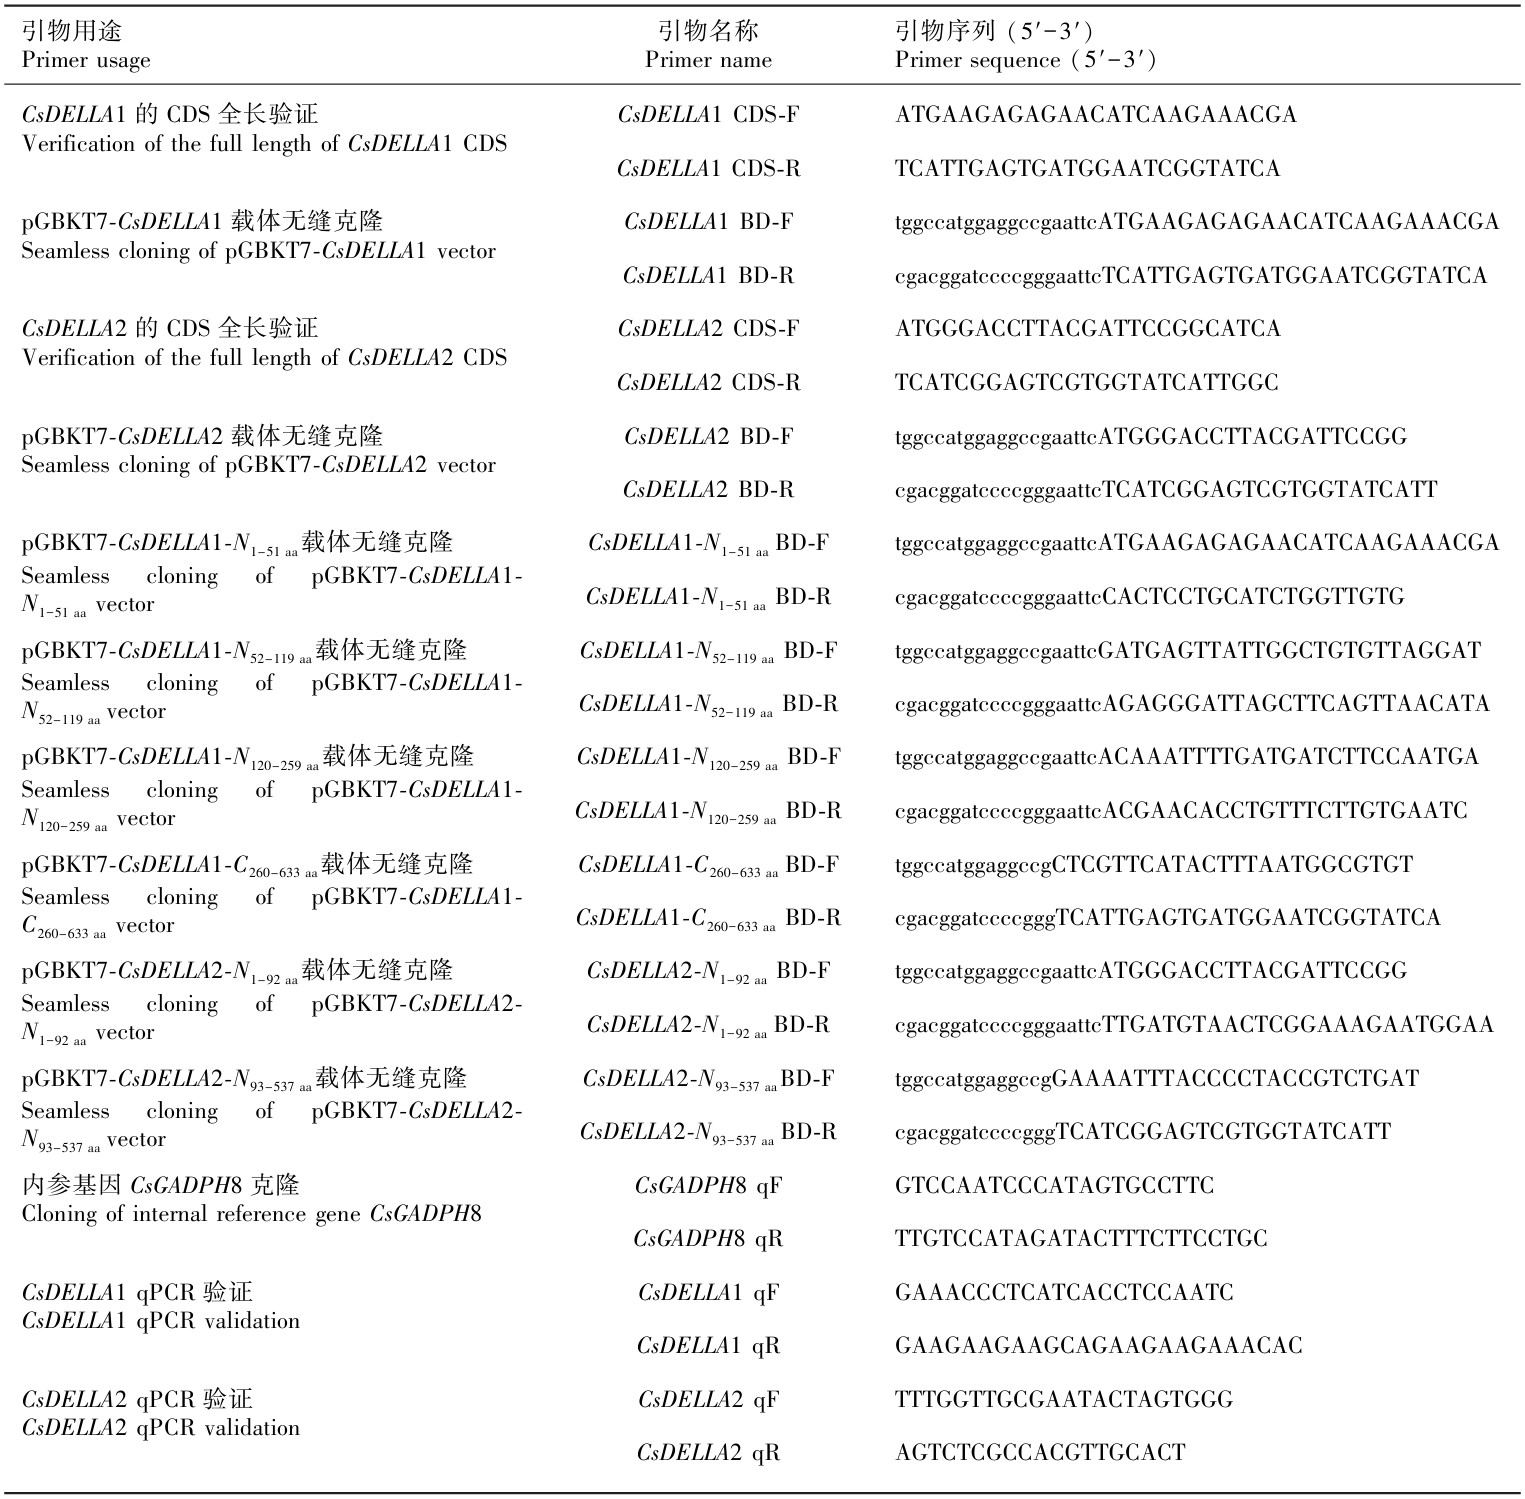
基于本实验室测定的岩黄连全长转录组信息,设计基因扩增引物,以岩黄连根、茎、叶、花、侧茎等不同组织的混样cDNA为模板扩增完整的CsDELLA1和CsDELLA2基因编码区(表1)。将纯化后的PCR产物与Blunt-Zero载体连接,转化至大肠杆菌Trans-T1化学感受态细胞,在LB+卡那霉素平板上进行培养筛选。挑取若干菌落于LB+卡那霉素液体培养基,摇菌培养至菌液浑浊。蘸取适量菌液,用CsDELLA1 CDS-F、CsDELLA1 CDS-R及CsDELLA2 CDS-F、CsDELLA2 CDS-R引物进行菌液PCR检测,将筛选到的阳性克隆菌液送至广州天一辉远基因科技有限公司进行测序。
基于生物信息学分析结果,将CsDELLA1和CsDELLA2序列分别进行N端和C端的截断,CsDELLA1-N端共截成3段,即CsDELLA1-N1-51 aa、CsDELLA1-N52-119 aa、CsDELLA1-N120-259 aa,CsDELLA1-C端为CsDELLA1-C260-633 aa。CsDELLA2-N端为CsDELLA2-N1-92 aa;CsDELLA2-C端为CsDELLA2-C93-537 aa。按照CsDELLA1、CsDELLA2、截断序列及pGBKT7载体基于EcoRⅠ限制性内切酶酶切位点设计同源重组引物(表1)。CsDELLA1和CsDELLA2的编码区序列(coding sequence,CDS)以岩黄连不同组织的混样cDNA为模板扩增并纯化,截断序列以Sanger测序正确且含有CsDELLA1和CsDELLA2的CDS的TA重组质粒为模板,PCR扩增目的片段并纯化。
1.2.3 CsDELLA1、CsDELLA2基因表达分析
设计CsDELLA1和CsDELLA2荧光定量PCR引物(表1)对克隆的CsDELLA1和CsDELLA2基因进行分析。以CsGADPH8为内参基因,分析CsDELLA1和CsDELLA2基因在岩黄连侧茎、果荚、花、叶、茎和根中的相对表达量。实验设置3个生物学重复和3个技术重复,相对表达量采用2-ΔΔCt法计算。
1.2.4 CsDELLA1、CsDELLA2蛋白的生物信息学分析
应用ExPASy ProtParam在线软件(http://web.expasy.org/protparam/)进行蛋白相对分子质量、等电点等蛋白性质分析;应用在线软件SOPMA(https://npsa-prabi.ibcp.fr/)和SWISS-MODEL(https://www.expasy.org/resources/swiss-model)进行蛋白二级结构组分预测和三维结构预测;通过BLAST(https://blast.ncbi.nlm.nih.gov/Blast.cgi)查找DELLA同源序列及ORFfinder(https://www.ncbi.nlm.nih.gov/orffinder)查找CsDELLA1、CsDELLA2的开放阅读框;通过在线软件 MEME(http://meme-suite.org/tools/meme)进行保守结构域分析;利用Mafft软件(Katoh & Standley,2013) 进行CsDELLA1、CsDELLA2蛋白序列比对,再利用MEGA软件(Tamura et al., 2021)基于邻接(neighbor-joining,NJ)法构建系统进化树,bootstrap次数设置为1 000;通过DNAMAN软件进行氨基酸序列同源性比对。
表
1
本研究所用引物
Table
1
Primers used in this study
注:小写字母为载体同源臂序列,大写字母为基因序列。
Note: The lowercase letters represent the homologous arm sequence of the vector, while the capital letters represent the gene sequence.
1.2.5 重组质粒构建及鉴定
根据CsDELLA1、CsDELLA2、截断序列及pGBKT7载体EcoRⅠ酶切位点设计CsDELLA1 BD-F/R、CsDELLA2 BD-F/R、CsDELLA1-N1-51 aa BD-F/R、CsDELLA1-N52-119 aa BD-F/R、CsDELLA1-N120-259 aaBD-F/R、CsDELLA1-C260-633 aaBD-F/R、CsDELLA2-N1-92 aa BD-F/R和CsDELLA2-C93-537 aaBD-F/R引物(表1),以Sanger测序正确的CsDELLAs重组质粒为模板,PCR扩增目的片段并纯化。
使用限制性内切酶EcoRⅠ对pGBKT7载体质粒进行单酶切,通过同源重组方式,将纯化后得到的产物与目的片段进行连接,并转化至Trans-T1化学感受态细胞。将转化后的菌液涂布于LB+卡那霉素平板上,37 ℃过夜培养。挑取菌落于LB+卡那霉素液体培养基,摇菌至菌液浑浊。将菌落PCR筛选到的阳性克隆菌液送测序,测序正确的菌液进行质粒提取。
1.2.6 重组质粒自激活效应检测
根据Y2HGold化学感受态试剂盒说明书,将重组质粒pGBKT7-CsDELLA1、pGBKT7-CsDELLA2、pGBKT7-CsDELLA1-N1-51 aa、pGBKT7-CsDELLA1-N52-119 aa、pGBKT7-CsDELLA1-N120-259 aa、pGBKT7-CsDELLA1-C260-633 aa、pGBKT7-CsDELLA2-N1-92 aa、pGBKT7-CsDELLA2-C93-537 aa、pGAL4及pGBKT7空载体分别转化Y2HGold酵母感受态细胞。将菌液涂布至SD/-Trp平板上,放入29 ℃培养箱培养2~3 d。挑取重组酵母和对照酵母克隆摇菌后,分别点样于SD/-Trp、SD/-Trp/+X-α-gal/+AbA平板上,29 ℃培养3~5 d,观察其自激活能力。
2 结果与分析
2.1 岩黄连CsDELLA1、CsDELLA2基因的克隆
基于岩黄连转录组和全长转录组测序结果,筛选出2个DELLA类基因。从岩黄连中提取总RNA,反转录成cDNA。以CsDELLA1 CDS-F、CsDELLA1 CDS-R,以及CsDELLA2 CDS-F、CsDELLA2 CDS-R为引物,PCR扩增CsDELLA1和CsDELLA2的CDS。将目的片段连接到Blunt-Zero载体上,转化大肠杆菌(Escherichia coli)后进行测序,克隆得到的CsDELLA1和CsDELLA2基因无碱基突变,完整编码区长度分别为1 902 bp和1 614 bp(CsDELLA1和CsDELLA2的GenBank登录号分别为PV176315和PV176316)。
以Sanger测序成功的CsDELLA1和CsDELLA2的TA重组质粒为模板,设计同源重组引物,扩增CsDELLA1、CsDELLA2、CsDELLA1-N1-51 aa、CsDELLA1-N52-119 aa、CsDELLA1-N120-259 aa、CsDELLA2-N1-92 aa、CsDELLA1-C260-633 aa、CsDELLA2-C93-537 aa等序列,将扩增得到的产物进行纯化,测序鉴定序列正确的重组子(图1)。
2.2 CsDELLA1和CsDELLA2的转录本表达谱
以岩黄连根、茎、叶、花、侧茎等不同组织部位的cDNA为模板,检测CsDELLA1和CsDELLA2基因的表达水平。结果(图2)表明,CsDELLA1和CsDELLA2在不同组织中均有表达,并且具有相似的表达模式。二者在营养器官尤其是叶和侧茎中相对表达量较高,而在根和生殖器官花中相对表达量较低。
2.3 CsDELLA1和CsDELLA2序列的生物信息学分析
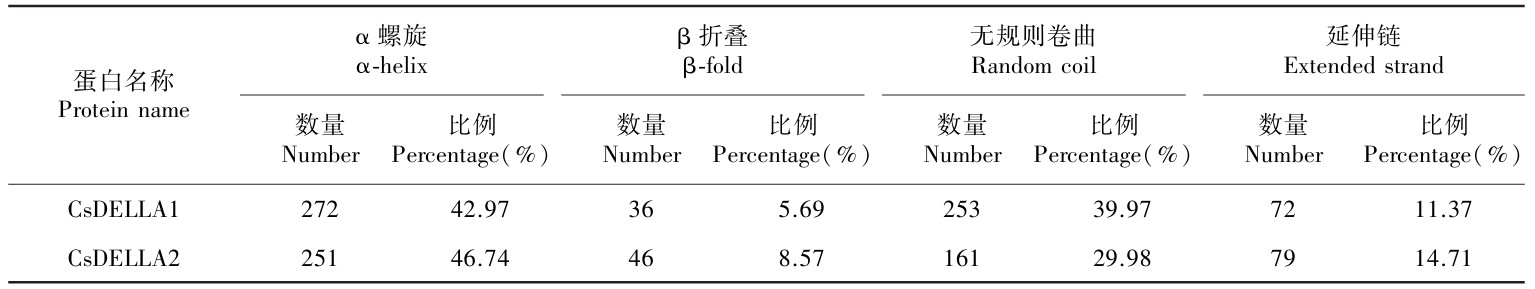
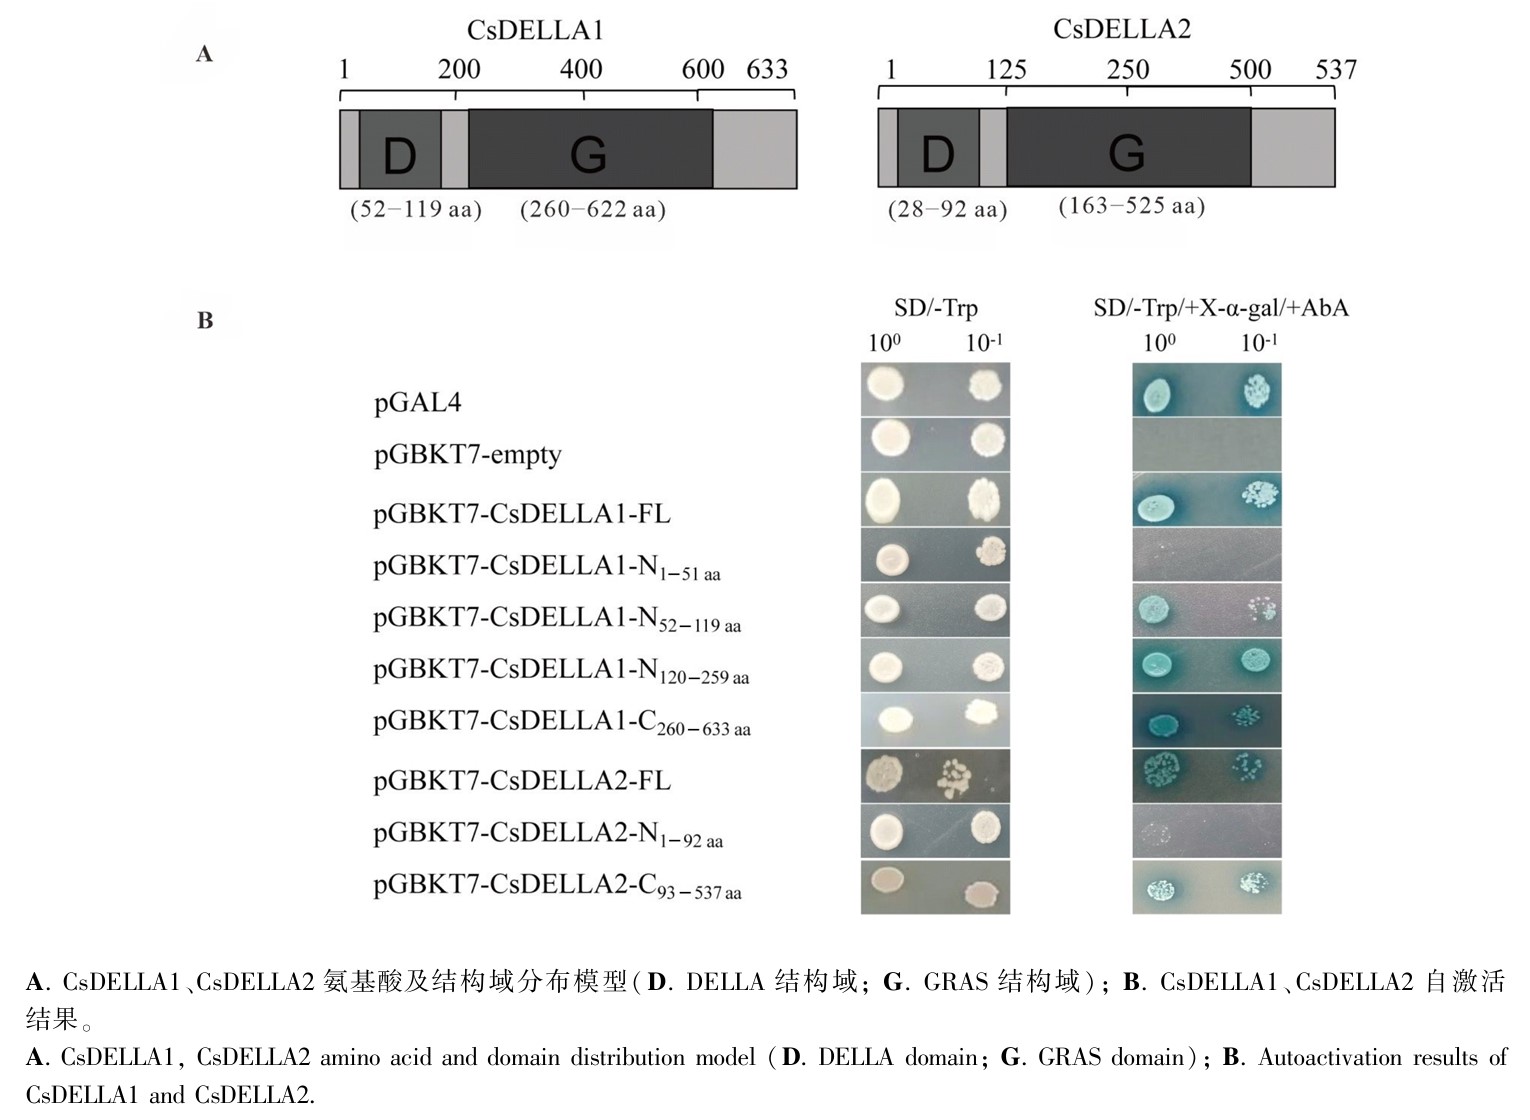
蛋白性质分析结果表明,CsDELLA1和CsDELLA2 蛋白等电点分别为5.10和5.19,相对分子质量分别为68.30 kDa和59.30 kDa。CsDELLA1带负电荷和正电荷的残基总数分别为70个和47个;CsDELLA2带负电荷和正电荷的残基总数分别为60个和40个。CsDELLA1和CsDELLA2蛋白质不稳定指数分别为50.95和49.29,说明两者蛋白结构均不稳定。氨基酸多序列比对结果(图3:A)表明,与拟南芥和水稻的DELLA蛋白类似,CsDELLA1和CsDELLA2蛋白N端均具有保守的DELLA结构域,其中包括DELLA基序和TVHYNP基序;它们的C端也均具有保守的GRAS结构域,其中包含VHVID基序和RVER基序等。CsDELLA1和CsDELLA2 蛋白的二级结构分析结果表明,其二级结构合理,含有少部分β-折叠和延伸链,大部分为α-螺旋和无规则卷曲(图3:B、C;表2)。其中,CsDELLA1和CsDELLA2的DELLA结构域分别在52~119 aa和28~92 aa,CsDELLA1和CsDELLA2的GRAS结构域分别在260~622 aa和163~525 aa。蛋白保守基序分析结果(图3:D)表明,CsDELLA1和CsDELLA2蛋白均具有N端特有的DELLA基序、LEQLE基序(motif 6)和TVHYNP基序(motif 8)。蛋白三级结构预测结果分析表明,CsDELLA1与CsDELLA2三级结构特征相似(图3:E、F)。
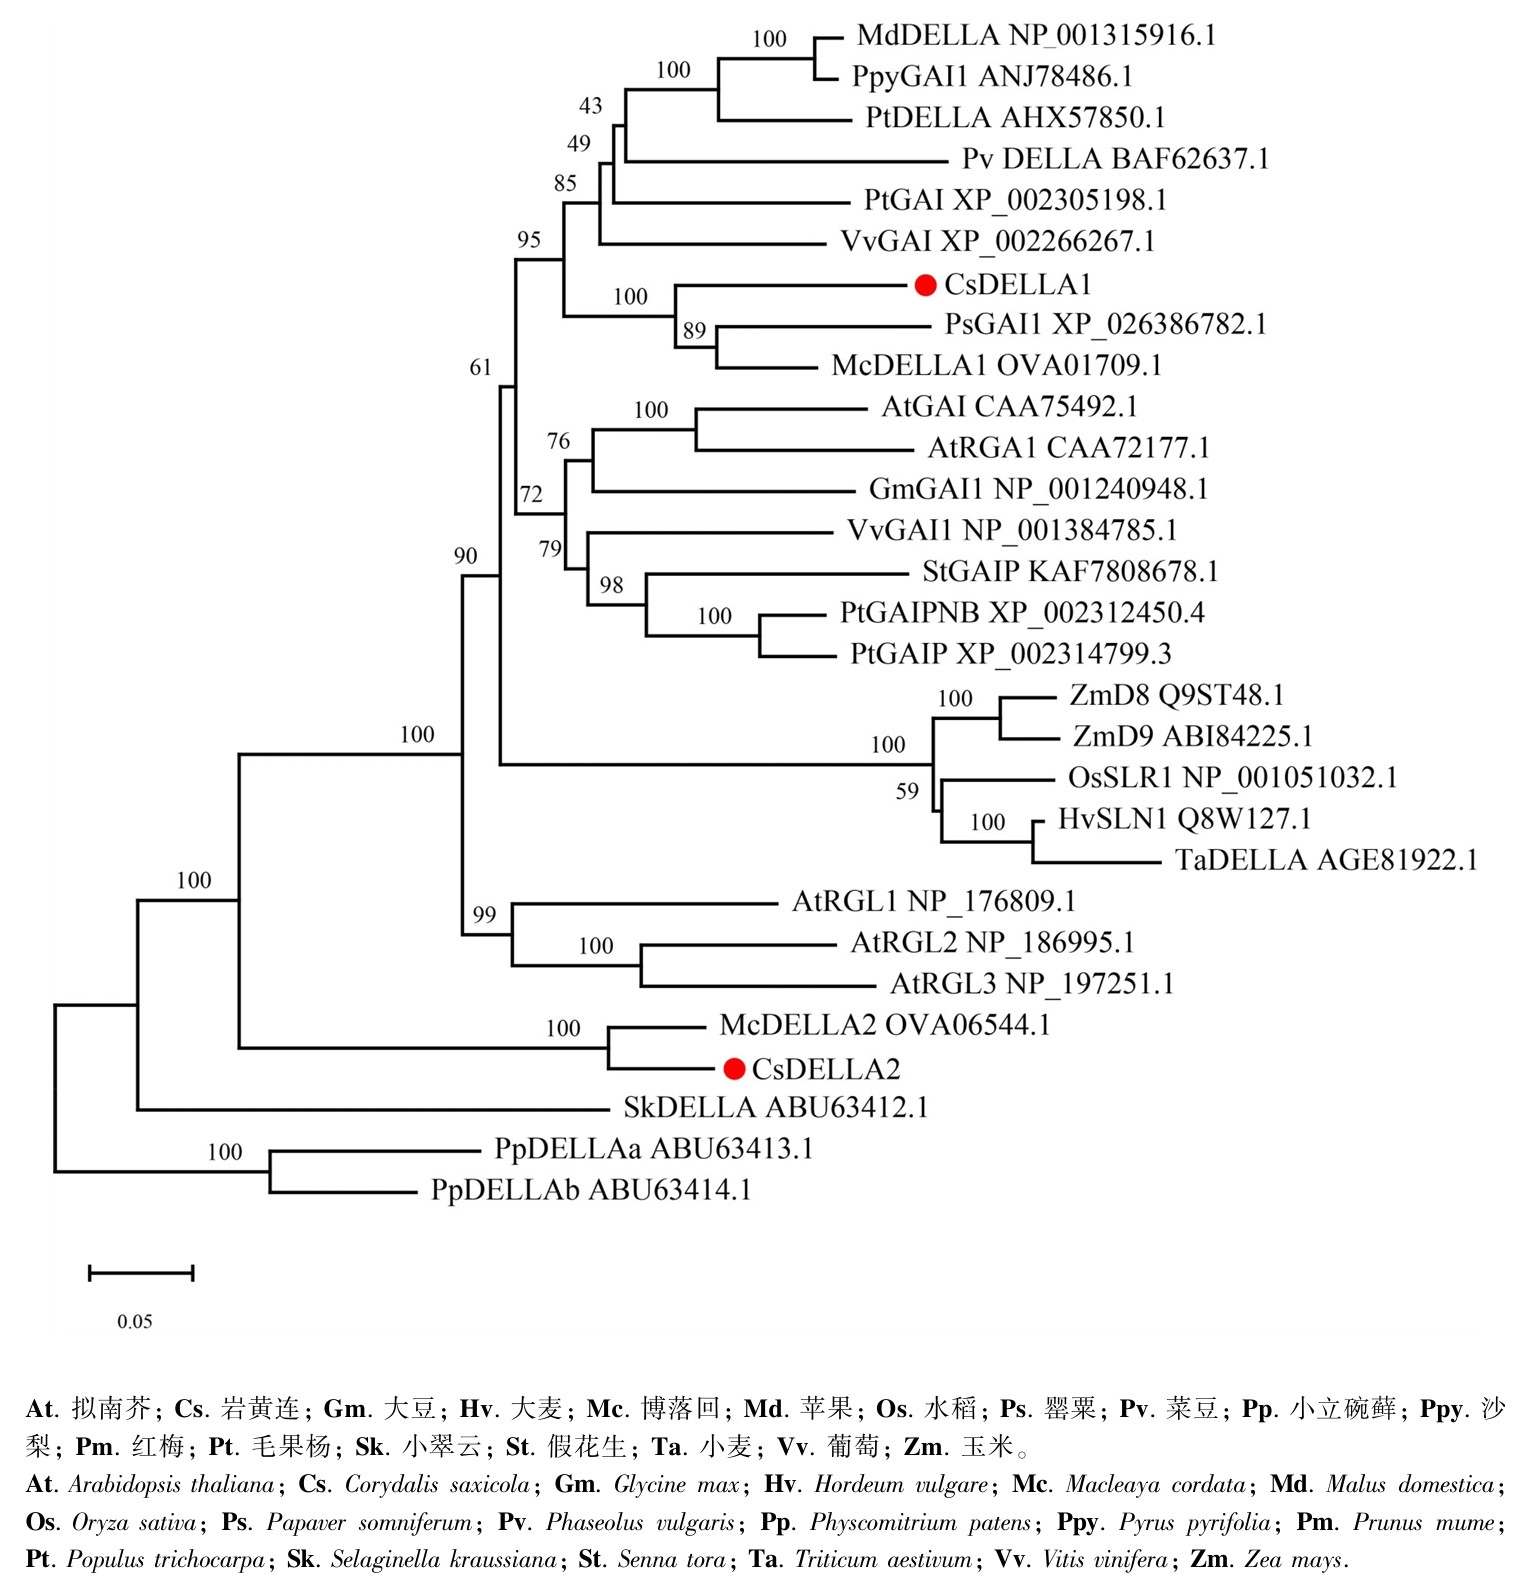
利用NCBI网站BLAST工具及参考相关文献筛选CsDELLA1和CsDELLA2相似性较高的同源序列和其他已有功能验证的DELLA序列进行进化树的绘制。结果(图4)表明,CsDELLA1与罂粟GAI1蛋白(XP_026386782.1)、博落回DELLA1蛋白(OVA01709.1)具有较高的相似性,而CsDELLA2与博落回的DELLA2蛋白(OVA06544.1)相似性较高,这与岩黄连、罂粟和博落回同属于罂粟科的分类相符。
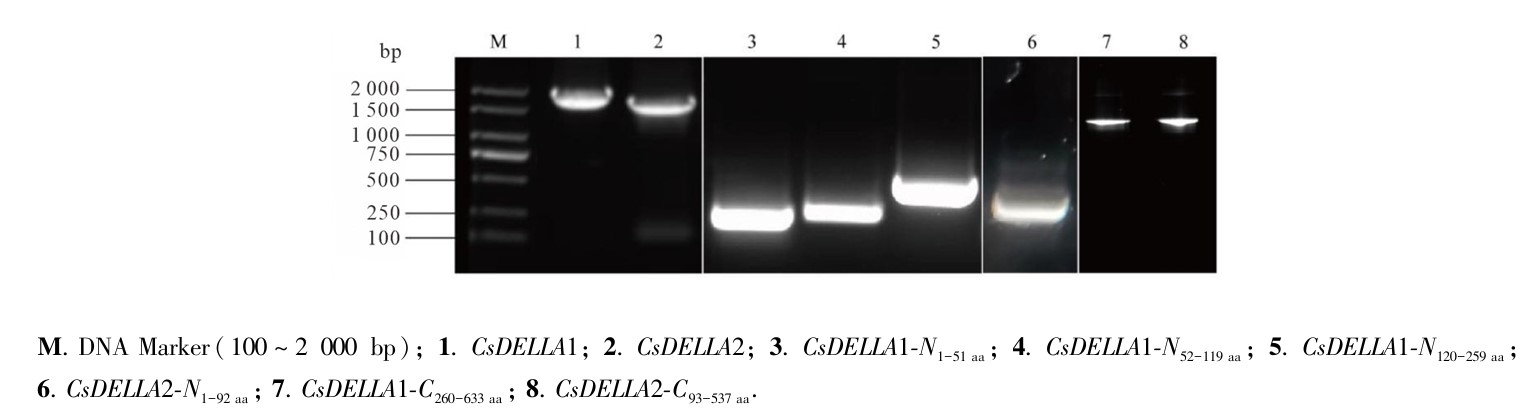
图
1
CsDELLA1、CsDELLA2基因及其截断序列的克隆
Fig.
1
Cloning of CsDELLA1, CsDELLA2 genes and their truncated fragments
表
2
CsDELLA1和CsDELLA2蛋白二级结构分析
Table
2
Secondary structure analysis of CsDELLA1 and CsDELLA2 proteins
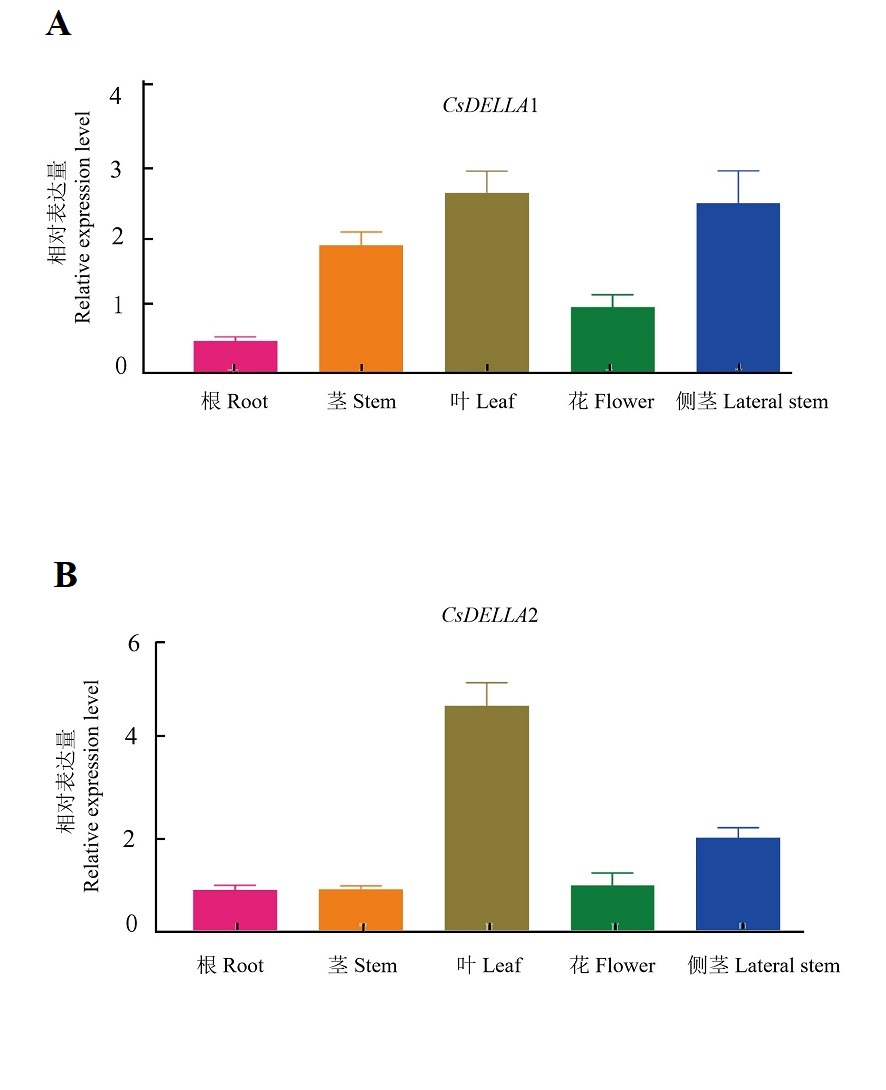
图
2
CsDELLA1和CsDELLA2转录本在岩黄连不同组织中的相对表达量
Fig.
2
Relative expression levels of CsDELLA1 and CsDELLA2 transcripts in various tissues of Corydalis saxicola
2.4 重组质粒自激活能力检测
将构建成功的重组载体pGBKT7-CsDELLA1、pGBKT7-CsDELLA2、pGBKT7-CsDELLA1-N1-51 aa、pGBKT7-CsDELLA1-N52-119 aa、pGBKT7-CsDELLA1-N120-259 aa、pGBKT7-CsDELLA1-C260-633 aa、pGBKT7-CsDELLA2-N1-92 aa、pGBKT7-CsDELLA2-C93-537 aa、pGAL4及pGBKT7分别转化至Y2HGold酵母感受态细胞,分别涂布于SD/-Trp平板上,培养2~3 d;分别挑取3个菌落点样于SD/-Trp、SD/-Trp/+X-α-gal/+AbA平板上,29 ℃培养3~5 d。实验结果显示,含有pGBKT7-CsDELLA1、pGBKT7-CsDELLA2、pGBKT7-CsDELLA1-N1-51 aa、pGBKT7-CsDELLA1-N52-119 aa、pGBKT7-CsDELLA1-N120-259 aa、pGBKT7-CsDELLA1-C260-633 aa、pGBKT7-CsDELLA2-N1-92 aa、pGBKT7-CsDELLA2-C93-537 aa、pGAL4及pGBKT7的酵母菌均能在SD/-Trp平板上正常生长且菌落为白色;含有pGBKT7-CsDELLA1、pGBKT7-CsDELLA2、pGBKT7-CsDELLA1-N52-119 aa、pGBKT7-CsDELLA1-N120-259 aa、pGBKT7-CsDELLA1-C260-633 aa、pGBKT7-CsDELLA2-C93-537 aa和pGAL4载体的酵母菌在SD/-Trp/+X-α-gal/+AbA平板上正常生长且菌落为蓝色,表明其具有转录自激活能力;pGBKT7、pGBKT7-CsDELLA1-N1-51 aa和pGBKT7-CsDELLA2-N1-92 aa的酵母菌在SD/-Trp/+X-α-gal/+AbA平板不能正常生长,表明其在Y2HGold酵母菌中无转录自激活能力(图5)。
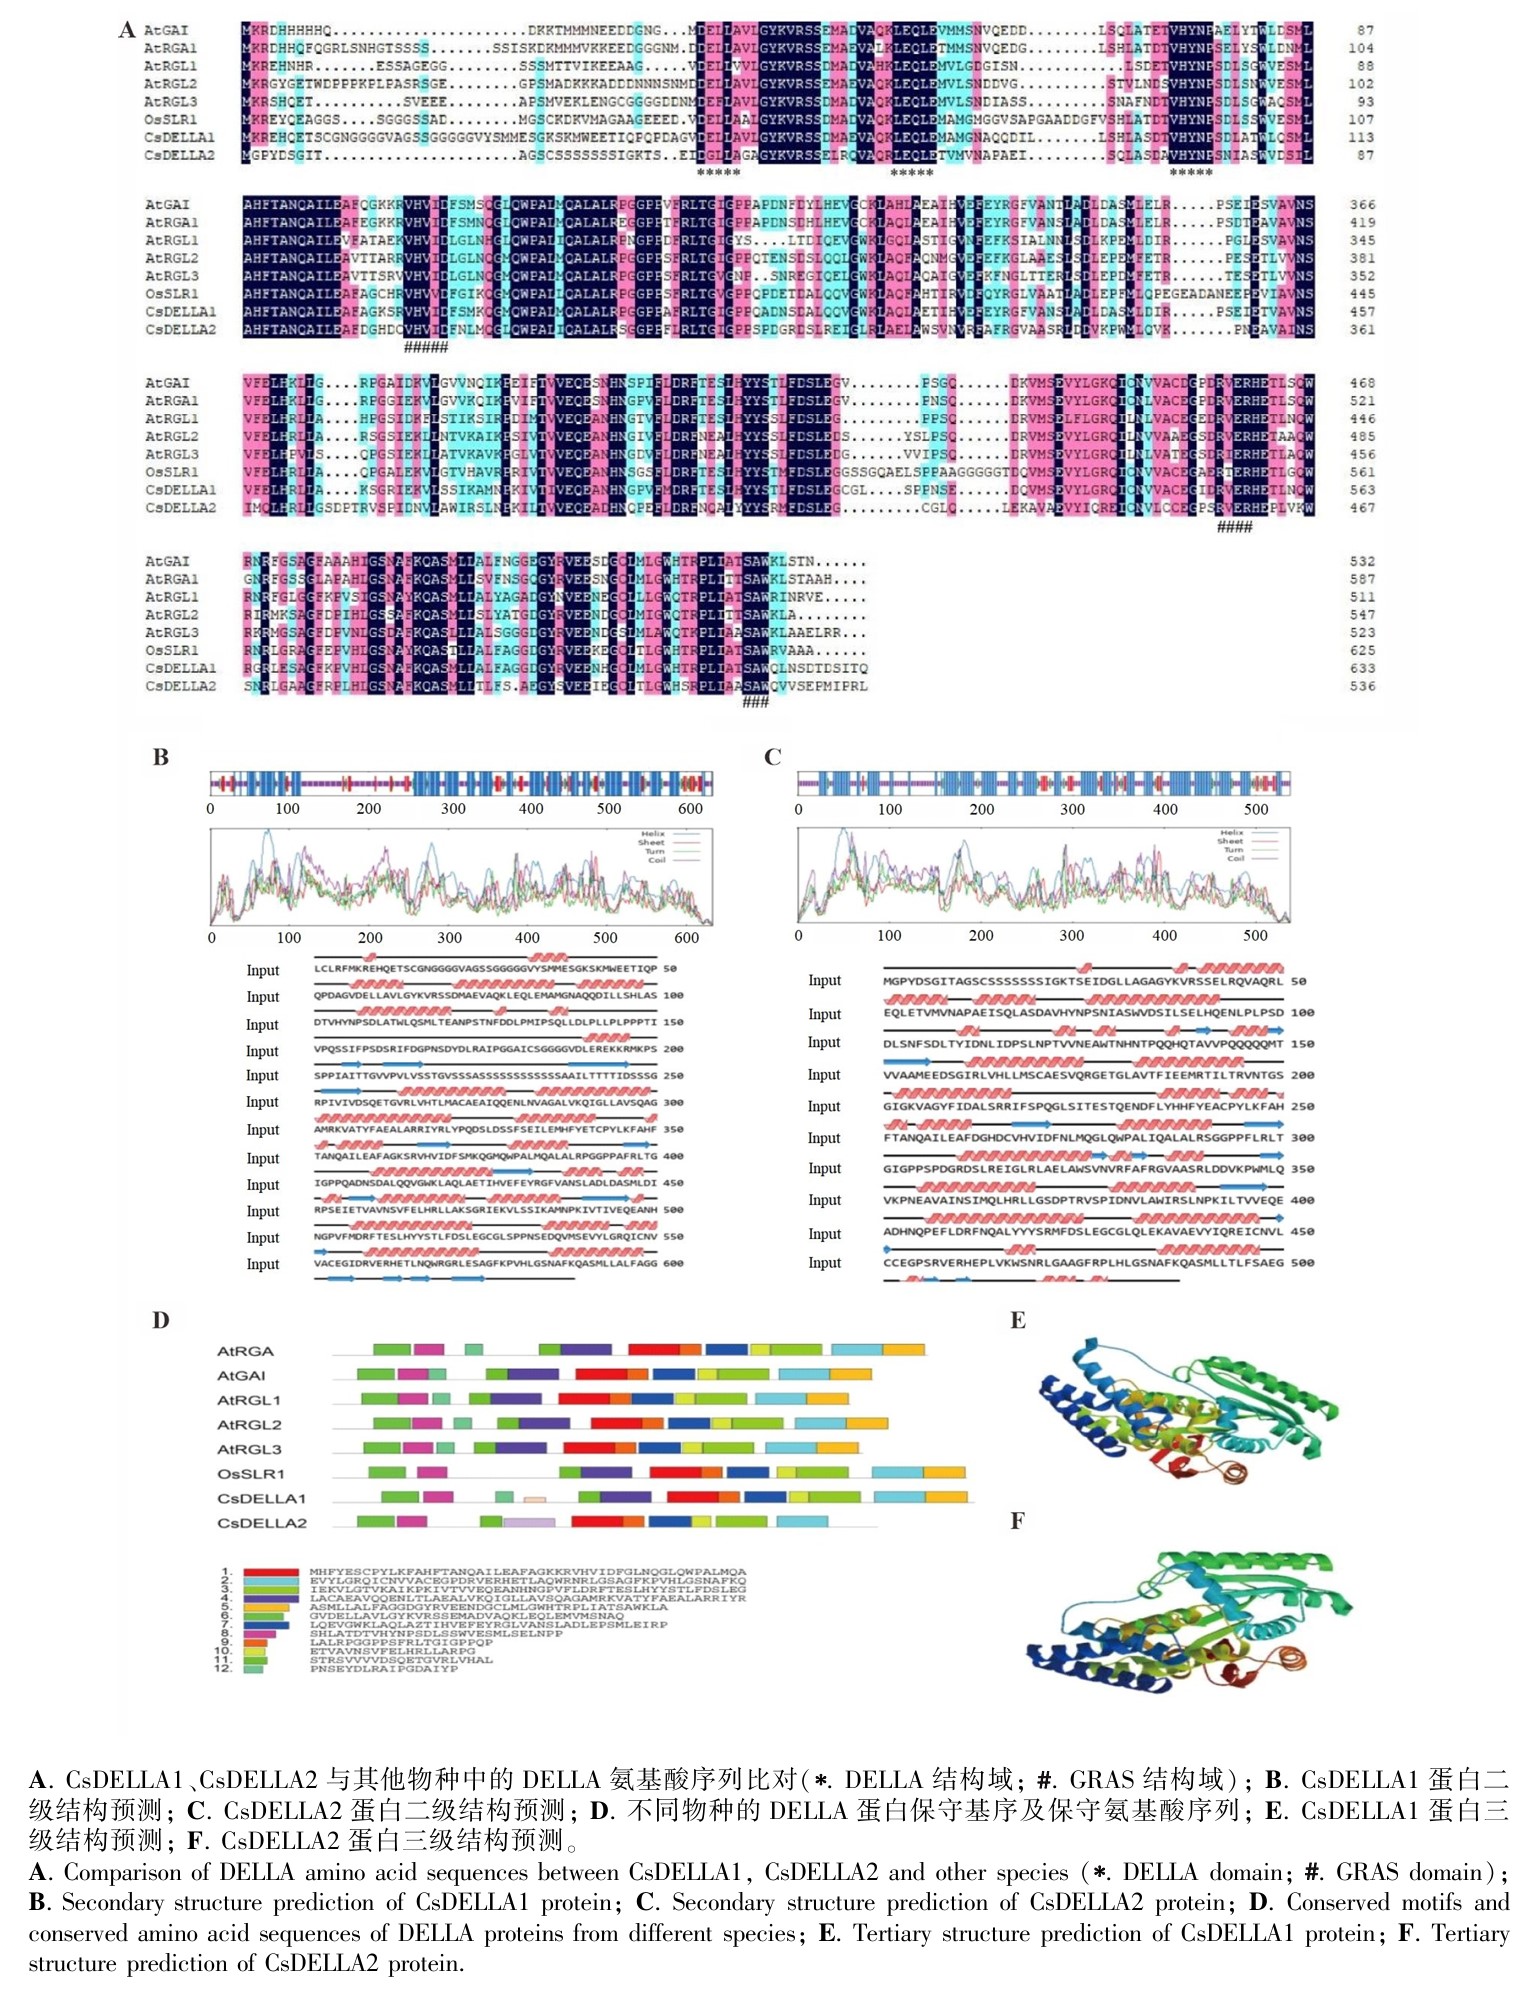
图
3
CsDELLA1和CsDELLA2的生物信息学分析
Fig.
3
Bioinformatic analysis of CsDELLA1 and CsDELLA2
图
4
CsDELLA1和CsDELLA2的分子进化树
Fig.
4
Molecular phylogenetic tree of CsDELLA1 and CsDELLA2
图
5
CsDELLA1和CsDELLA2在酵母菌上的转录自激活能力检测
Fig.
5
Transcriptional autoactivation capacity test of CsDELLA1 and CsDELLA2 in yeast cells
3 讨论与结论
GA是植物中的一个移动信号,DELLA蛋白作为GA信号转导的主要负调节因子,可以调节植物的种子发芽、茎伸长、开花过渡和繁殖力等(Binenbaum et al., 2018; Zhu et al., 2019)。
本研究中,我们从岩黄连中成功克隆了2个DELLA类基因CsDELLA1和CsDELLA2。CsDELLA1和CsDELLA2蛋白N端具有典型的DELLA结构域,包括DELLA基序、VHYNP基序及Ser/Thr/Val(多S/T/V)基序。这些基序在已知所有的植物DELLA蛋白中都高度保守,为响应GA的必需元件(Xue et al., 2022)。此外,CsDELLA1和CsDELLA2蛋白的C端也具有保守的GRAS结构域,包括2个亮氨酸重复LHR1和LHR2、可能的核定位信号、VHIID基序、Src-homology 2 like(SH2-like)基序及SAW基序(Xue et al., 2022)。已知GRAS结构域不仅在DELLA亚家族成员中具有很高的保守性,而且还是绝大多数GRAS家族蛋白的保守序列。就DELLAs亚族而言,GRAS结构域对DELLA蛋白同源二聚体的形成、蛋白活性、GA依赖的DELLA蛋白降解,以及DELLA蛋白与其他转录因子的相互作用至关重要(Hirano et al., 2010;Xue et al., 2022)。值得注意的是,尽管DELLA结构域和GRAS结构域均十分保守,但在一些植物中具有进化差异性(Wang et al., 2020)。本研究中,CsDELLA1和CsDELLA2蛋白的DELLA 基序、VHYNP 基序、VHIID 基序及SAW 基序均完全保守。此外,系统进化树分析结果表明,CsDELLA1与罂粟GAI1蛋白(XP 026386782.1)、博落回DELLA1蛋白(OVA01709.1)具有较高的相似性,而CsDELLA2与博落回的DELLA2蛋白(OVA06544.1)相似性较高。这表明罂粟科的这些DELLA蛋白具有种内和种间相似性,可能在GA信号通路中的功能也比较保守。
已知DELLA 蛋白可以负调控miRNA159的表达,抑制LEAFY的活性,调节花器官的形成(Achard et al., 2004)。本研究中,qRT-PCR结果表明,2个CsDELLAs转录本在花中相对表达量都很低,表明CsDELLAs在岩黄连中可能也是成花时期转换的负调控信号。未来可通过瞬时表达或基于岩黄连稳定遗传转化体系进一步研究CsDELLAs在岩黄连花器官发育中的功能。此外,qPCR结果还显示,2个CsDELLAs转录本在岩黄连各组织中相对表达量最低的部位为根,这可能是岩黄连为适应喀斯特生境的高钙和干旱等逆境而做出的补偿机制。
因为DELLA无DNA结合结构域,所以它们常常需要与其他蛋白发生相互作用来参与生物学过程。酵母双杂交(yeast two hybrid,Y2H)是验证蛋白-蛋白相互作用应用最广泛的技术。在开展Y2H试验之前,对靶蛋白进行转录自激活检测是剔除假阳性结果的有效手段,也是必须开展的试验。本研究中,我们基于GAL4 Y2H系统检测了CsDELLA1和CsDELLA2的转录自激活能力。结果表明,二者全长序列均具有转录自激活能力,但N端序列均无自激活能力,说明转录自激活结构域在DELLA结构域及其C端位置。截断序列的检测结果表明,CsDELLA1的DELLA结构域和GRAS结构域均具有自激活能力,而CsDELLA2的DELLA结构域无自激活能力,GRAS结构域具有自激活能力。造成二者自激活位点差异的原因可能是保守结构域内的一些非保守氨基酸的存在。已知很多物种的DELLA蛋白均具有转录自激活能力,但自激活核心区域各有异同。例如,葡萄(Vitis vinifera cv. Chardonnay)VvGAI1中的DELLA结构域和GRAS结构域均具有自激活能力(刘德帅等,2023)。参薯(Dioscorea alata)DELLA自激活区域位于N端(吴晓龙等,2023)。拟南芥5个DELLA均具有自激活能力且自激活区域也在N端(Zhang et al., 2018)。鉴于DELLA蛋白与其他蛋白发生相互作用的核心区域位于DELLA结构域中的特点(Tan et al., 2018),未来我们在进行蛋白-蛋白相互作用鉴定以确定CsDELLAs生物学功能时,可采用将CsDELLA1和CsDELLA2构建在pGADT7载体上的策略,以避开其自激活的干扰,同时辅以双分子荧光互补(bimolecular fluorescence complementation)等其他实验方法多方面验证。
综上所述,本研究从岩黄连中克隆了2个DELLA蛋白编码基因,绘制了其转录本在不同组织中的表达谱,验证了其转录自激活核心区域,为进一步鉴定其在岩黄连生长发育中的功能奠定了基础,也为揭示DELLA 蛋白是否协助岩黄连适应喀斯特生境的高钙和干旱等胁迫提供了数据支撑。