摘要
AS1和AS2基因在植物叶片发育过程中具有重要作用,然而东方百合LoAS1和LoAS2在鳞茎低温休眠过程中是否具有调控作用尚未见报道。为研究LoAS1和LoAS2与鳞茎低温休眠过程中侧生原基发育的相关性,该文通过同源克隆得到东方百合‘索邦’MYB转录因子LoAS1和LBD家族基因LoAS2,并进行系统进化树构建,利用实时荧光定量PCR、亚细胞定位等分析其表达特征。结果表明:(1)LoAS1基因编码序列长度为1 035 bp,共编码344个氨基酸;LoAS2基因编码序列长度为717 bp,共编码238个氨基酸。(2)系统进化分析显示,LoAS1与老鸦瓣、卷丹亲缘关系较近,与拟南芥、玉米、水稻等AS1同源基因亲缘关系较远;LoAS2与油棕、椰子亲缘关系较近,与玉米、水稻亲缘关系较远。(3)保守基序和结构域分析显示,LoAS1、LoAS2分别与其他植物中的同源蛋白含有相同的保守基序和N端结构域。(4)亚细胞定位结果显示,LoAS1蛋白定位于细胞核,LoAS2蛋白定位于细胞质和细胞核。(5)LoAS1和LoAS2在低温贮藏过程中,整体表达量显著高于常温组,二者均响应低温且在茎尖中上调表达,并在30~40 d表达量上升到最高。(6)石蜡切片结果显示,低温贮藏45 d时,百合鳞茎侧生原基明显增大,与LoAS1和LoAS2表达特征相吻合。该研究表明,LoAS1和LoAS2可能对百合鳞茎休眠解除过程中侧生原基的发育具有重要作用,为百合鳞茎休眠解除机制研究提供了分子依据。
Abstract
AS1 and AS2 genes play critical roles in plant leaf development, however, whether LoAS1 and LoAS2 of Lilium Oriental Hybrids play a regulatory role during bulb low-temperature dormancy has not been reported. In order to investigate the correlation between LoAS1 and LoAS2 and the development of lateral primordia during bulb low-temperature dormancy, this study obtained the Lilium oriental ‘Sorbonne’ MYB transcription factor LoAS1 and the LBD family gene LoAS2 by homologous cloning, constructed a phylogenetic tree, and analyzed their expression characteristics by RT-qPCR and subcellular localization. The results were as follows: (1) The coding sequence length of LoAS1 was 1 035 bp, encoding a total of 344 amino acids, while the coding sequence length of LoAS2 was 717 bp, encoding a total of 238 amino acids. (2) Phylogenetic analysis revealed that LoAS1 was more closely related to homologous proteins in Amana edulis and Lilium lancifolium, and most distantly related to Arabidopsis thaliana, Oryza sativa and Zea mays; LoAS2 was more closely related to homologous proteins in Elaeis guineensis and Cocos nucifera, and more distantly related to Oryza sativa and Zea mays. (3) Conserved motifs and structural domains analysis revealed that LoAS1 and LoAS2 share conserved motifs and N-terminal domains with their homologous proteins in other plants. (4) The results of subcellular localization revealed that LoAS1 protein was localized in the nucleus and LoAS2 protein in the cytoplasm and nucleus. (5) The overall expression levels of LoAS1 and LoAS2 were significantly higher than those in the normal temperature group, and both of them were up-regulated in the stem apex in response to the low-temperature, with their expression peaking at 30-40 d of storage. (6) The results of paraffin sections revealed that the lateral primordia of lily bulbs were significantly enlarged at 45 d of low-temperature storage, which was consistent with the expression patterns of LoAS1 and LoAS2. The study indicates that LoAS1 and LoAS2 may play an important role in the development of lateral primordia during the dormancy release process of lily bulbs, which provides a molecular basis for further research into the dormancy release mechanism of lily bulbs.
Keywords
东方百合花大色艳,芳香馥郁,在国际切花市场中占有重要地位,其中‘索邦’(Lilium orential‘Sorbonne’)是最为知名的代表性品种之一。目前,多数百合品种都由温带的野生种驯化、培育而来,均有鳞茎低温内休眠的生理现象。低温贮藏是百合生产和研究中最常用和最有效的打破休眠的方法(李翊华,2010)。
不同植物在低温环境中会有不同的响应策略,如逆境胁迫、春化、低温层积、休眠等(Ding et al., 2020)。对于众多温带木本植物,夏末秋初的短日照和温度下降会启动休眠过程,休眠前芽的分化和发育都已完成(Azeez et al., 2021),休眠过程中芽内的分生组织和叶原基生长停滞(Anderson, 2015),休眠解除即可展叶开花。但是,有些植物休眠芽的发育却是动态变化的。例如,桃花花芽在冬季需冷量积累过程中才得以分化完全(Canton et al., 2022);牡丹种子需依次打破根和芽的休眠才可萌发(金飚等,2006; Hao et al., 2014)。作为隐芽植物,百合属植物的地上组织在秋季枯萎脱落,地下鳞茎进入内休眠状态;冬季低温促进其休眠解除,进而在春季正常发芽、生长、开花(侯玲玲等,2006)。百合鳞茎休眠后,仍在不断发生相关调控过程(Fan et al., 2021),叶原基不断从茎尖分生组织中分化出来(刘芳等,2015; Pan et al., 2023)。休眠解除后鳞茎开始萌发,叶片是最早出现的结构之一。在百合休眠解除相关研究中,休眠芽仍然进行侧生器官(如叶原基等)发育的调控机制还不清楚,值得深入研究。
叶原基是先由茎尖分生组织(shoot apical meristem,SAM)中的 “起始细胞”(founder cell)进入周边区(peripheral zone,PZ),再进一步分裂、分化形成的组织(Scanlon,2000;赵方东等,2017)。叶原基作为侧生器官沿3个轴向生长:基-顶轴,中-侧轴,近-远轴(刘涛等,2024)。许多参与叶片发育的突变体已被鉴定和详细表征。其中,AS1(ASYMMETRIC LEAVES 1)和AS2(ASYMMETRIC LEAVES2)是叶原基起始和叶片正常发育的关键调控者,它们在叶原基中特异性表达,并形成转录复合物抑制茎尖分生组织特异转录因子KNOX(Knotted1-like homeobox)的表达,从而赋予叶原基“身份”(identity)(Chuck et al., 1996; Timmermans et al., 1999; Byrne et al., 2000; Matsumura et al., 2009)。
AS1基因编码一种含有R2-R3 MYB结构域的蛋白,是金鱼草PHAN(PHANTASTICA)(Waites & Hudson,1995)和玉米RS2(ROUGHSHEATH2)(Schneeberger et al., 1998)的同源基因。Serrano-Cartagena等(1999)研究表明,AS1参与了叶片细胞分化的调控,AS1位点的突变导致营养叶和茎生叶变宽且褶皱,突变株系长势变弱;在其他细胞高度增殖的组织中也发现AS1有高水平的表达,这进一步表明其在细胞分裂和早期细胞分化中发挥了作用(Sun et al., 2002)。拟南芥AS2基因是侧生器官边界结构域 [lateral organ boundaries(侧生器官边界,LOB) domain,LBD]家族的一员,LBD 蛋白由保守的N端LOB 结构域和可变的C端区域组成(Matsumura et al., 2009; Machida et al., 2022),不仅在植物的侧生器官发育中具有关键调控作用(Majer & Hochholdinger, 2011; Ando et al., 2023),还可以在植物生长和发育过程中发挥多种功能(Xu et al., 2016)。AS2不仅可与AS1形成复合物,进而与H3K9甲基转移酶KYP/SUVH5/6(KRYPTONITE/SUPPRESSOR OF VARIEGATION 3-9 HOMOLOG5/6)等表观遗传因子相互作用(Hung et al., 2023),还可招募PRC2(polycomb repressive complex2)进行DNA甲基化(Machida et al., 2015; Vial-Pradel et al., 2018),参与远轴基因ETT/ARF3(ETTIN/AUXIN RESPONSE FACTOR3)、ARF4和1类KNOX同源基因的转录抑制,从而调控叶片发育和形态建成(Ikezaki et al., 2010; Iwasaki et al., 2013)。AS2-AS1 还可通过募集染色质重塑因子 HIRA形成染色质抑制状态,沉默KNOX基因从而促进叶片分化(Guo et al., 2008)。
本研究以东方百合‘索邦’为材料,提取RNA并克隆得到LoAS1和LoAS2基因,并进行生物信息学分析和亚细胞定位;利用RT-qPCR对低温和常温贮藏过程中LoAS1和LoAS2基因在茎尖中的表达模式进行分析,并对低温贮藏关键时期的茎尖进行石蜡切片观察,拟探讨如下问题:(1)分析LoAS1和LoAS2蛋白的特征,确定二者在细胞中的表达位置;(2)低温和常温贮藏条件下,探究LoAS1和LoAS2基因在鳞茎茎尖的表达特征,分析二者在鳞茎低温贮藏中的潜在功能。本研究以期为深入解析LoAS1和LoAS2基因在低温休眠解除中的功能提供理论基础,也为揭示低温解除鳞茎休眠过程中侧生原基的发育机制提供新线索。
1 材料与方法
1.1 材料
以2021年12月底在北京市顺义鲜花港温室种植的东方百合‘索邦’为试验材料,分别取足量上部叶和下部叶,用于基因克隆,所取材料经过液氮速冻后立即放入-80 ℃冰箱。
试验所用种球贮存于北京林业大学北林科技温室和冷库。根据前期组内观察结果将种球按周径和后续发育进程分为大球(周径≥10 cm,正常开花)、中球(7 cm≤周径<10 cm,有花芽但不能开花),小球(3 cm≤周径<7 cm,可抽茎但不产生花芽)(图1)。为探究具有不同发育进程的种球低温和常温贮藏过程中基因的表达动态,对大、中、小球都进行了取材。取材前需依次将鳞茎的外层、中层、内层鳞片剥除至茎尖高度约7~ 8 mm(图1),用干净的刀片水平切下茎尖部分,用锡箔纸包裹并做好标记,液氮速冻后保存于-80 ℃冰箱中。
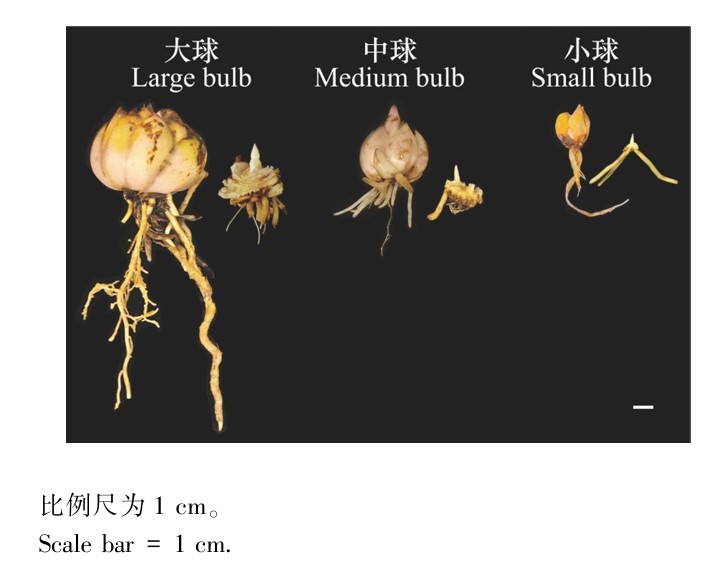
图
1
百合茎尖取材示意图
Fig.
1
Schematic diagram of lily stem apex extraction
根据刘艳萍(2007)对百合解除休眠温度的研究,设置低温(4 ℃)实验组和常温(23 ℃)对照组。将贮藏前茎尖取材并命名为R0(C0),将对照组和实验组分别放入23 ℃温室和4 ℃冷库中。根据课题组前期对百合鳞茎春化和休眠解除具体时间节点的研究,在10、15、20、30、40、45、50、60 d分别对实验组和对照组进行取材,根据贮藏时间将低温实验组茎尖分别命名为C10、C15、C20、C30、C40、C45、C50、C60,常温对照组茎尖分别命名为R10、R15、R20、R30、R40、R45、R50、R60。每个时期取3个生物学重复,共取得大、中、小球茎尖153个。
1.2 方法
1.2.1 总RNA提取及cDNA的合成
将材料置于液氮中充分研磨,使用EASY Spin Plus植物RNA快速提取试剂盒(北京艾德莱生物科技有限公司)提取样品总RNA,测定浓度后置于-80 ℃冰箱保存。使用Rever Tra Ace qPCR RT Master Mix试剂盒[东洋纺(上海)生物科技有限公司]对样品RNA进行反转录,将所得cDNA置于-20 ℃保存。
1.2.2 AS1、AS2基因编码序列的克隆
在课题组已有的东方百合‘索邦’转录组数据库中对拟南芥AS1和AS2进行BLAST分析,筛选获得预期的LoAS1、LoAS2基因序列,设计克隆引物F1、R1和F2、R2(表1),以东方百合‘索邦’上部叶片和下部叶片的cDNA配置混合模板,使用Prime STAR Max(TaKaRa),对LoAS1和LoAS2基因编码区序列进行扩增。
1.2.3 实时荧光定量
以东方百合‘索邦’大球、中球、小球在低温、常温条件下不同贮藏时期的茎尖cDNA为模板,以LoActin作为基因表达归一化的内参,设计特异性引物(表1):LoActin引物F3、R3,LoAS1引物F4、R4和LoAS2引物F5、R5。使用荧光定量PCR仪(qTOWER3G,德国耶拿)进行RT-qPCR实验检测基因表达水平,反应体系如下:SYBR Green Pro Taq HS(避光)10 μL+ 10 × Primer 8 μL+ 10 × Temp 2 μL(共计20 μL),反应程序:预变性95 ℃, 30 s;变性95 ℃, 5 s;退火55 ℃, 30 s;延伸72 ℃, 30 s,循环40次,每个样品重复3次。所得结果使用qPCR soft 4.0软件进行处理,并使用GraphPad Prism 9.5软件进行绘图。
1.2.4 生物信息学分析
利用SOPMA(https://npsa.lyon.inserm.fr/cgi-bin/npsa_automat.pl?page=/NPSA/npsa_sopma.html)进行蛋白二级结构预测,利用https://web.expasy.org/protparam/网站进行蛋白质理化性质分析。在NCBI上(https://blast.ncbi.nlm.nih.gov/Blast.cgi)检索得到LoAS1和LoAS2的同源基因,使用DNAMAN进行不同物种AS1、AS2的氨基酸序列比对,并使用MEGA-X采用邻域连接(neighbor-joining,NJ)算法分析并构建LoAS1和LoAS2的系统发育树;利用NCBI分别获取LoAS1、LoAS2及其同源蛋白的保守结构域,使用MEME(https://meme-suite.org/meme/tools/meme)进行保守基序分析,并利用TBtools进行绘图(Chen et al., 2023)。
1.2.5 亚细胞定位载体的构建和瞬时表达
根据AioFFP载体工具箱说明(Han et al., 2022),设计LoAS1、LoAS2的亚克隆引物F6、R6和F7、R7(表1),PCR扩增后,根据Uniclone One Step Seamless Cloning Kit(北京金沙生物科技有限公司)说明书进行连接转化,得到pYL1300-LoAS1-eGFP和pYL1300-LoAS2-eGFP重组质粒,转化农杆菌EHA105(北京博迈德生物技术有限公司)。配制重悬液(10 mmoL·L-1 MES+100 μmoL·L-1 AS+10 mmoL·L-1 MgCl2,pH=5.8)并将菌体重悬,黑暗条件静置2~3 h后从本氏烟草(Nicotiana benthamiana)叶背注射进行瞬时侵染,在培养箱中黑暗培养2 d后,在激光共聚焦显微镜(Leica TCS SP8,德国)下观测蛋白表达的定位结果。
1.2.6 石蜡切片
东方百合‘索邦’大球可正常开花,故选择低温贮藏过程中的大球茎尖进行石蜡切片观察。首先,切取7~ 8 mm茎尖组织,置于FAA固定液中常温避光固定。其次,依次进行梯度乙醇脱水、二甲苯透明处理及石蜡浸透包埋等前期处理。然后,使用半自动轮转切片机(Leica RM2245,德国)切片,筛选切片后用番红固绿染色,并以中性树脂封片。最后,在光学显微镜(Leica DM500,瑞士)下观察不同处理组茎尖的解剖学形态特征,并采用LAS V4.4图像采集系统采集照片。
2 结果与分析
2.1 ‘索邦’LoAS1和LoAS2基因的克隆
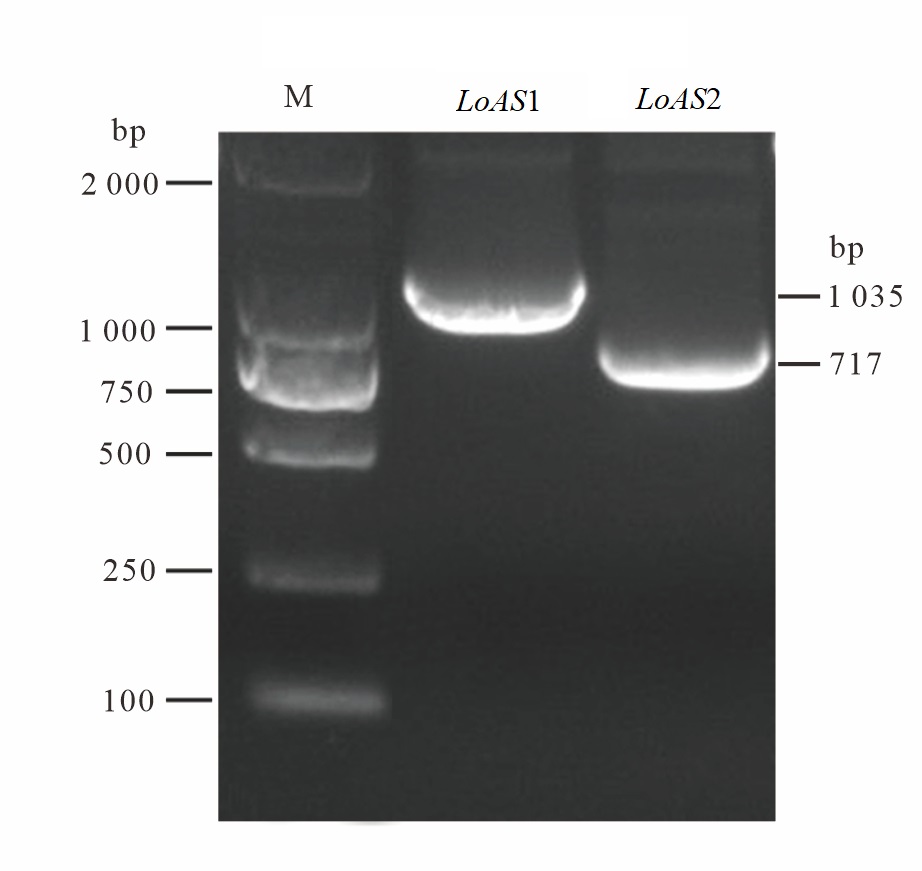
以东方百合‘索邦’上部叶和下部叶cDNA 为混合模板,PCR扩增获得清晰的目的片段条带(图2)。经纯化回收、连接转化和测序后,得到AS1和AS2基因的编码区序列。AS1编码序列长度为1 035 bp,共编码344个氨基酸;AS2编码序列长度为717 bp,共编码238个氨基酸。在NCBI分别对AS1、AS2氨基酸序列进行BLASTP检索,发现AS1与其他植物中已报道的AS1、RS2和PHAN蛋白具有较高的相似性;AS2与其他植物中已报道的AS2、LOB家族蛋白相似度较高,因此可确定二者为东方百合‘索邦’AS1、AS2基因,分别命名为LoAS1、LoAS2。
表
1
试验所用引物序列
Table
1
Sequences of primers used in the test
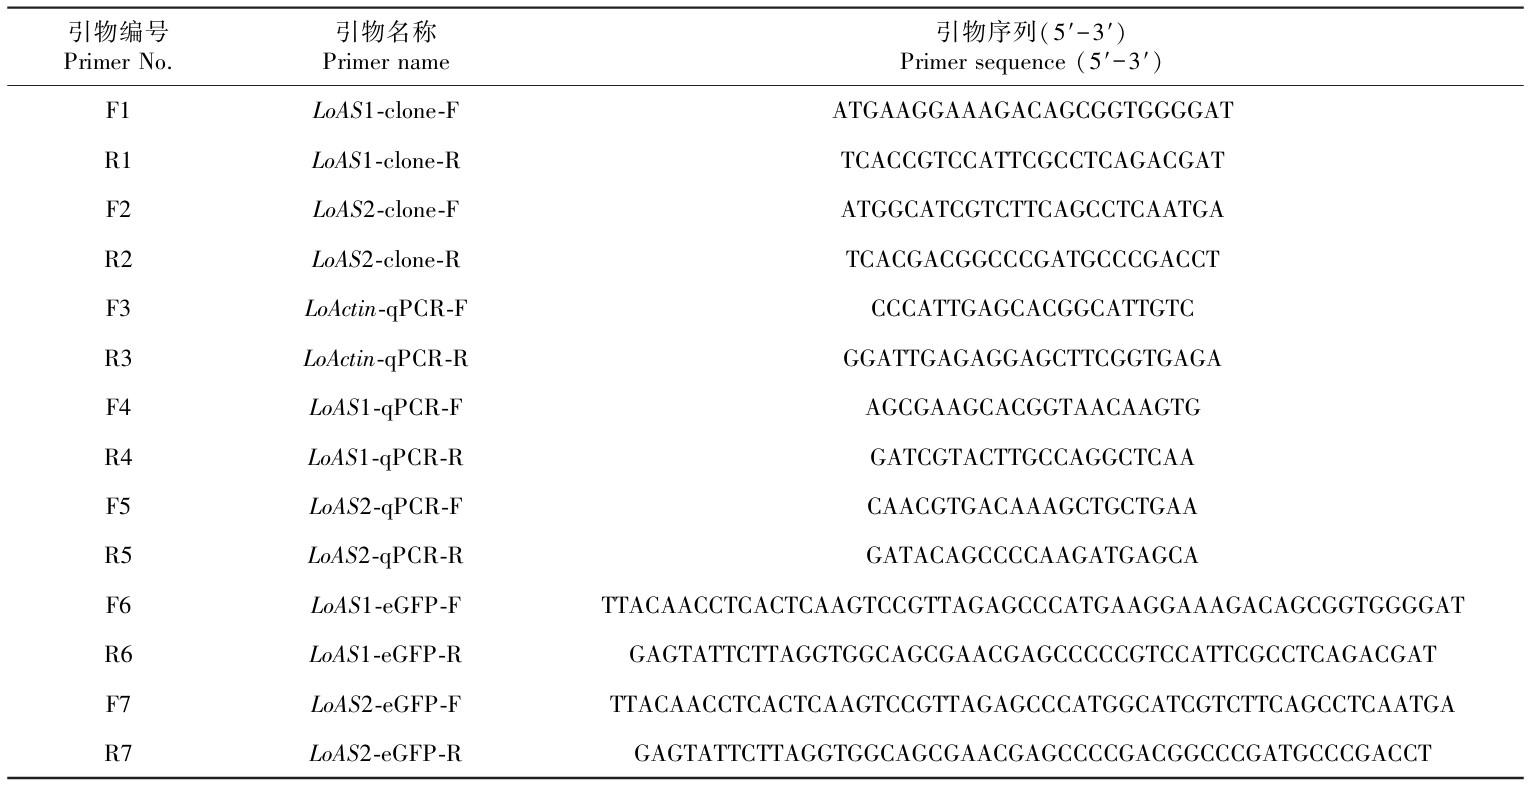
图
2
LoAS1与LoAS2的PCR扩增
Fig.
2
PCR amplification of LoAS1 and LoAS2
2.2 LoAS1和LoAS2蛋白质信息分析
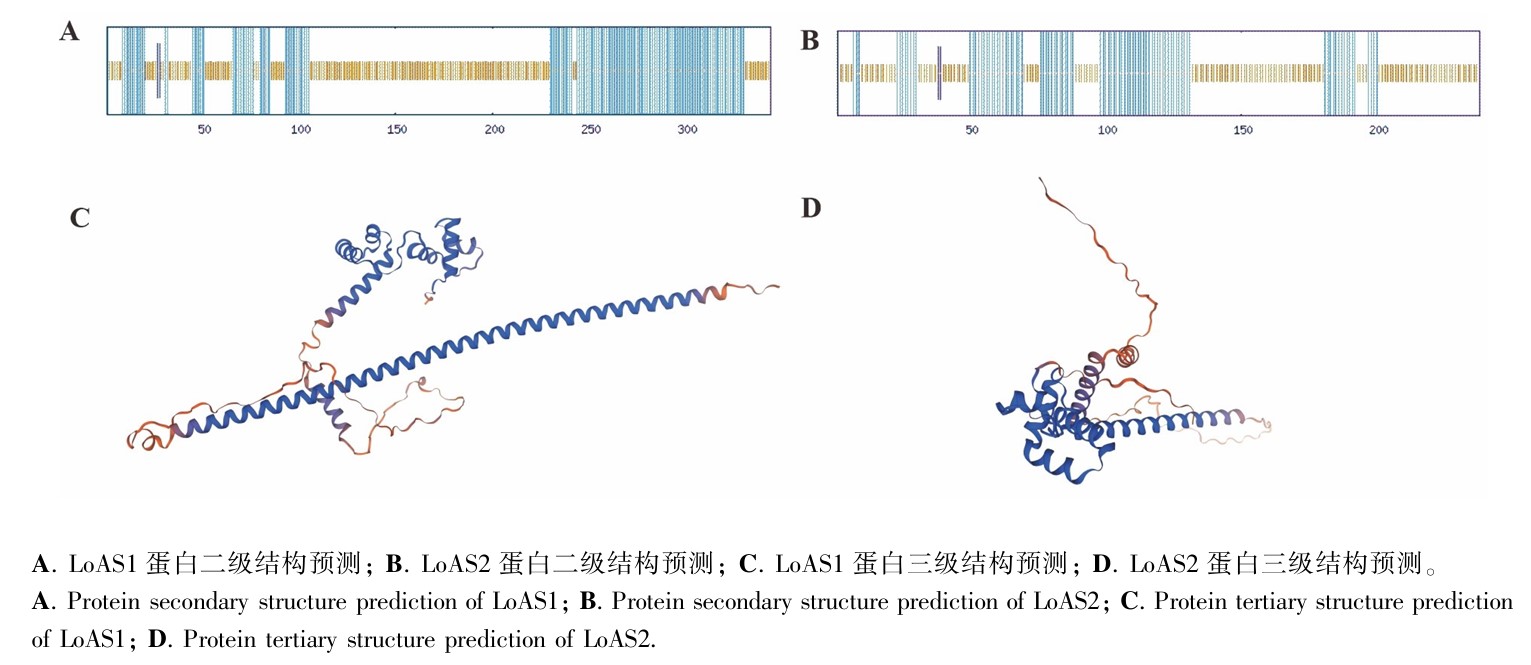
LoAS1共含有344个氨基酸,蛋白分子式为C1742H2794N534O511S15;LoAS2共含有238个氨基酸,蛋白分子式为C1085H1694N316O333S15。理化性质分析(表2)表明,LoAS1和LoAS2均为不稳定蛋白和亲水性蛋白。利用SOPMA对LoAS1、LoAS2蛋白的二级结构进行分析,结果显示,LoAS1蛋白由43.90%的α-螺旋、0.58%的延伸链和55.52%的无规则卷曲组成;LoAS2蛋白由39.92%的α-螺旋、0.84%的延伸链和59.24%的无规则卷曲组成。对LoAS1与LoAS2蛋白的三级结构进行预测,结果同样显示二者结构均以α-螺旋和无规则卷曲为主(图3)。
2.3 LoAS1和LoAS2同源比对和系统进化分析
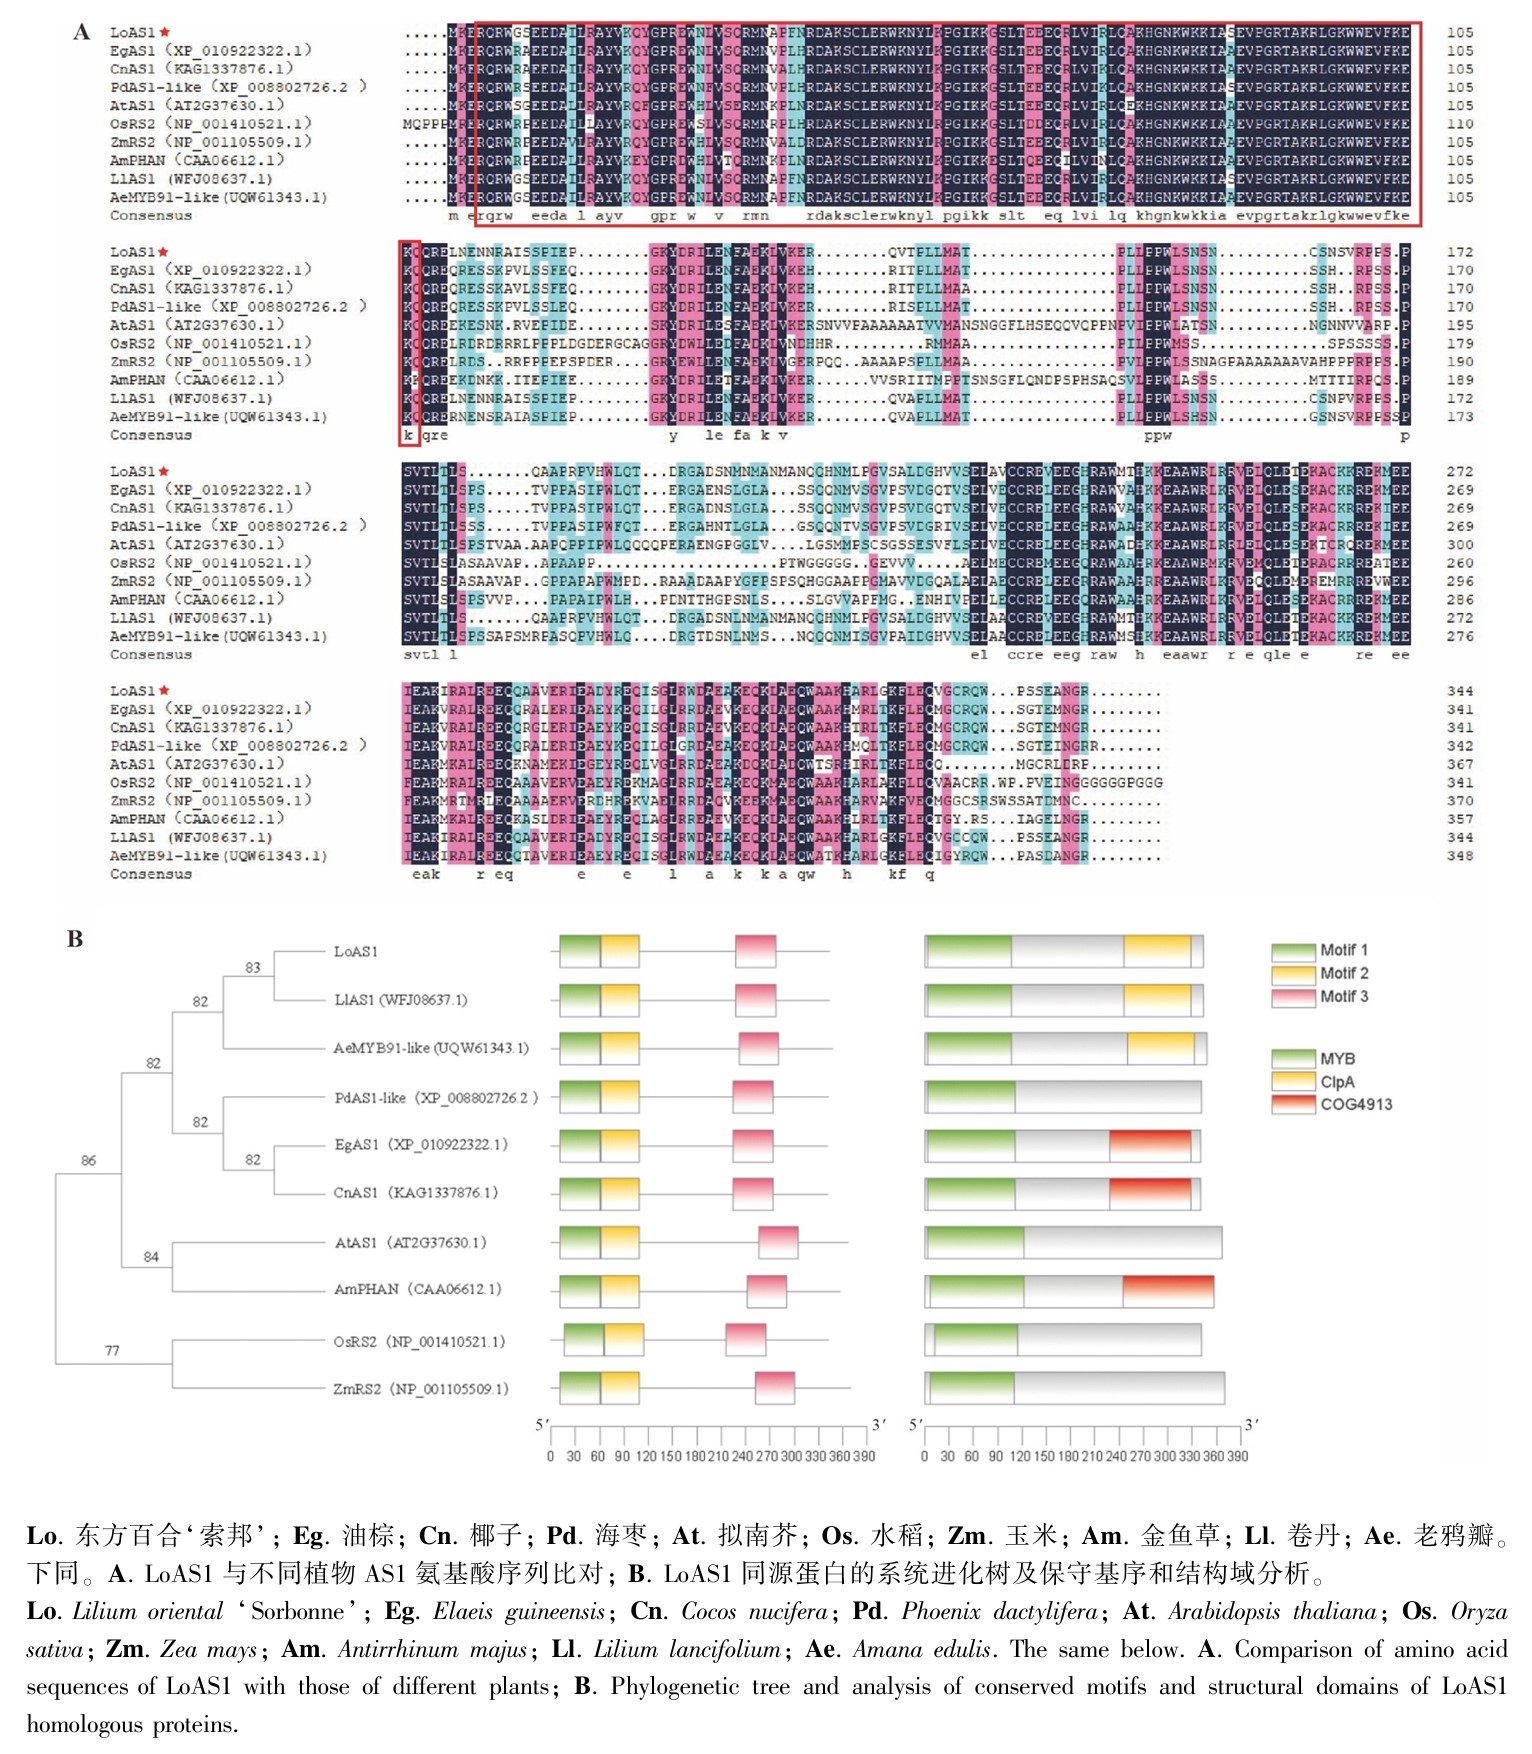
使用DNAMAN 软件对LoAS1蛋白序列与NCBI已报道的其他植物中AS1、RS2和PHAN蛋白进行序列比对(图4:A),发现它们均具有保守的MYB结构域,同源性较高,其中LoAS1蛋白3~107 aa处为其MYB结构域。为进一步探究LoAS1与其他植物中AS1同源蛋白的亲缘关系,对保守结构域、保守基序和进化树进行综合绘图,结果(图4:B)表明,它们具有类型和分布相同的3种基序和同样位于N端的MYB结构域,LoAS1还包含与卷丹、老鸦瓣相同的ATP结合亚基ClpA结构域。这进一步证明了LoAS1和其他物种AS1的同源性,并可能发挥与其他物种AS1相似的功能。在亲缘关系上,LoAS1与同为百合科的卷丹、老鸦瓣同源进化关系最近,与油棕、椰子等单子叶植物亲缘关系相对较近,与玉米、水稻、拟南芥、金鱼草的亲缘关系相对较远。
表
2
LoAS1和LoAS2蛋白的理化分析
Table
2
Physicochemical analysis of LoAS1 and LoAS2 proteins
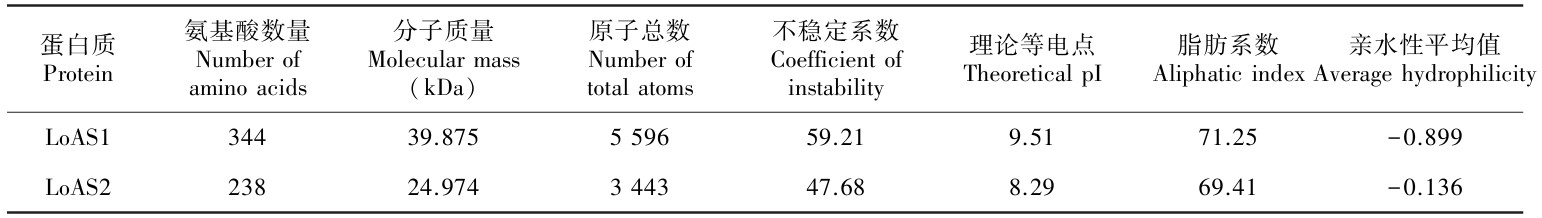
图
3
LoAS1与LoAS2蛋白结构预测
Fig.
3
Protein structure predictions of LoAS1 and LoAS2
图
4
LoAS1生物信息学分析
Fig.
4
Bioinformatics analysis of LoAS1
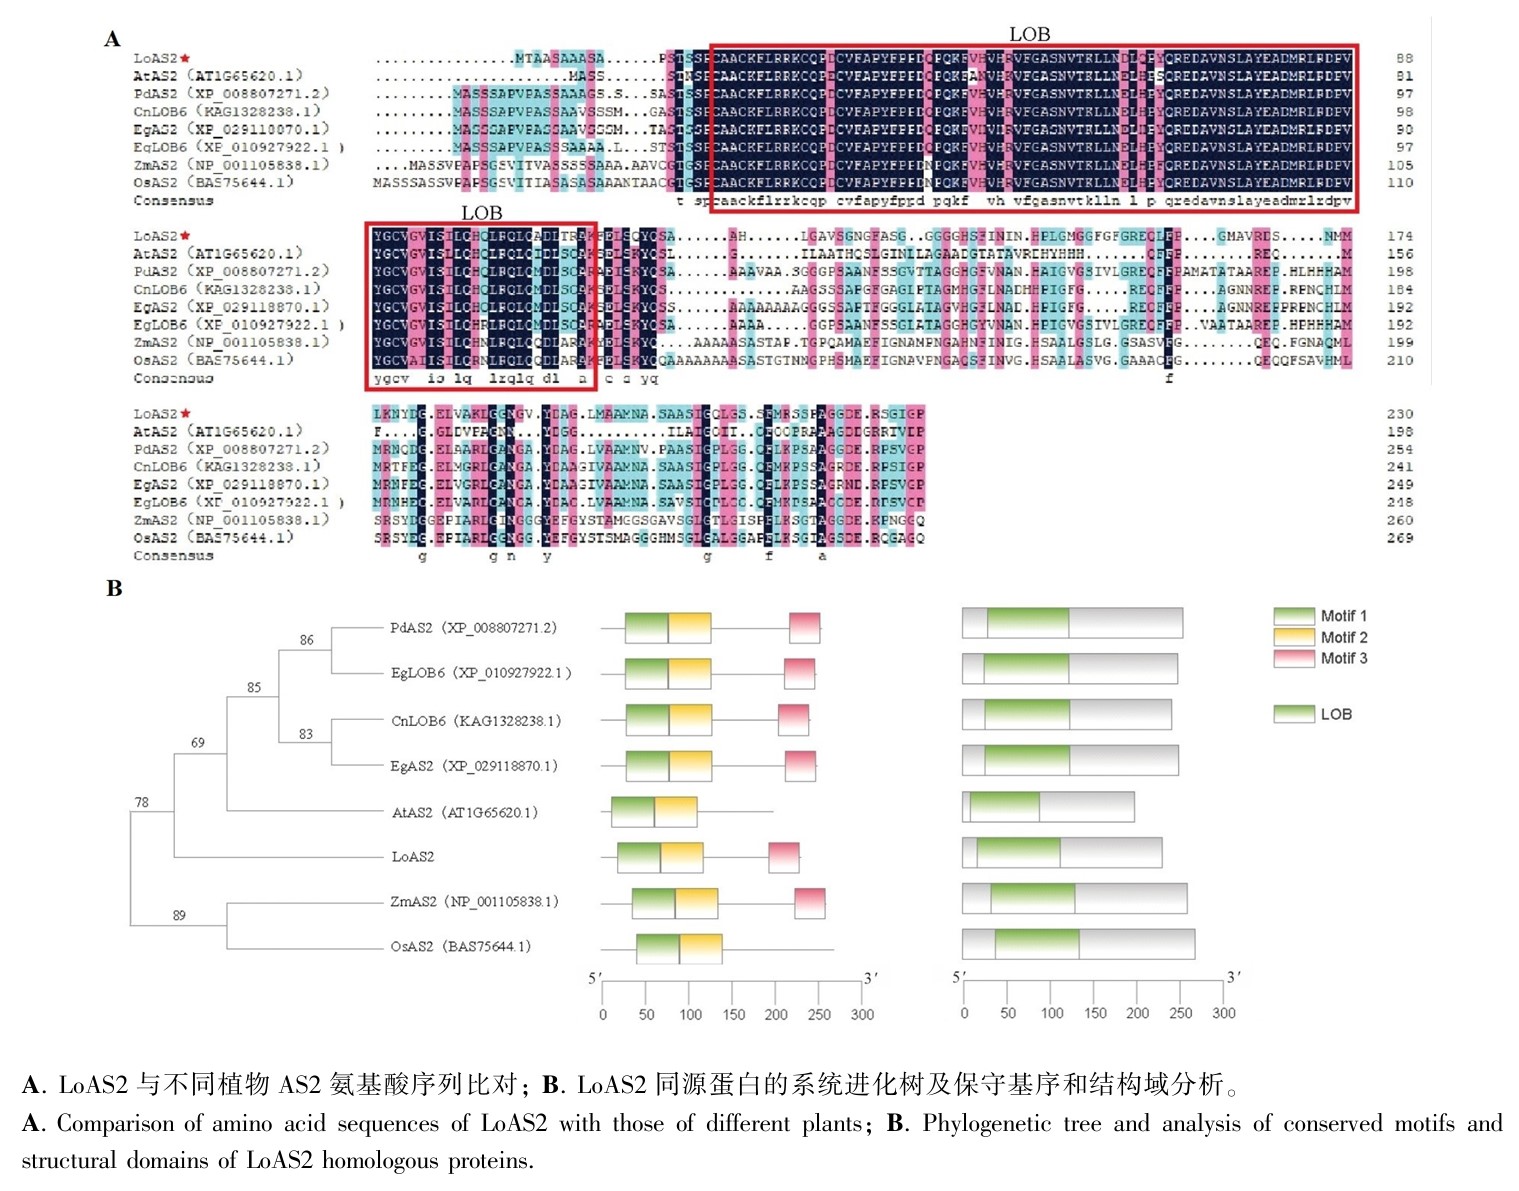
将LoAS2蛋白与NCBI已报道的其他植物中的AS2和LBD家族蛋白进行序列比对,发现它们均具有保守的LOB结构域,同源性较高,其中LoAS2蛋白24~120 aa处为LOB结构域(图5:A)。对保守结构域、保守基序和进化树进行综合绘图,结果(图5:B)显示,LoAS2与其他植物AS2同源蛋白均具有两个相同的保守基序和位于N端的LOB结构域。这证明了LoAS2和其他物种AS2的同源性。另外,在亲缘关系上,LoAS2与油棕、椰子、拟南芥等亲缘关系较近,而与玉米、水稻亲缘关系较远。
图
5
LoAS2生物信息学分析
Fig.
5
Bioinformatics analysis of LoAS2
2.4 LoAS1和LoAS2蛋白的亚细胞定位
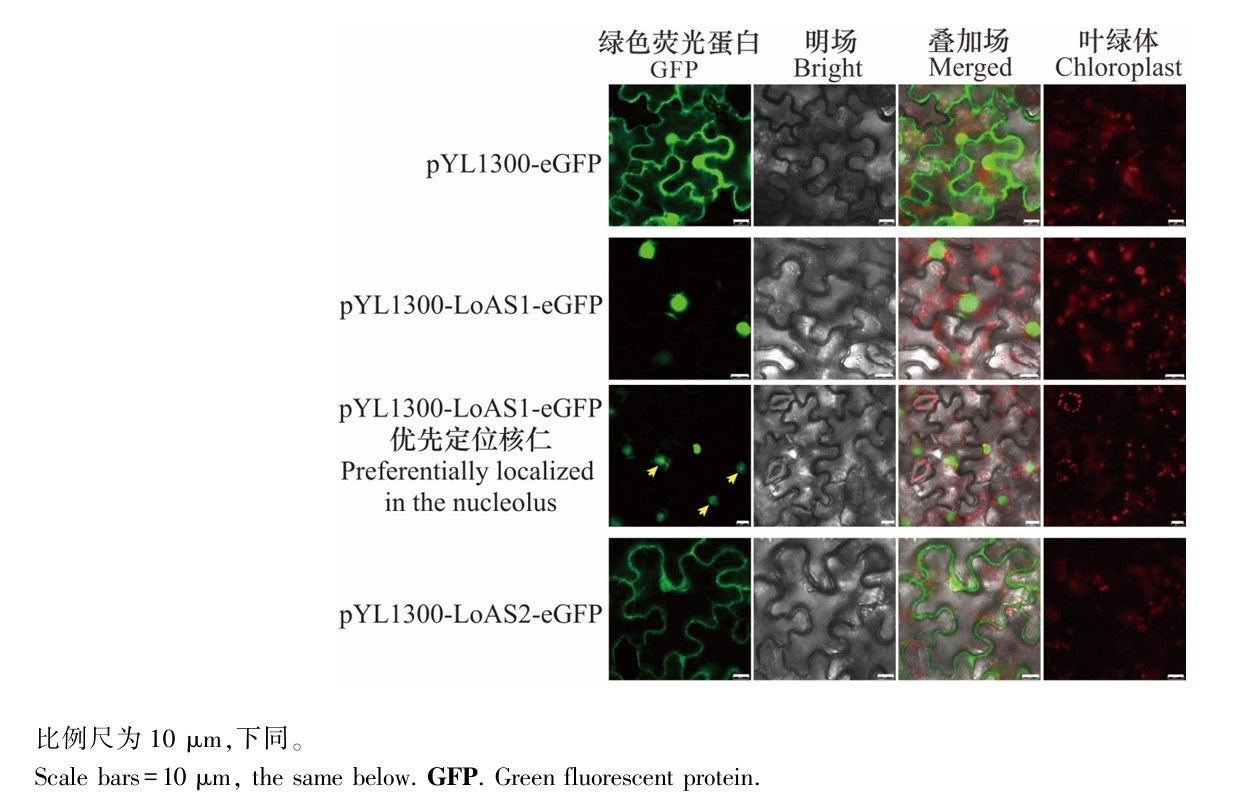
为确定LoAS1、LoAS2蛋白在细胞中的表达位置,利用激光共聚焦显微镜观察其在本氏烟草细胞中的表达位置。结果(图6)表明,空载质粒的荧光信号出现在细胞质与细胞核中,LoAS1主要定位在细胞核中,与转录因子的核定位特征相符合。另外,在部分细胞中观察到LoAS1在核仁中信号更为强烈,优先定位于核仁中。然而,LoAS2则表现为细胞核、细胞质定位,与其他研究中的核定位结果不同。因此,推测AS2蛋白可能在百合中发挥不同的作用。
图
6
烟草表皮细胞中LoAS1和LoAS2蛋白的亚细胞定位
Fig.
6
Subcellular localization of LoAS1 and LoAS2 proteins in tobacco epidermal cells
2.5 鳞茎低温贮藏过程中LoAS1与LoAS2的表达响应
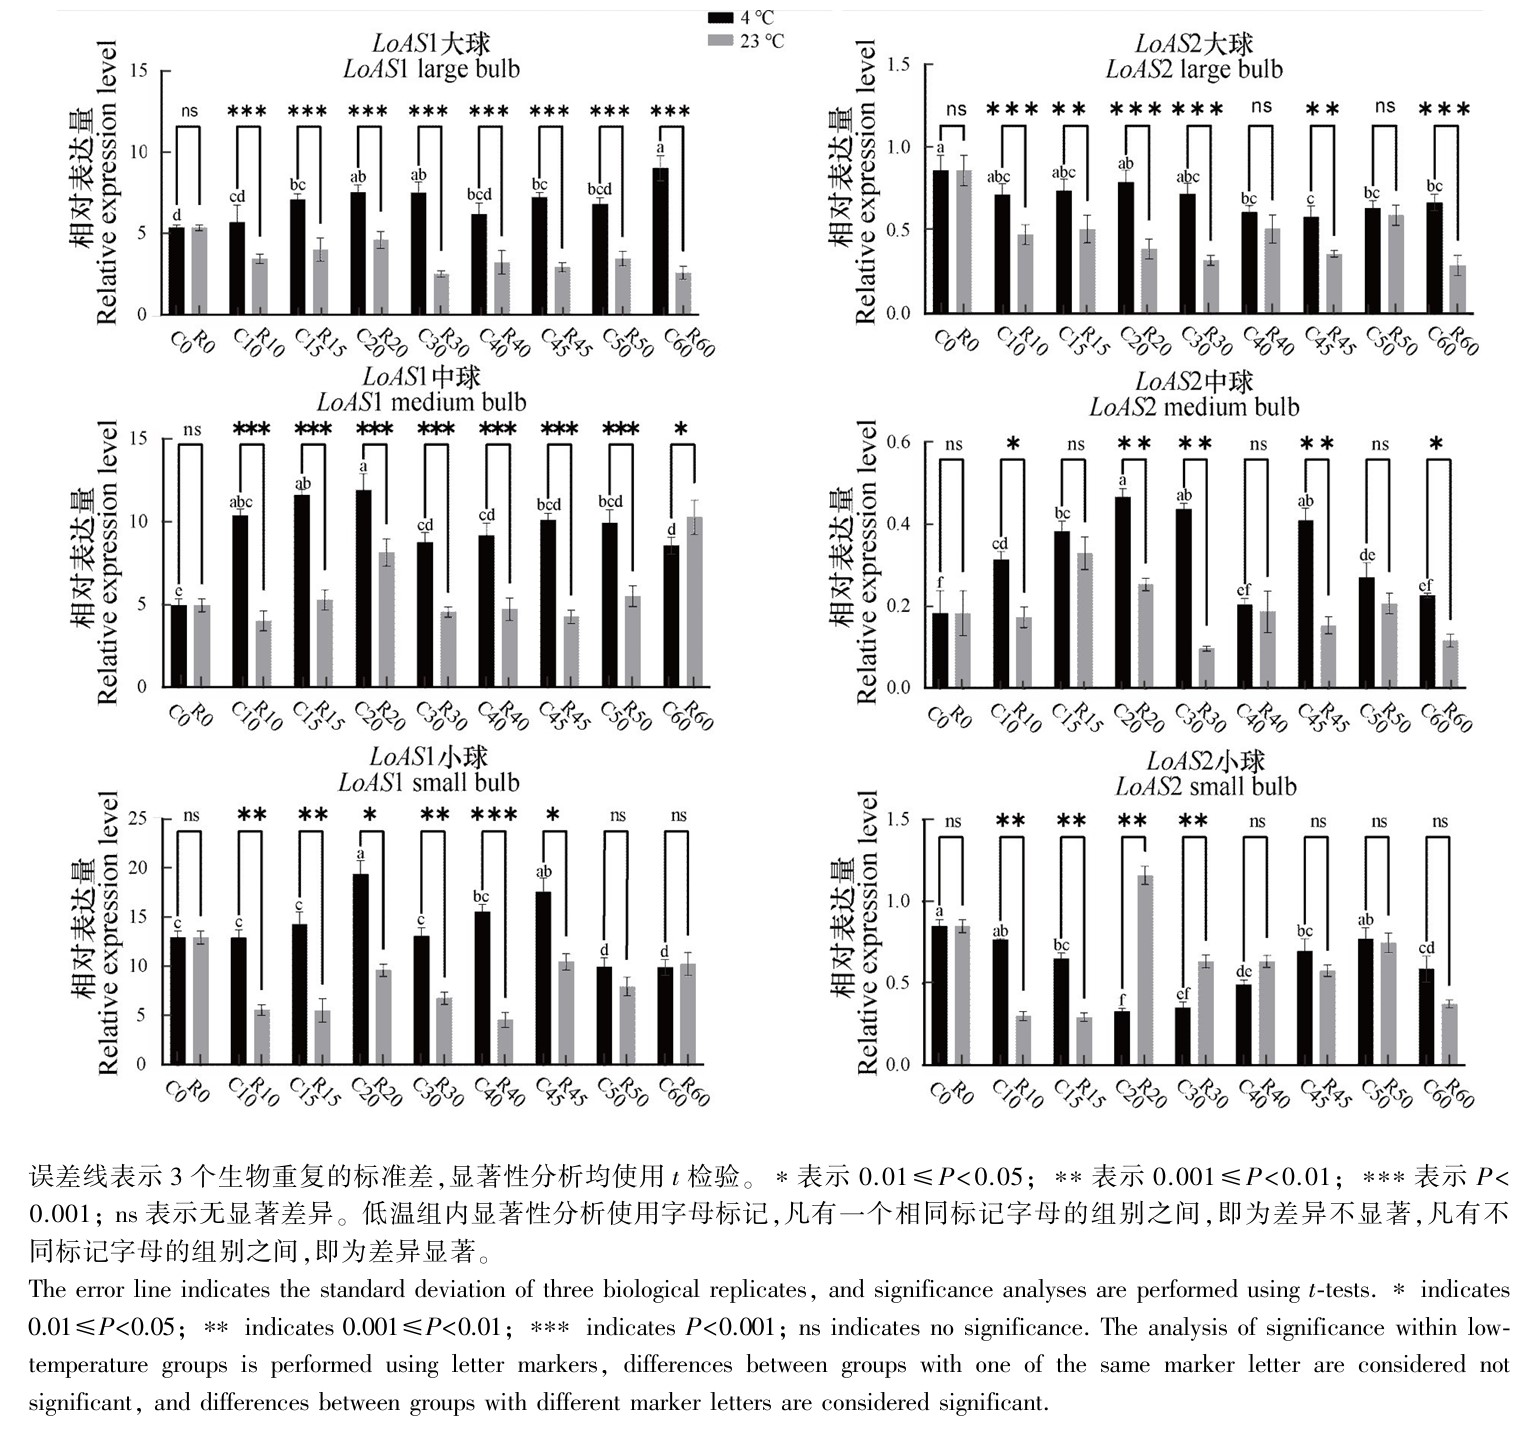
利用实时荧光定量PCR,对鳞茎低温贮藏过程中的LoAS1和LoAS2进行表达特征分析。在不同规格‘索邦’种球中,低温贮藏后LoAS1均先上调表达,在30~40 d表达量略微下降,之后再回升;而在常温贮藏中其表达量下降(图7)。LoAS2在‘索邦’大球贮藏过程中表达量均有下降,但低温条件下的表达量显著高于常温组;在中球中,LoAS2在低温和常温条件下均为先上升再下降,但低温条件下的表达量上升幅度更大,显著高于常温组;在小球中,LoAS2表达量则呈现先下降后上升的趋势(图7)。
图
7
常温和低温处理不同时间后茎尖LoAS1和LoAS2的表达
Fig.
7
Expression of LoAS1 and LoAS2 in stem apex after different time of room temperatures and low-temperature treatments
值得注意的是,在大球和中球中,低温30~40 d时LoAS2的表达量均出现下调,与LoAS1的表达特征相似。另外,低温贮藏45 d时,LoAS1和LoAS2又出现了表达量上调,推测45 d可能也是调控过程中一个关键时间节点。
2.6 东方百合茎尖石蜡切片观察
对低温贮藏过程中的东方百合‘索邦’大球茎尖进行石蜡切片观察,结果(图8)表明,贮藏前(C0)茎尖分生组织(SAM)较为凸起,且叶原基较小,而低温贮藏45 d时(C45),SAM开始变平,已有叶原基不断发育,明显增大增厚,并且还分化出新的叶原基。这与LoAS1、LoAS2在低温贮藏45 d内的表达量增高较为吻合,表明在百合大球中,LoAS1、LoAS2可能在鳞茎低温休眠中对侧生原基的发育起到促进作用。
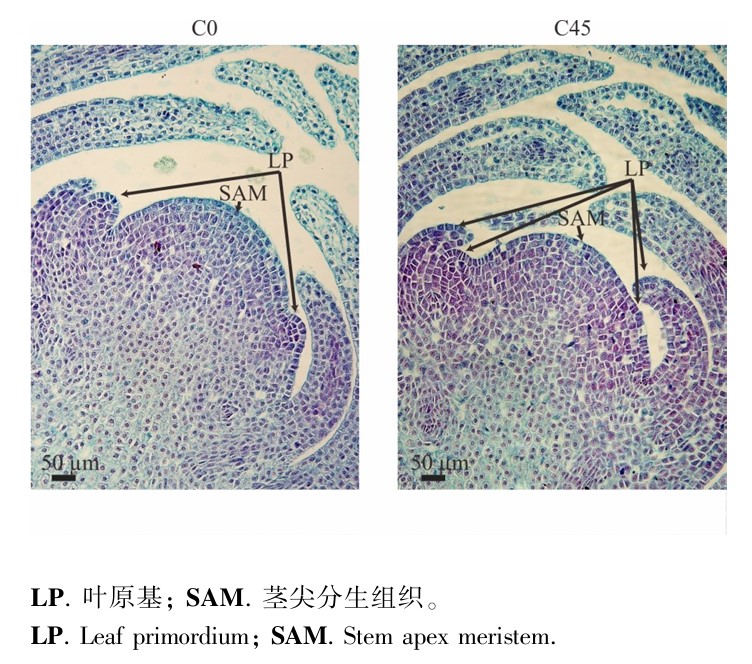
图
8
东方百合‘索邦’鳞茎低温贮藏期间石蜡切片
Fig.
8
Paraffin sections of Lilium oriental ‘Sorbonne’ bulbs during low-temperature storage
3 讨论与结论
百合鳞茎具有内休眠的特性,低温是诱导休眠解除的关键因子。有研究表明,鳞茎低温休眠解除过程中芽的侧生原基是动态发育的,但其具体分子机制尚不明确。叶原基的发育和叶形态的建成是一个复杂的过程,牵涉多条通路和多个重要基因,其中AS1和AS2是调控该过程的关键因子(Ikezaki et al., 2010; Iwasaki et al., 2013)。前人研究大多在模式植物中进行,而本研究以多年生球根花卉百合为材料,探索在百合鳞茎低温休眠解除过程中,AS1、AS2基因在其侧生原基发育中的作用。
本研究通过生物信息学分析和亚细胞定位,推测LoAS1和LoAS2基因可能参与调控东方百合‘索邦’鳞茎的侧生原基发育。在拟南芥中,MYB转录因子AS1可与LBD家族蛋白AS2共同作用,也可与LHP1(LIKE HETEROCHROMATIN PROTEIN 1)互作(Li et al., 2016),在叶片发育过程中抑制KNOX基因的表达(Chuck et al., 1996; Byrne et al., 2000),不仅影响叶原基的形成,还能建立叶片极性(赵方东等,2017)。在‘索邦’百合中,LoAS1蛋白与其他植物中AS1均含有N端保守的MYB结构域,与卷丹、老鸦瓣的AS1关系最近。Qu等(2024)研究表明,卷丹LlAS1可能促进腋生分生组织的发育,从而促进珠芽的形成,因此推测LoAS1也可能在百合侧生器官的发育过程中起调控作用。LoAS2蛋白含有保守的LOB结构域,与双子叶植物拟南芥及单子叶植物油棕、椰子等AS2蛋白亲缘关系最近。在拟南芥中,LBD家族基因已被证明参与调控叶原基的发育,并建立分生组织和分化的外侧器官之间的边界(Rong et al., 2024),这表明LoAS2可能在百合鳞茎侧生器官发育中也发挥相似作用。
前人研究发现,玉米AS1同源蛋白RS2定位于细胞核中(Theodoris et al., 2003),拟南芥中AS1和AS2两种蛋白质都定位于核体内(Ueno et al., 2007),而拟南芥AS1在间期细胞中会优先定位于核仁中,AS2则优先定位于核质中(Zhu et al., 2008)。此外,AS2还与AS1在核仁周围小体中共定位,并且AS2小体的形成与其在发育过程中的功能具有高度相关性(Luo et al., 2020)。本研究中,东方百合‘索邦’的LoAS1主要定位于细胞核中,与前人结果较为一致。另外值得关注的是,在部分细胞中,也出现了核仁信号明显强于核质的现象,推测LoAS1可能发挥其他与核仁相关的重要作用,如调节植物的生长发育和生殖、应激感应及细胞活动控制等(Raska et al., 2006; Luo et al., 2022; Lee et al., 2024)。LoAS2则定位于细胞核和细胞质中,与其他植物中的定位较为不同,推测百合中的AS2基因可能以不同的机制发挥作用。另外,在本研究中,暂未观察到LoAS2核体的形成,后续可使用精度更高的显微镜进行观察。
AS1已被报道可能具有响应温度的功能,AS1和PIF4(PHYTOCHROME INTERACTING FACTOR 4)介导的生长素合成和运输过程,共同促进叶片在高温环境下的冷却,从而协调叶片的恒温性(Park et al., 2019)。拟南芥as1和as2突变体中会出现部分叶片近-远轴极性严重缺失,而高温条件下AS1和AS2的缺失会导致这种畸形的出现率变高,影响叶片的正常发育(Qi et al., 2004)。本研究分析百合在低温贮藏过程中发现,LoAS1和LoAS2的表达特征与拟南芥中不同,LoAS1和LoAS2可响应低温上调表达,并在低温贮藏30~40 d表达量达到最高。
目前,对AS1和AS2基因的功能研究主要集中于促进叶原基发育和叶片极性建立(Byrne et al., 2000; Matsumura et al., 2009;赵方东等,2017),而关于二者是否在百合鳞茎低温休眠解除过程中调控侧生原基发育尚未见报道。本研究表明,鳞茎低温贮藏后,LoAS1与LoAS2的表达量均高于常温组,并且响应低温上调表达。刘芳等(2015)对细叶百合低温贮藏过程中的鳞茎石蜡切片进行观察发现,低温0~48 d过程中,叶原基在不断增大。在本研究对东方百合‘索邦’低温贮藏45 d的石蜡切片观察中,同样发现叶原基明显增大增厚,而LoAS1和LoAS2在鳞茎低温处理前期响应低温上调表达,这表明低温贮藏过程中,LoAS1和LoAS2的表达动态与叶原基的发育进程相符合,推测二者可能对百合鳞茎休眠解除过程中的侧生器官发育具有重要作用。这为阐明其在百合鳞茎低温休眠期间侧生原基的形成和发育过程中的调控机制奠定了基础,为阐释多年生植物休眠解除及不同生活史植物对低温响应策略的多样性提供了参考。