摘要
为探究参与催化UDP-葡萄糖生物合成的关键基因,该研究依托三代转录组数据对盐肤木(Rhus chinensis)尿苷二磷酸葡萄糖焦磷酸化酶(UGPase)家族基因进行了克隆,并对蛋白序列、原核表达及体外酶活、基因表达模式、启动子克隆及序列等进行了分析。结果表明:(1)鉴定到4个RcUGPase家族基因,并对其编码蛋白进行生物信息学分析,与其他物种的同源基因构建系统进化树,发现RcUGPase1与RcUGPase3分属于UGPase-A与UGPase-B类型。(2)克隆到RcUGPase1、RcUGPase2和RcUGPase4共3个基因,利用pET28a载体构建了其重组原核表达载体,并成功诱导纯化重组蛋白,体外酶活分析发现RcUGPase1具有UGPase酶催化活性。(3)五倍子发育早期(21 d和47 d),体内RcUGPase酶活性显著上升,与前人报道的没食子单宁含量逐渐升高一致。(4)转录组数据显示在五倍子发育早期(21 d和47 d),RcUGPase1的表达显著上调,RcUGPase2的表达下降,RcUGPase3和RcUGPase4的变化不显著。(5)克隆RcUGPase1基因上游2 334 bp的启动子片段,预测到其上有多种环境和激素响应元件可能参与上游的调控网络。综上认为,结合体外酶活性、基因表达与五倍子中RcUGPase酶活性和没食子单宁含量的相关性等结果,推测RcUGPase1可能是盐肤木中催化UDP-葡萄糖合成的关键酶基因,五倍子发育初期RcUGPase酶活性的上调可能对五倍子中没食子单宁的积累起到重要作用。
Abstract
In order to investigatethe key UGPase genes responsible for UDP-glucose biosynthesis, uridine diphosphate glucose pyrophosphorylase (UGPase) family genes in Rhus chinensis were cloned relied on third-generation transcriptome data, and protein sequence, prokaryotic protein expression and in vitro enzyme catalytic activity, gene expression pattern, promoter cloning and sequence, etc. were analyzed. The results were as follows: (1) Four RcUGPase family genes were identified, their encoded proteins were subjected to bioinformatics analysis, and their protein sequences were further compared with the homology genes in other species by constructing a phylogenetic tree, which suggested that RcUGPase1 and RcUGPase3 belonged to UGPase-A class and UGPase-B class, respectively. (2) RcUGPase1, RcUGPase2, and RcUGPase4 were successfully cloned and recombined onto pET28a vector, and recombinant proteins were obtained via the prokaryotic expression vector. In vitro enzyme activity analysis revealed that the RcUGPase1 exhibited UGPase enzymatic activity. (3) The in vivo UGPase activity was significantly increased during the early developmental stages of Chinese gallnut formation (21 d and 47 d), which was consistent with the gradually rising gallotannin content reported in previous studies. (4) During the early developmental stages of Chinese gallnut formation (21 d and 47 d), the expression of RcUGPase1 was dramatically up-regulated, the expression of RcUGPase2 was down-regulated, and no significant changes were observed in the expression of RcUGPase3 and RcUGPase4. (5) A 2 334 bp upstream promoter fragment of RcUGPase1 gene was cloned, this fragment was predicted to contain multiple environmental and hormone response elements that may involved in the upstream regulatory network. In summary, based on in vitro enzyme activity analysis and the correlation between gene expression with in vivo RcUGPase enzyme activity and gallotannins contents in Chinese gallnut, RcUGPase1 may be the key enzyme gene catalyzing the synthesis of UDP-glucose in R. chinensis, and the elevated UGPase enzyme activity during the early developmental stages of Chinese gallnut might play a key role in the accumulation of gallotannins in Chinese gallnut.
Keywords
盐肤木(Rhus chinensis)是漆树科(Anacardiaceae)盐肤木属(Rhus)落叶小乔木,在中国除东北、内蒙古和新疆等地区以外广泛分布(俞德浚等,1980)。盐肤木在中国有着悠久的药用历史,其根、叶、花和果实都可以入药,具有清热解毒、涩肠止泻、散瘀止血和舒筋活络等作用(吴献等,2019)。盐肤木是五倍子蚜虫的寄主之一,其被五倍子蚜虫叮咬后可在幼嫩组织处形成虫瘿又名五倍子,是中国传统中药。梁正等(2022)研究表明,五倍子有多种药用价值,如抗龋齿、抗菌、抗炎、助伤愈、抗氧化和抗癌等。因富含水解单宁,五倍子还是全球工业单宁和没食子酸的主要来源之一。盐肤木是脆弱生态环境治理的先锋植物,且具有吸附与富集土壤重金属的作用,因此也是良好的土壤修复树种(王悟敏等,2022)。在农业上,盐肤木是优质的蜜源植物,其嫩枝、叶和花也可做猪饲料且有一定的杀菌作用(高洁莹等,2015)。鉴于五倍子在医药、化工、动物饲料、食品添加剂、矿冶和电子等多方面均有重要用途(张亮亮,2020),目前五倍子的原材料供应缺口较大,如何提高五倍子产能是目前亟待解决的问题。
尿苷二磷酸葡萄糖(uridine diphosphate glucose, UDP-葡萄糖,UDPG)广泛存在于植物、动物和微生物细胞中,作为糖基供体参与多种植物中糖基化反应,如糖苷、糖蛋白和糖脂的合成,以及众多糖类如蔗糖、纤维素和半纤维素等的生物合成(Wang et al., 2011; Ye et al., 2022; Zhang, 2024)。Zhao等(2025)报道了在罗汉果中引入拟南芥蔗糖合酶(AtSUS1)合成UDP-葡萄糖,实现罗汉果醇到罗汉果苷V的直接合成,摆脱了外源添加UDP-葡萄糖。此外,UDP-葡萄糖还参与众多次生代谢产物如黄酮类、萜类和类固醇等的糖基化反应(Yonekura-Sakakibara, 2009)。然而,在没食子单宁合成过程中,以没食子酸与UDP-葡萄糖为底物合成β-葡糖倍苷是植物没食子单宁生物合成的关键第一步反应,并且后续的合成仍需要以β-葡糖倍苷作为酰基供体以进一步催化生成单宁(Grundhöfer et al., 2001)。因此,UDP-葡萄糖生物合成会间接影响五倍子中没食子单宁的合成与积累。但是,盐肤木中催化UDP-葡萄糖生物合成的关键酶基因尚未见报道,其在调控没食子单宁合成中的作用也不明晰。
在植物的糖代谢途径中,尿苷二磷酸葡萄糖焦磷酸化酶(uridine diphosphate glucose pyrophosphorylase,UGPase)催化尿苷三磷酸(uridine triphosphate,UTP)与葡萄糖-1-磷酸(Glc-1-P)生成尿苷二磷酸葡萄糖(UDPG)与焦磷酸(pyrophosphoric acid,PPi),该反应是一个可逆反应(Zhang, 2024)。目前,已在多种植物中分离到了UGPase基因,如水稻(Oryza sativa)(Abe et al., 2002)、拟南芥(Arabidopsis thaliana)(Meng et al., 2008)、陆地棉(Gossypium hirsutum)(Wang et al., 2011)、大麦(Hordeum vulgare)(Eimert et al., 1996)、马铃薯(Solanum tuberosum)(Katsube et al., 1990)、金线莲(Anoectochilus roxburghii)(嵇元烨等,2021)、铁皮石斛(Dendrobium officinale)(Chen et al., 2020)和党参(Codonopsis pilosula)(李晶等,2016)等。但是,盐肤木中该编码基因还有待进一步研究。
鉴于五倍子是我国重要的林特产品和出口创汇商品,而其富含的没食子单宁是体现其药用价值和工业价值的关键,深入挖掘没食子单宁合成的关键调控基因对于解析五倍子中单宁高含量积累机制以及单宁合成生物学研究具有重要意义。因此,本研究利用同源克隆、序列分析、酶活性分析、表达模式分析及启动子分析等手段,探究盐肤木中催化没食子单宁前体物质UDP-葡萄糖生物合成的关键UGPase基因,为进一步解析没食子单宁在五倍子中的积累机制提供参考依据。
1 材料与方法
1.1 试验材料
本试验所用五倍子材料均来自湖北省宜昌市五峰县。将人工挂虫当天的盐肤木叶翅材料视为第0天材料,依次取第21天、47天、69天、105天时的角倍蚜叮咬产生的五倍子材料,采集五倍子后切开取出其内角倍蚜洗净,置于取样管中并做好记录,于液氮速冻后置于-80 ℃超低温冰箱保存,用于后续实验。五倍子不同发育时期转录组数据由诺禾致源公司Illumina测序平台完成,并设置3次生物重复。
本试验所用的蛋白原核表达BL21(DE3)感受态细胞购自南京诺唯赞生物技术股份有限公司(C504-02/03)。大肠杆菌DH5α感受态为实验室制备保存。
1.2 生物信息学分析
利用ExPASy数据库(https://www.expasy.org/)预测分析蛋白的氨基酸数目、分子量与等电点;利用TMHMM Serverv.2.0(https://services.healthtech.dtu.dk/services/TMHMM-2.0/)、TMbase(https://www.scienceopen.com/document?vid=b094d235-b24c-4d97-b7af-47c68d36f380)和Transporter Classification Database(http://www.tcdb.org/)3个数据库预测分析蛋白跨膜螺旋结构数目;利用3个在线数据库CELLO v2.5(http://cello.life.nctu.edu.tw/)、Plant mPLoc(http://www.csbio.sjtu.edu.cn/bioinf/plant-multi/)和WoLFPSORT(http://www.genscript.com/wolf-psort.html)预测分析蛋白的亚细胞定位情况,为了提高预测结果的可信度,数据库的参数设置为同时满足CELLO v2.5数据库要求可靠评分>2.0、Plant mPLoc数据库取前二的结果、WoLFPSORT数据库的置信评分>7;利用MEME在线网站(https://meme-suite.org/meme/tools/meme)预测分析RcUGPase蛋白的基序(motif);利用PlantCARE在线网站(https://bioinformatics.psb.ugent.be/webtools/plantcare/html/)预测分析启动子序列;使用MEGA Ⅹ软件的邻接法(neighbor-joining)构建了目的蛋白的系统进化树,并运用evolview在线网站(https://evolgenius.info//evolview-v2/)对进化树做可视化处理。
1.3 植物mRNA的提取与反转录
使用南京诺唯赞生物技术股份有限公司的多糖多酚试剂盒(FastPure® Plant Total RNA Isolation Kit,RC401-01)进行盐肤木叶片总RNA提取。提取完成的RNA需使用NanoDrop2000超微量分光光度计测定RNA的纯度,即要求A260与A280的比值在1.9到2.1之间,A260与A230的比值大于1.5,随后使用1%浓度的琼脂糖凝胶电泳检测所得RNA是否降解或含有DNA残余。对满足要求的RNA使用上海碧云天生物技术股份有限公司(以下简称上海碧云天公司)的反转录试剂盒(BeyoRTTM II First Strand cDNA Synthesis Kit,D7168S)反转录成cDNA,用于后续的基因克隆。
1.4 原核表达载体的构建及原核诱导表达
利用原核表达载体pET28a构建重组表达载体。首先,设计基因的序列扩展引物,并带上pET28a表达载体经BamHI酶切后的同源臂(5′端序列为AGCAAATGGGTCGCGGA, 3′端序列为CGGAGCTCGAATTCGGA)。其次,以盐肤木叶片总RNA反转录成的cDNA为模板扩增目的基因片段。再次,将pET28a载体用BamHI酶切线性化后与回收纯化的目的基因片段进行in-fusion重组,对转化的阳性克隆进行PCR验证后送测序。然后,将测序正确的pET28a重组载体转化BL21(DE3)大肠杆菌,通过筛选不同IPTG浓度(0、0.5、1 mmol·L-1)、诱导时间(4~10 h)与诱导温度(16 ℃和37 ℃),进行原核诱导表达。最后,利用上海碧云天公司His标签蛋白纯化试剂盒(P2226)进行蛋白诱导表达纯化。蛋白质标记购自上海碧云天公司(P0061)。
1.5 UGPase酶活性测定
使用植物尿苷二磷酸葡萄糖焦磷酸化酶活性光谱法定量检测试剂盒(上海杰美基因医药科技有限公司,GMS16025)对UGPase蛋白进行酶活性测定。利用Bradford法对纯化蛋白含量进行定量,以经考马斯亮蓝G-250染色后的不同浓度梯度BSA溶液在595 nm波长下的吸光度绘制标准曲线,将蛋白样品同样经过考马斯亮蓝G-250染色后测量595 nm下吸光度,根据标准曲线获得未知蛋白浓度。UGPase酶活性测定利用酶标板进行,方法参照试剂盒说明。
1.6 染色体步移(genome-walking)
利用Genome Walking Kit试剂盒(TaRaKa,6108)扩增未知的启动子片段,通过同向嵌套的3个特异性引物SP1、SP2、SP3与简并引物AP组合使用进行TAIL-PCR(terminal asymmetric interlaced PCR),对特异性产物进行富集以获得未知启动子序列。染色体步移参考试剂盒说明书方法进行。
2 结果与分析
2.1 盐肤木UGPase家族基因的鉴定及编码蛋白性质分析
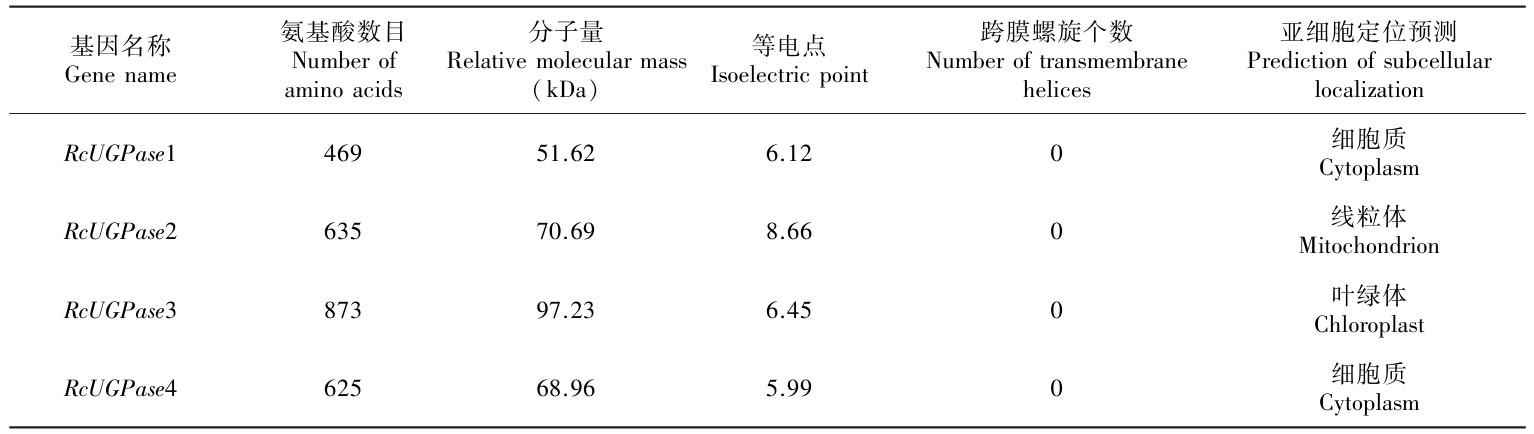
根据已知的尿苷二磷酸葡萄糖焦磷酸化酶(UGPase)基因家族的保守结构域(PF01704),从课题组前期的盐肤木叶片组织三代转录组测序数据中检索得到9个候选的unigene基因。进一步去冗余,并进行基因克隆验证,最终获得4个UGPase同源基因并将其分别命名为RcUGPase1、RcUGPase2、RcUGPase3、RcUGPase4(表1),其编码蛋白的氨基酸数目分别为469、635、873和625。利用ExPASy数据库预测分析发现,4个蛋白的分子量分别为51.62、70.69、97.23、68.96 kDa,等电点分别为6.12、8.66、6.45、5.99。利用TMHMM Serverv.2.0、TMbase和Transporter Classification Database 3个数据库预测分析发现,4个蛋白的跨膜螺旋结构数目均为0。同时,运用CELLO v2.5、Plant mPLoc和WoLFPSORT 3个数据库预测了4个蛋白的亚细胞定位情况。综合3个数据库的预测分析结果,最终得出4个蛋白分别定位于细胞质、线粒体、叶绿体和细胞质中。
2.2 盐肤木UGPase基因的聚类分析
以往的研究分别报道了拟南芥(Meng et al., 2008)、水稻(Abe et al., 2002)、马铃薯(Katsube et al., 1990)和金线莲(嵇元烨等,2021)等植物中有活性的UGPase酶,并且一般认为存在两类UGPase酶,即UGPase-A和UGPase-B(Kleczkowski et al., 2010)。为了进一步明确盐肤木中催化UDP-葡萄糖合成的关键UGPase酶,将4个盐肤木UGPase蛋白与13个其他物种的具有催化活性的同源蛋白构建了系统进化树。结果(图1)显示:RcUGPase1与属于UGPase-A类的StUGPase1、StUGPase2等亲缘关系最近;RcUGPase3与AtUGPase3亲缘关系最近,两者同属于UGPase-B类型;RcUGPase2和RcUGPase4与这两类蛋白相对而言同源性较远。
2.3 盐肤木UGPase蛋白基序分析
进一步利用MEME v5.5.5网络在线数据库对盐肤木中4个UGPase蛋白及13个其他植物的UGPase蛋白序列进行蛋白基序(motif)分析。设置motif数目为15个,设定大小区间在5~60个氨基酸之间。从蛋白motif分布规律上看,RcUGPase1与AtUGPase1和AtUGPase2等UGPase-A类蛋白的较一致,蛋白基序结构相似度高,而RcUGPase3与UGPase-B类蛋白AtUGPase3完全一致(图2)。以上结果与蛋白序列系统进化分析的结果(图1)一致,据此我们认为RcUGPase1属于UGPase-A类蛋白,而RcUGPase3属于UGPase-B类蛋白,盐肤木中可能同时存在UGPase-A类和UGPase-B类UGPase酶。
表
1
盐肤木UGPase家族蛋白的生物信息学分析
Table
1
Bioinformatics analysis of UGPase family proteins in Rhus chinensis
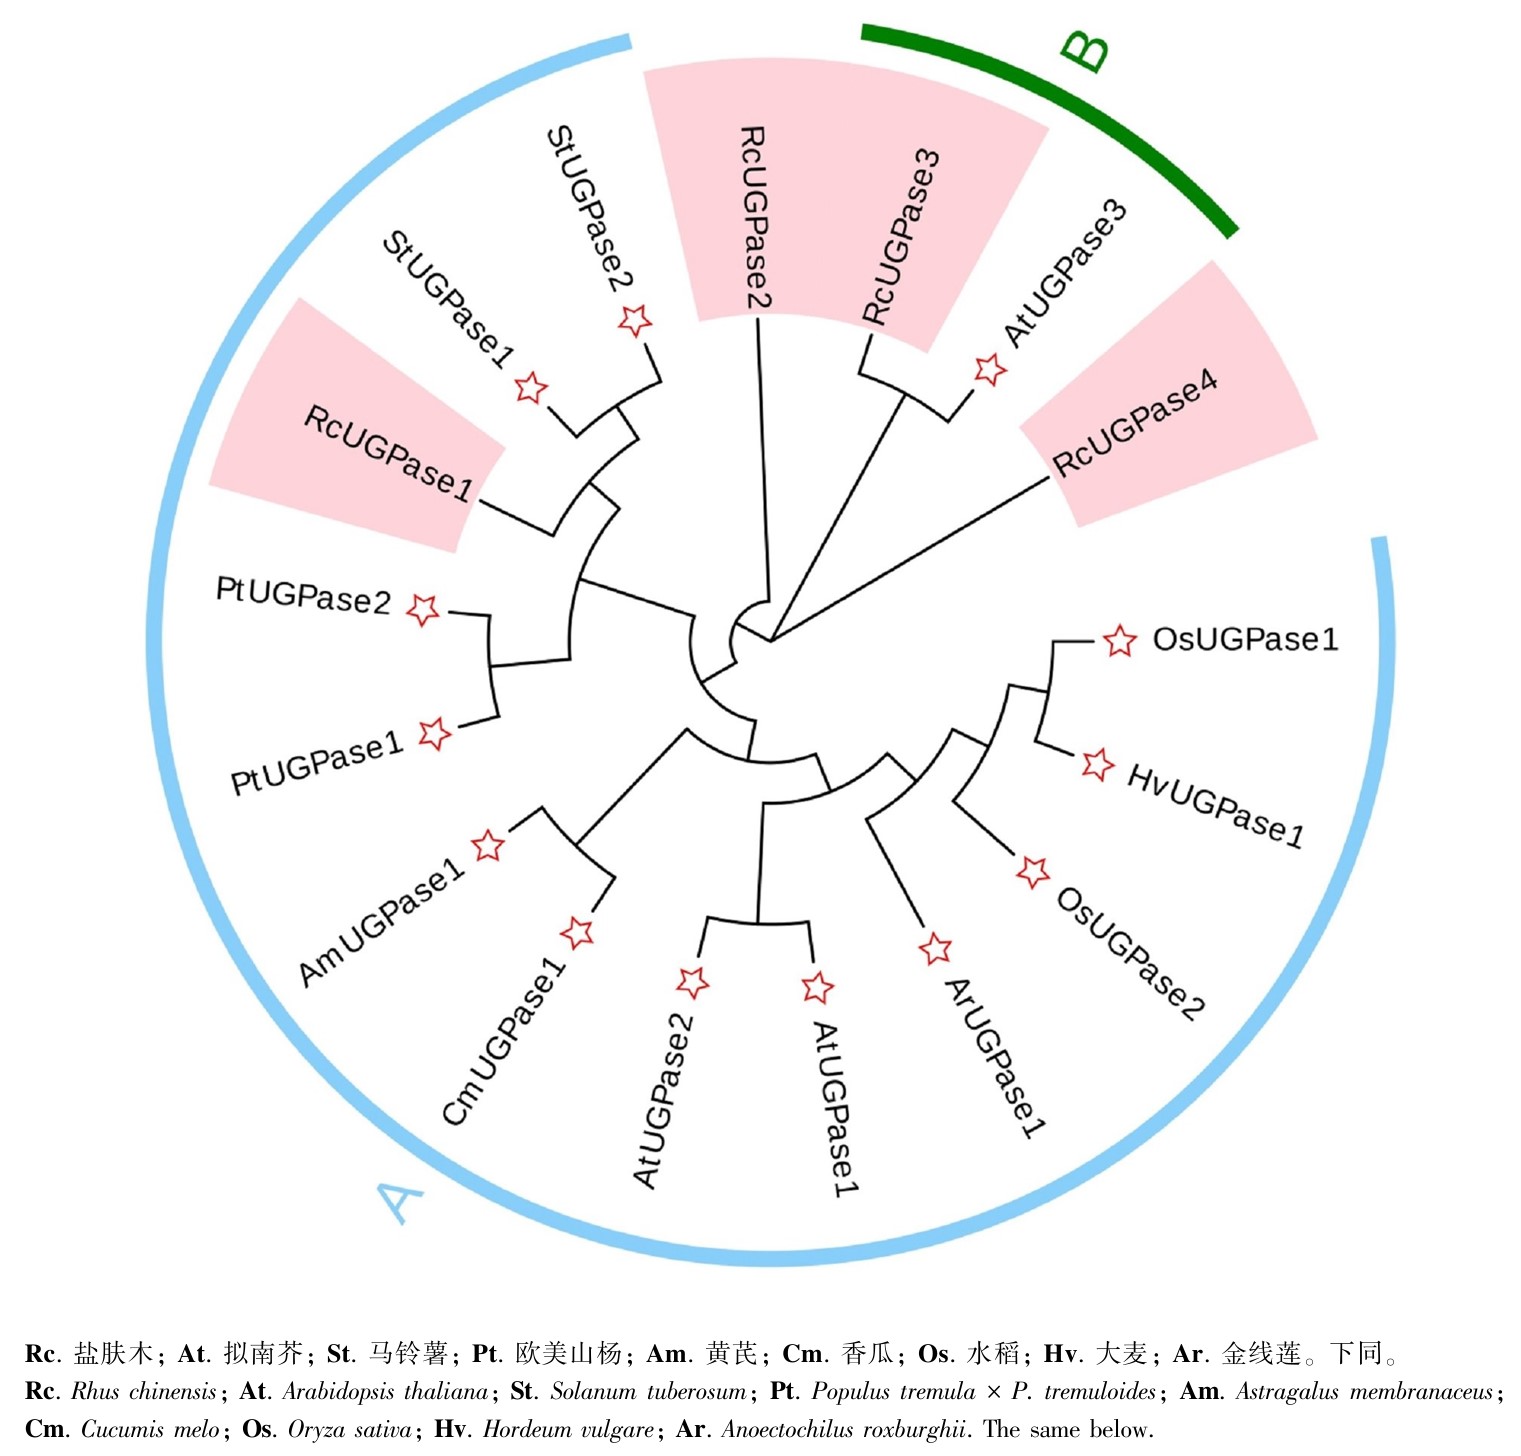
图
1
盐肤木RcUGPase蛋白家族成员进化树分析
Fig.
1
Phylogenetic tree analysis of RcUGPase protein family members
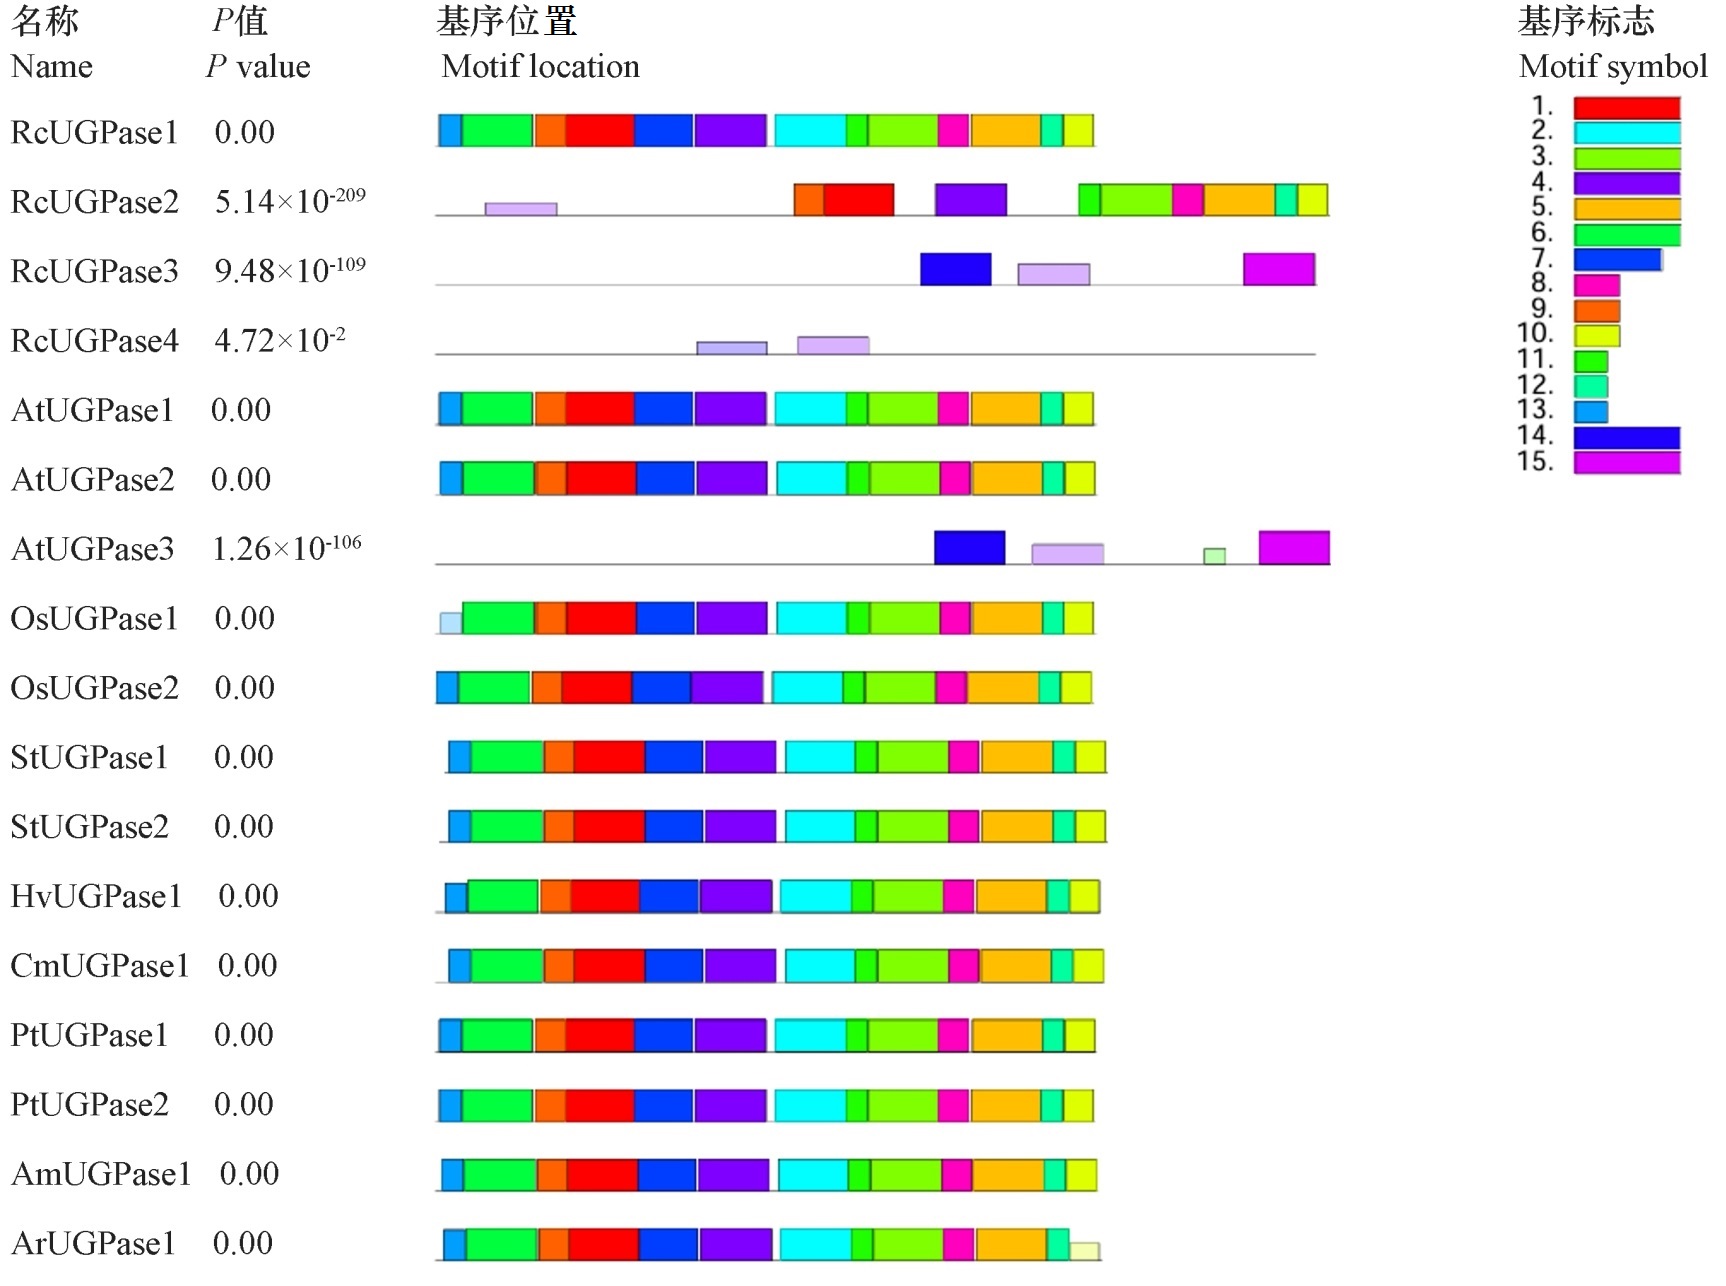
图
2
MEME预测的UGPase蛋白基序
Fig.
2
Motifs of UGPase protein predicted by MEME
2.4 盐肤木UGPase蛋白原核表达载体的构建与原核诱导表达
为具体验证盐肤木UGPase蛋白是否具有UGPase酶活性,在上述生物信息学分析的基础上,构建pET28a重组表达载体进行原核诱导表达。以盐肤木叶片cDNA为模板进行PCR扩增,获得RcUGPase1、RcUGPase2和RcUGPase4这3个目的基因片段,大小符合预期(图3:A),而RcUGPase3未能扩展成功,之后与经BamHI酶线性化的pET28a载体(图3:B)进行in-fusion重组,测序获得正确的重组载体。将3个RcUGPase蛋白的pET28a重组载体转化大肠杆菌BL21(DE3)菌株,并进行原核诱导表达。通过对IPTG浓度、诱导温度及时间进行筛选发现,在1 mmol·L-1浓度IPTG、16 ℃诱导10 h条件下成功诱导表达RcUGPase1、RcUGPase2和RcUGPase4这3个重组蛋白(图3:C-E)。为了进一步分析重组RcUGPase蛋白是否具有体外UGPase酶活性,利用镍柱对诱导的蛋白进行了纯化,并利用光谱法对3个重组蛋白RcUGPase的体外催化酶活性进行了定量分析。结果显示,RcUGPase1重组蛋白的比酶活为4.583 U·mg-1,其他重组蛋白未检测到酶活性。
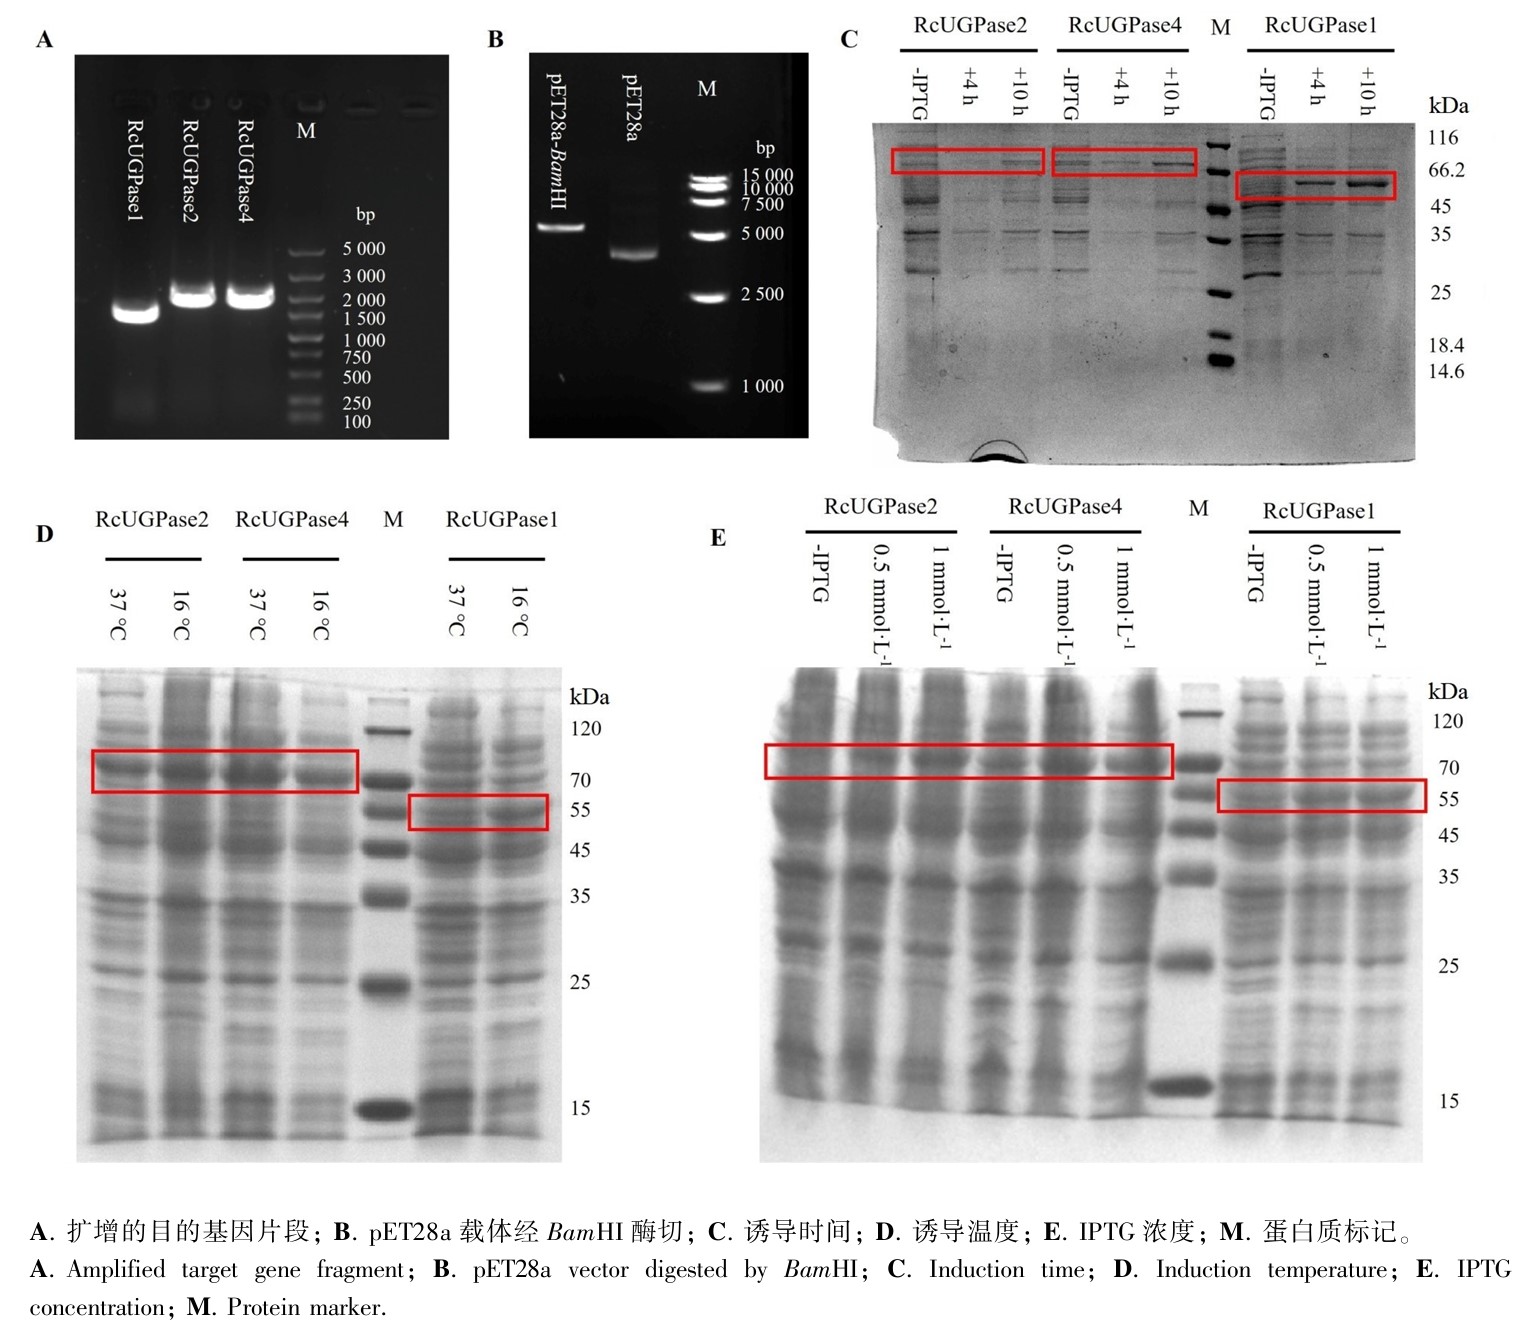
图
3
RcUGPase蛋白的原核诱导表达
Fig.
3
Prokaryotic induction expression of RcUGPase proteins
2.5 盐肤木UGPase家族基因的表达模式分析
为了进一步探究RcUGPase基因表达量与没食子单宁合成积累的关联性,对课题组前期研究的五倍子不同发育时期(0、21、47、69、105 d)转录组数据进行了分析。结果显示,RcUGPase1在五倍子形成的第21天和47天表达量显著上调,69 d后恢复到正常水平(图4:A);RcUGPase2的表达随着五倍子的发育整体呈现下降趋势(图4:B);RcUGPase3的表达变化不显著(图4:C);RcUGPase4在五倍子发育初期表达变化不显著,69 d后显著下调(图4:D)。五倍子发育不同时期RcUGPase家族基因表达量变化的差异性表明其在五倍子发育过程中具有不同的功能。
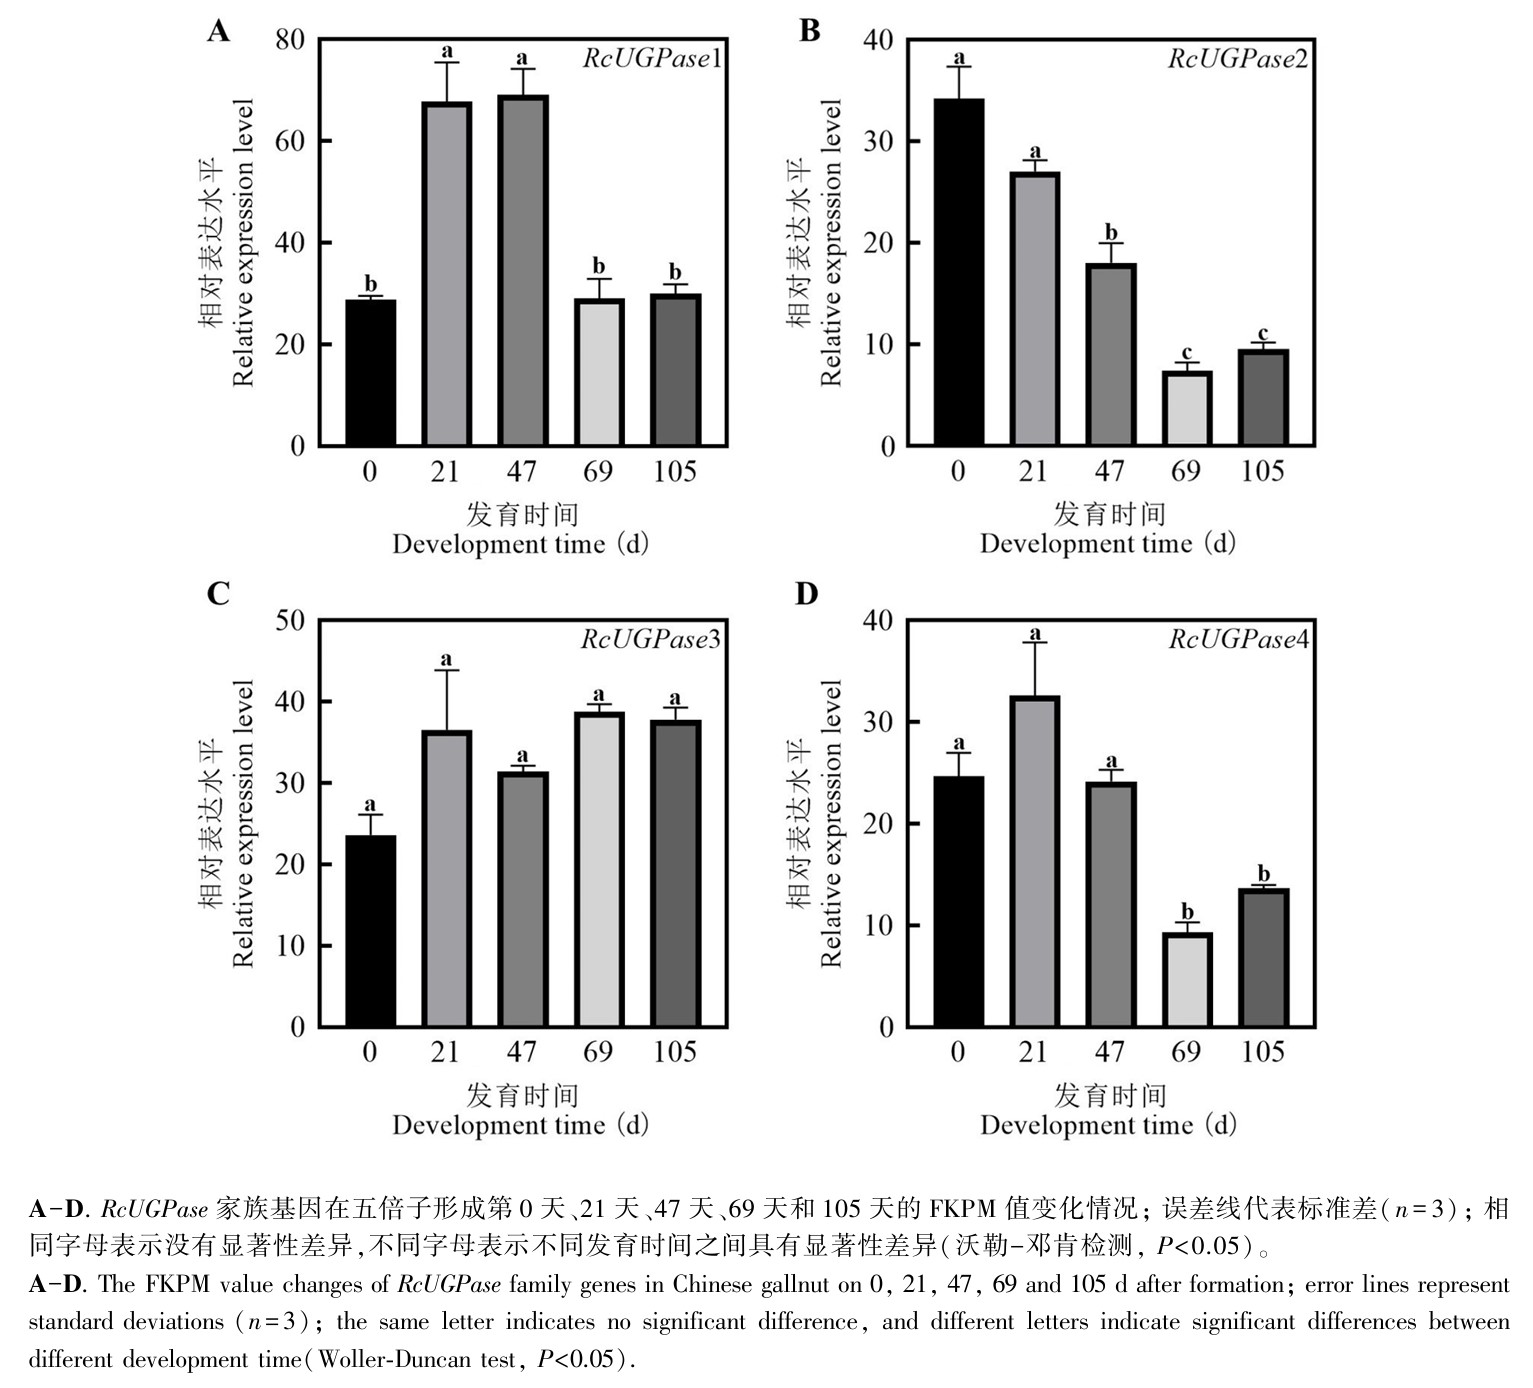
图
4
RcUGPase家族基因在五倍子不同发育时期的表达水平
Fig.
4
Expression levels of RcUGPase family genes in different developmental stages of Chinese gallnut
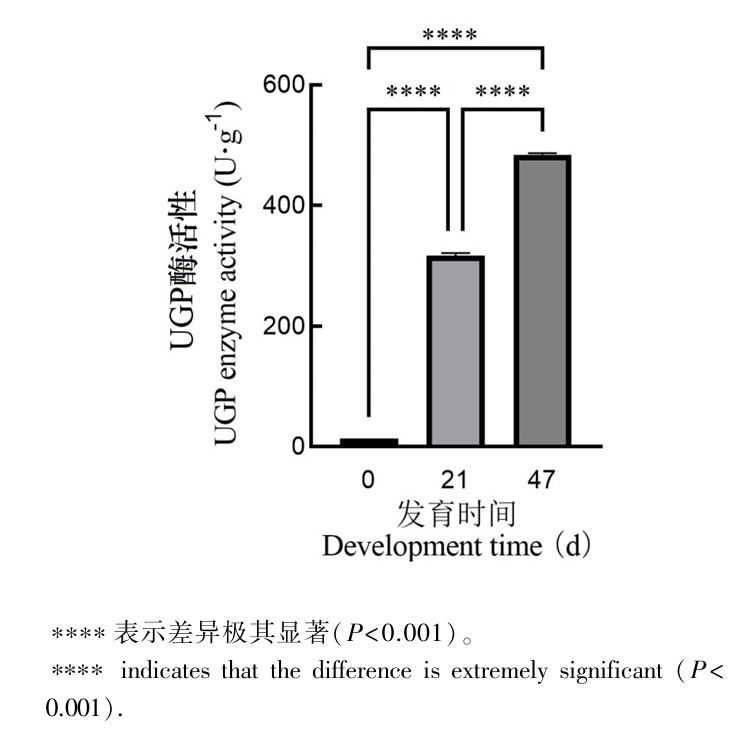
此外,Chen等(2018)研究发现,在五倍子发育早期,单宁含量急剧增加并达到平台期,而本研究的定量结果显示RcUGPase1的表达在这一时期显著提高。因此,我们利用植物尿苷二磷酸葡萄糖焦磷酸化酶活性光谱法定量检测试剂盒检测了五倍子发育早期(0、21、47 d)粗蛋白的UGPase酶活性变化。结果(图5)显示,与五倍子形成第0天相比,五倍子发育第21天和47天时五倍子粗蛋白提取物的RcUGPase酶活性显著提高。这表明在五倍子发育初期,UGPase酶活性会显著提高,为下游的没食子单宁酸的生物合成提供底物。
图
5
五倍子发育早期3个时期粗蛋白中UGPase活性分析
Fig.
5
Analysis of UGPase activities in crude proteins during the early three stages of Chinese gallnut development
2.6 RcUGPase1启动子序列的克隆与顺式作用元件分析
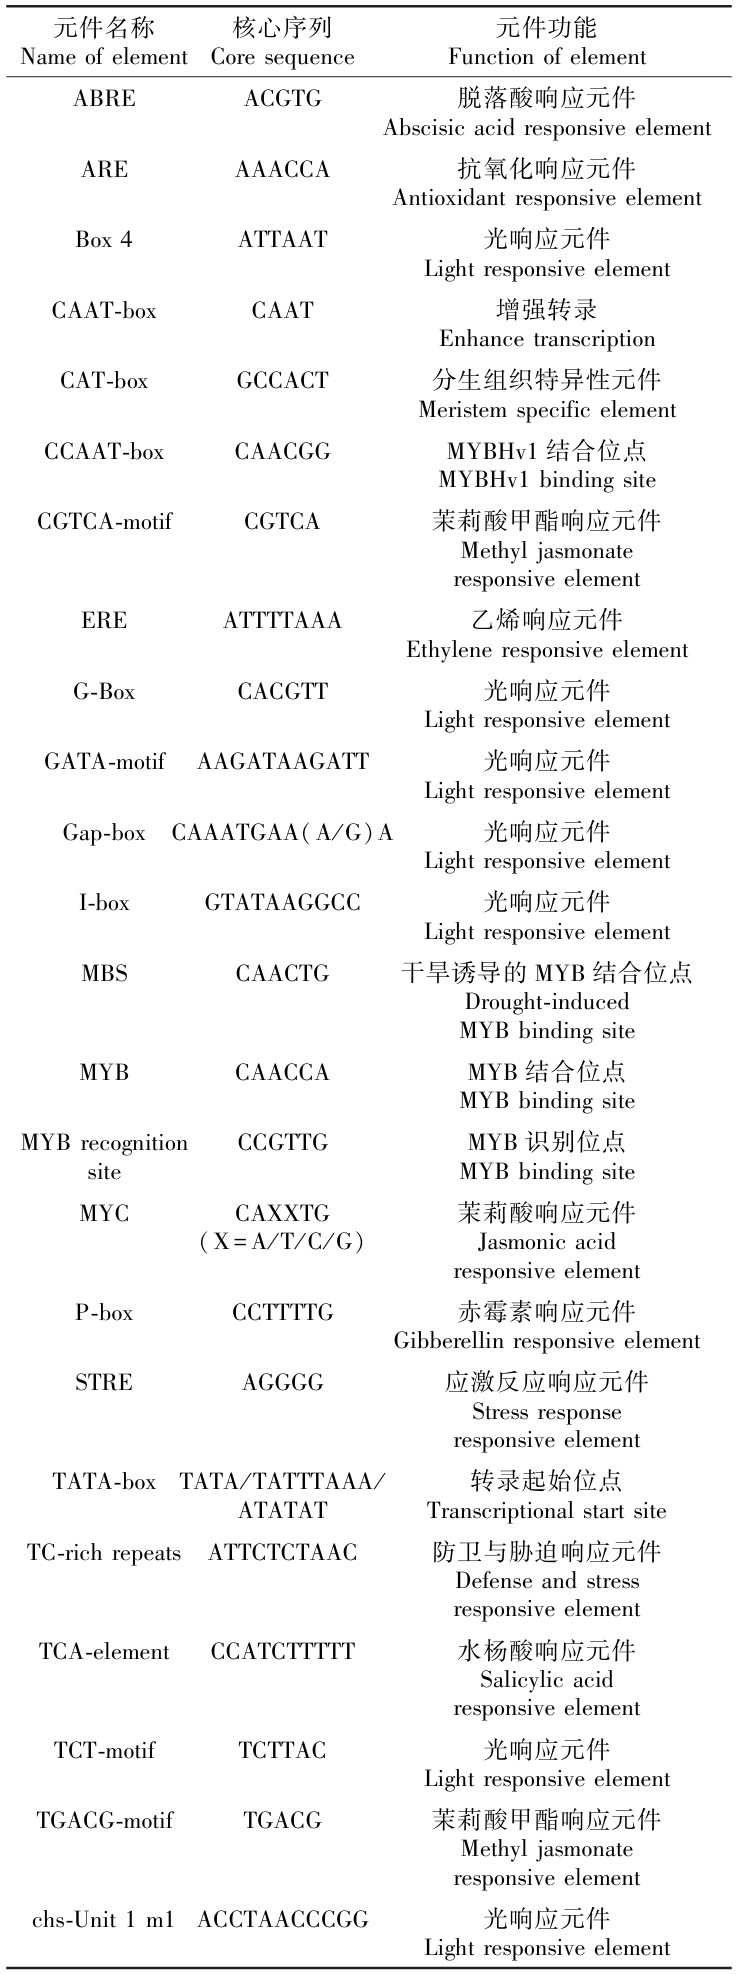
为进一步探究RcUGPase在盐肤木没食子单宁的合成中是如何被上游调控网络调控,先利用染色体步移技术克隆其启动子序列。考虑到蛋白序列同源进化比对显示RcUGPase1属于UGPase-A类,其表达在五倍子发育早期显著上调,与没食子单宁的积累及体内总UGPase酶活性呈正相关,且原核表达的重组蛋白具有体外催化活性,我们重点关注了RcUGPase1蛋白,克隆获得了RcUGPase1基因ATG上游2 334 bp的启动子序列。利用PlantCARE启动子预测网站对RcUGPase1启动子的顺式作用元件进行预测分析(表2)显示,该启动子片段具有多个增强转录效率的CAAT-box及作为转录起始位点的TATA-box等真核生物核心启动子元件。除此之外,RcUGPase1的启动子还含有大量响应非生物胁迫的顺式作用元件(表2),例如,光响应元件(Box 4、G-Box、GATA-motif等),抗氧化响应元件(ARE),干旱响应元件(MBS)以及激素响应元件[如脱落酸响应元件(ABRE)、茉莉酸/茉莉酸甲酯响应元件(CGTCA-motif、TGACG-motif、MYC)、赤霉素响应元件(P-box)、水杨酸响应元件(TCA-element)、乙烯响应元件(ERE)等],以及一些其他胁迫响应元件(STRE、TC-rich repeats)与分生组织特异性元件(CAT-box)。推测该基因的表达可能受到以上元件的调控。
3 讨论与结论
中国传统中药材五倍子富含植物水解单宁,使其具有重要的药用价值和工业价值。在倍蚜虫取食之前的盐肤木叶片中,没食子单宁含量仅占干重的5%,而随着蚜虫刺激下五倍子逐渐发育,没食子单宁含量逐渐上升,最高可达干重的70%(Chen et al., 2018)。在植物没食子单宁生物合成过程中,UDP-葡萄糖是重要的合成底物,其合成和积累是后续没食子单宁生物合成反应进行的基础。因此,深入挖掘盐肤木中催化UDP-葡萄糖合成的关键酶UGPase并解析其表达调控机制对于进一步阐明五倍子中没食子单宁的高含量积累机制具有重要意义。基于此,本研究对盐肤木三代转录组数据进行筛选得到4个RcUGPase候选基因,通过构建蛋白系统进化树、原核诱导表达纯化及体外酶活分析、基因表达模式分析等对RcUGPase基因的功能进行解析;同时,通过克隆RcUGPase1基因的启动子序列并对其顺式作用元件进行预测分析,初步揭示了RcUGPase1基因的候选上游表达调控因子,为进一步阐明五倍子中没食子单宁的合成调控机制奠定了基础。
植物中糖基化是一种常见的修饰方式,广泛参与植物次生代谢物的生物合成与修饰,而UDP-葡萄糖是植物糖基化中最为常见的糖基供体之一(Wang et al., 2019)。Grundhöfer等(2001)研究发现,在没食子单宁合成过程中,UDP-葡萄糖作为糖基供体,与没食子酸共同参与没食子单宁合成的关键第一步糖基转移反应,生成β-葡糖倍苷。因此,催化UDP-葡萄糖合成的酶会间接影响没食子单宁的合成和积累。本研究发现,在五倍子发育早期,组织粗酶液中UGPase的酶活性显著上升,这与以往报道的该阶段没食子单宁的积累趋势(Chen et al., 2018)一致,表明该酶与这一时期单宁的快速积累高度相关。进一步对该家族基因的表达量进行分析发现,仅RcUGPase1的表达在五倍子发育第21天和47天显著高于第0天,而其余家族基因表达下调或变化不显著,表明该基因可能是组织粗酶液中该酶活性上升的主要因素。此外,体外酶活实验表明,RcUGPase1蛋白具有体外催化合成UDP-葡萄糖的活性进一步印证了这一结论。这些研究结果表明,RcUGPase1蛋白很可能参与了盐肤木没食子酸单宁合成与积累的过程。
表
2
RcUGPase1启动子的顺式作用元件预测
Table
2
Cis-acting element prediction of the RcUGPase1 promoter
本研究对RcUGPase1基因启动子进行了克隆与顺式作用元件预测分析,发现了包括茉莉酸、脱落酸等在内的植物激素响应元件。梅丽丽(2018)对兴安落叶松中UGPase基因启动子进行克隆与分析,也发现了其具有茉莉酸等植物激素响应元件。此外,利用GUS报告基因在拟南芥中融合表达该启动子后分析发现,其表达活性受到外源茉莉酸甲酯、赤霉素及低温处理的诱导(梅丽丽等,2018)。茉莉酸是已知的植物应答昆虫胁迫的重要植物激素(Wang et al., 2021)。以往的研究表明,植物在面对昆虫胁迫时会激活茉莉酸通路,并诱导合成一些次生代谢物抵御昆虫伤害(张乐欢等,2024)。因此,鉴于五倍子是由五倍子蚜虫取食盐肤木时刺激植物组织异常增殖所形成(梁正等,2022),推测盐肤木中RcUGPase1基因可能也响应植物激素茉莉酸信号,从而参与调控五倍子中单宁酸的合成和积累。
本研究对盐肤木中RcUGPase家族基因进行了克隆与功能分析,综合系统进化、体外酶活性、表达模式、启动子预测等分析结果,RcUGPase1基因可能对五倍子中没食子单宁高含量积累起到重要作用。但是,由于目前缺乏合适的盐肤木转基因技术体系,本研究未能在盐肤木中进行候选基因的功能验证。因此,在之后的研究中,可以通过发根农杆菌介导的毛状根转化体系或者原生质体瞬时转化体系进行酶基因的功能验证。
致谢 感谢五峰土家族自治县林业科学研究所桑子阳博士和五峰赤诚生物科技股份有限公司严高红在盐肤木取样中提供的帮助。