摘要
为挖掘普通小麦(Triticum aestivum)抗逆关键基因,该研究结合生物信息学方法,对普通小麦DUF292基因家族进行全基因组鉴定及功能分析。结果表明:(1)在普通小麦中共鉴定出33个TaDUF292成员,命名为TaDUF292-01-TaDUF292-33,非均匀分布于15条染色体。(2)该家族蛋白均为亲水蛋白,主要定位于叶绿体、线粒体及细胞核。(3)系统发育分析将其分为3个进化分支,分支内基因结构与保守基序具有一致性。(4)启动子顺式作用元件以光响应及激素调控元件为主,提示该基因家族参与环境信号整合。(5)miRNA靶向预测显示,16类切割抑制型和5类翻译抑制型miRNA构成调控网络。(6)表达模式分析显示,TaDUF292家族成员呈现组织特异性表达,且对干旱、盐、高温及病原菌侵染的响应存在差异,部分成员在复合胁迫下显著上调。该研究系统揭示了小麦TaDUF292家族的分子特征与潜在功能,为普通小麦抗逆分子育种提供了基因资源和理论依据。
Abstract
To mine key stress-resistant genes in common wheat (Triticum aestivum), this study performed genome-wide identification and functional analysis of TaDUF292 gene family using bioinformatics approaches. The results were as follows: (1) A total of 33 TaDUF292 members were identified in common wheat and designated TaDUF292-01 to TaDUF292-33, which distributed unevenly on 15 chromosomes. (2) All proteins encoded by the TaDUF292 family were hydrophilic proteins and were mainly localized in chloroplasts, mitochondria and nuclei. (3) Phylogenetic analysis divided the TaDUF292 family into three evolutionary clades, and genes in the same clade exhibited consistent gene structures and conserved motifs. (4) Cis-acting elements in promoters were dominated by light-responsive and hormone regulatory elements, which indicated that this gene family participated in the integration of plant environmental signals. (5) miRNA target prediction revealed that 16 types of cleavage-inhibiting miRNAs and 5 types of translation-inhibiting miRNAs jointly constituted a regulatory network. (6) Expression pattern analysis showed that TaDUF292 family genes exhibited obvious tissue-specific expression and differential response patterns to drought, salt, heat and pathogen infection stresses, and several members were significantly upregulated under combined stress conditions. This study systematically clarifies the molecular characteristics and potential function of the TaDUF292 family in common wheat, providing genetic resources and a theoretical basis for stress-resistant molecular breeding of common wheat.
Keywords
小麦作为全球重要的粮食作物,其产量与品质的稳定性受到干旱、高温等非生物胁迫的严重制约,因此,挖掘胁迫响应关键基因家族对小麦抗逆分子育种至关重要。未知功能结构域(domain of unknown function, DUF)蛋白是Pfam数据库中一类氨基酸序列保守但功能尚未明确的蛋白家族,其编码基因广泛分布于植物基因组,虽不直接决定植物生存,但在生长发育调控与胁迫适应中起关键作用(Bateman et al., 2010; Luo et al., 2023)。随着功能基因组学技术的发展,多种作物中多个DUF家族成员的生物学功能已被逐步解析。水稻中,DUF266家族BC10功能缺失显著降低植株纤维素含量(Zhou et al., 2009);DUF1644家族成员OsSIDP301通过脱落酸通路调控盐耐受性及籽粒大小(Ge et al., 2022);DUF1645家族成员OsSGL上调抗逆基因以增强抗旱性,同时经细胞分裂素通路调控籽粒与根系发育(Cui et al., 2016; Liu et al., 2022);OsDUF668则在Avr9/Cf-9识别通路激活后响应稻瘟病侵染与机械损伤信号,增强生物胁迫抗性(Zhong et al., 2019)。在拟南芥中,DUF288家族的STL1与STL2辅助纤维素合酶复合体组装(Zhang et al., 2016);DUF538家族SVB通过调控GLABRA1参与叶毛状体形成(Yu et al., 2021);DUF246家族PAGR参与果胶合成,该基因缺失可影响雄性育性(Stonebloom et al., 2016)。经济作物中,棉花GhDUF4228-67沉默会降低耐盐性(Lv et al., 2022),DUF288家族的GhSTL1-4参与纤维素含量与长度的调控(Guo et al., 2022);大豆GmDUF4228-70过表达可增强植株对盐和干旱胁迫的抗性(Leng et al., 2021);玉米DUF966家族成员ZmAuxRP1通过调控吲哚乙酸合成,协同调控植株生长与茎腐病抗性(Ye et al., 2019)。这些研究表明,DUF家族通过多样化机制参与作物核心生物学过程。
尽管DUF家族研究进展显著,但普通小麦DUF292家族的系统解析仍属空白,其在小麦基因组中的分布特征、进化规律及在生长发育与逆境适应中的具体功能尚未明确,相关分子机制仍有待阐明,难以为小麦抗逆分子育种提供该家族的基因资源与理论支撑。基于此,本研究以普通小麦为研究对象,依托全基因组生物信息学分析技术,采用系统发育分析、基因结构预测、启动子顺式作用元件分析、miRNA靶向预测、染色体定位及表达模式分析等方法,通过整合多维度分析结果,拟探讨以下问题:(1)普通小麦DUF292家族成员的全基因组鉴定特征如何,包括家族成员数量、染色体分布规律、基因结构及保守结构域特征,其系统发育关系与其他物种同源成员存在怎样的差异;(2)普通小麦DUF292家族成员启动子区包含哪些核心顺式作用元件,其潜在靶向miRNA有哪些,这些元件和miRNA是否与小麦生长发育及逆境响应相关;(3)普通小麦DUF292家族成员在不同组织、不同非生物胁迫(干旱、高温等)处理下的表达模式存在怎样的差异,其表达特征是否与其潜在功能及逆境响应能力相关。
本研究旨在明确普通小麦DUF292家族的分子特征与潜在功能,阐明其在小麦生长发育与逆境适应中的作用机制,填补普通小麦DUF292家族系统解析的空白,为小麦抗逆与产量改良提供优质基因资源和坚实的理论依据。
1 材料与方法
1.1 植物材料及处理方法
试验材料为本课题组保存的硬红春小麦种质。选取饱满一致的种子,播种于水培装置中,置于光照培养箱培养10 d。培养条件如下:24 ℃/16 h光照、18 ℃/8 h黑暗,相对湿度60%~70%。培养10 d后进行胁迫处理,处理时间为6 h,具体处理包括盐胁迫(S,80 mmol·L-1 NaCl)、干旱胁迫(D,20% PEG-6000)、高温胁迫(H,30 ℃),以正常培养的幼苗为空白对照(CK)。处理结束后,采集幼苗叶片,液氮速冻后于-80 ℃保存,用于后续RNA提取。
1.2 基因家族成员鉴定
从Ensembl Plants数据库下载普通小麦参考基因组的基因组序列、蛋白序列及GFF3注释文件。基于Pfam数据库检索DUF292结构域(PF03398)的隐马尔可夫模型(hidden Markov model,HMM),采用HMMER 3.4软件在全蛋白组中初筛候选成员。利用交叉验证策略,使用NCBI CDD、SMART 9.0及Inter Pro Scan在线平台进行结构域二次验证,剔除冗余及不完整序列。
1.3 蛋白特性及系统发育分析
通过Expasy ProtParam工具计算蛋白分子量、等电点及亲水性指数(grand overage of hydropathicity,GRAVY)等理化参数(Gasteiger et al., 2005)。亚细胞定位预测使用WoLF PSORT在线平台完成。利用MEGA7软件对蛋白质全长序列进行多序列比对,采用默认参数进行比对分析(Kumar et al., 2016)。基于比对结果,采用邻接法构建系统发育树,参数如下:氨基酸替代模型选用泊松校正(Poisson correction);位点间进化速率选用均匀速率(uniform rates);空位处理方式选择部分删除(partial deletion),位点覆盖阈值设为95%。为评估树拓扑结构的稳定性,采用1 000次自举检验(bootstrap)进行重复抽样分析。系统进化树的可视化及注释通过Evolview在线工具完成。
1.4 基因结构与保守基序解析
基于GFF3注释文件提取基因结构信息。采用MEME网站预测保守基序。利用TBtools软件对基因结构进行可视化分析(Bailey et al., 2015; Chen et al., 2023)。
1.5 启动子顺式作用元件分析
提取各基因ATG起始密码子上游2 kb序列作为启动子区。采用PlantCARE网站预测顺式作用元件(Lescot et al., 2002),使用Excel软件进行统计分析。
1.6 miRNA靶向互作预测
采用psRNATarget网站对家族成员进行miRNA靶向关系预测(Dai & Zhao, 2011)。
1.7 表达模式分析
利用WheatOmics数据库获取组织特异性及生物胁迫处理的转录组数据;使用TBtools软件构建聚类热图。
1.8 qRT-PCR验证
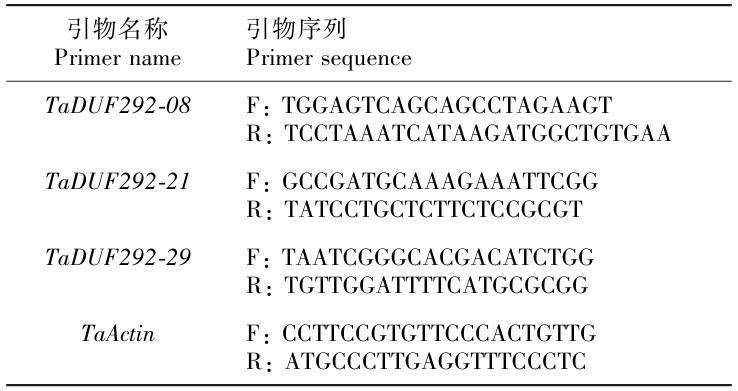
使用柱式植物总RNA抽提纯化试剂盒[生工生物工程(上海)股份有限公司]提取小麦幼苗RNA,使用M-MuLV第一链cDNA合成试剂盒[生工生物工程(上海)股份有限公司]进行反转录,根据基因编码序列设计荧光定量PCR引物(表1),使用QuantGene 9600实时荧光定量PCR仪进行qRT-PCR检测,以小麦Actin基因(TaActin)作为内参基因。
表
1
qRT-PCR引物序列
Table
1
Sequences of qRT-PCR primers
2 结果与分析
2.1 家族成员鉴定及蛋白理化性质分析
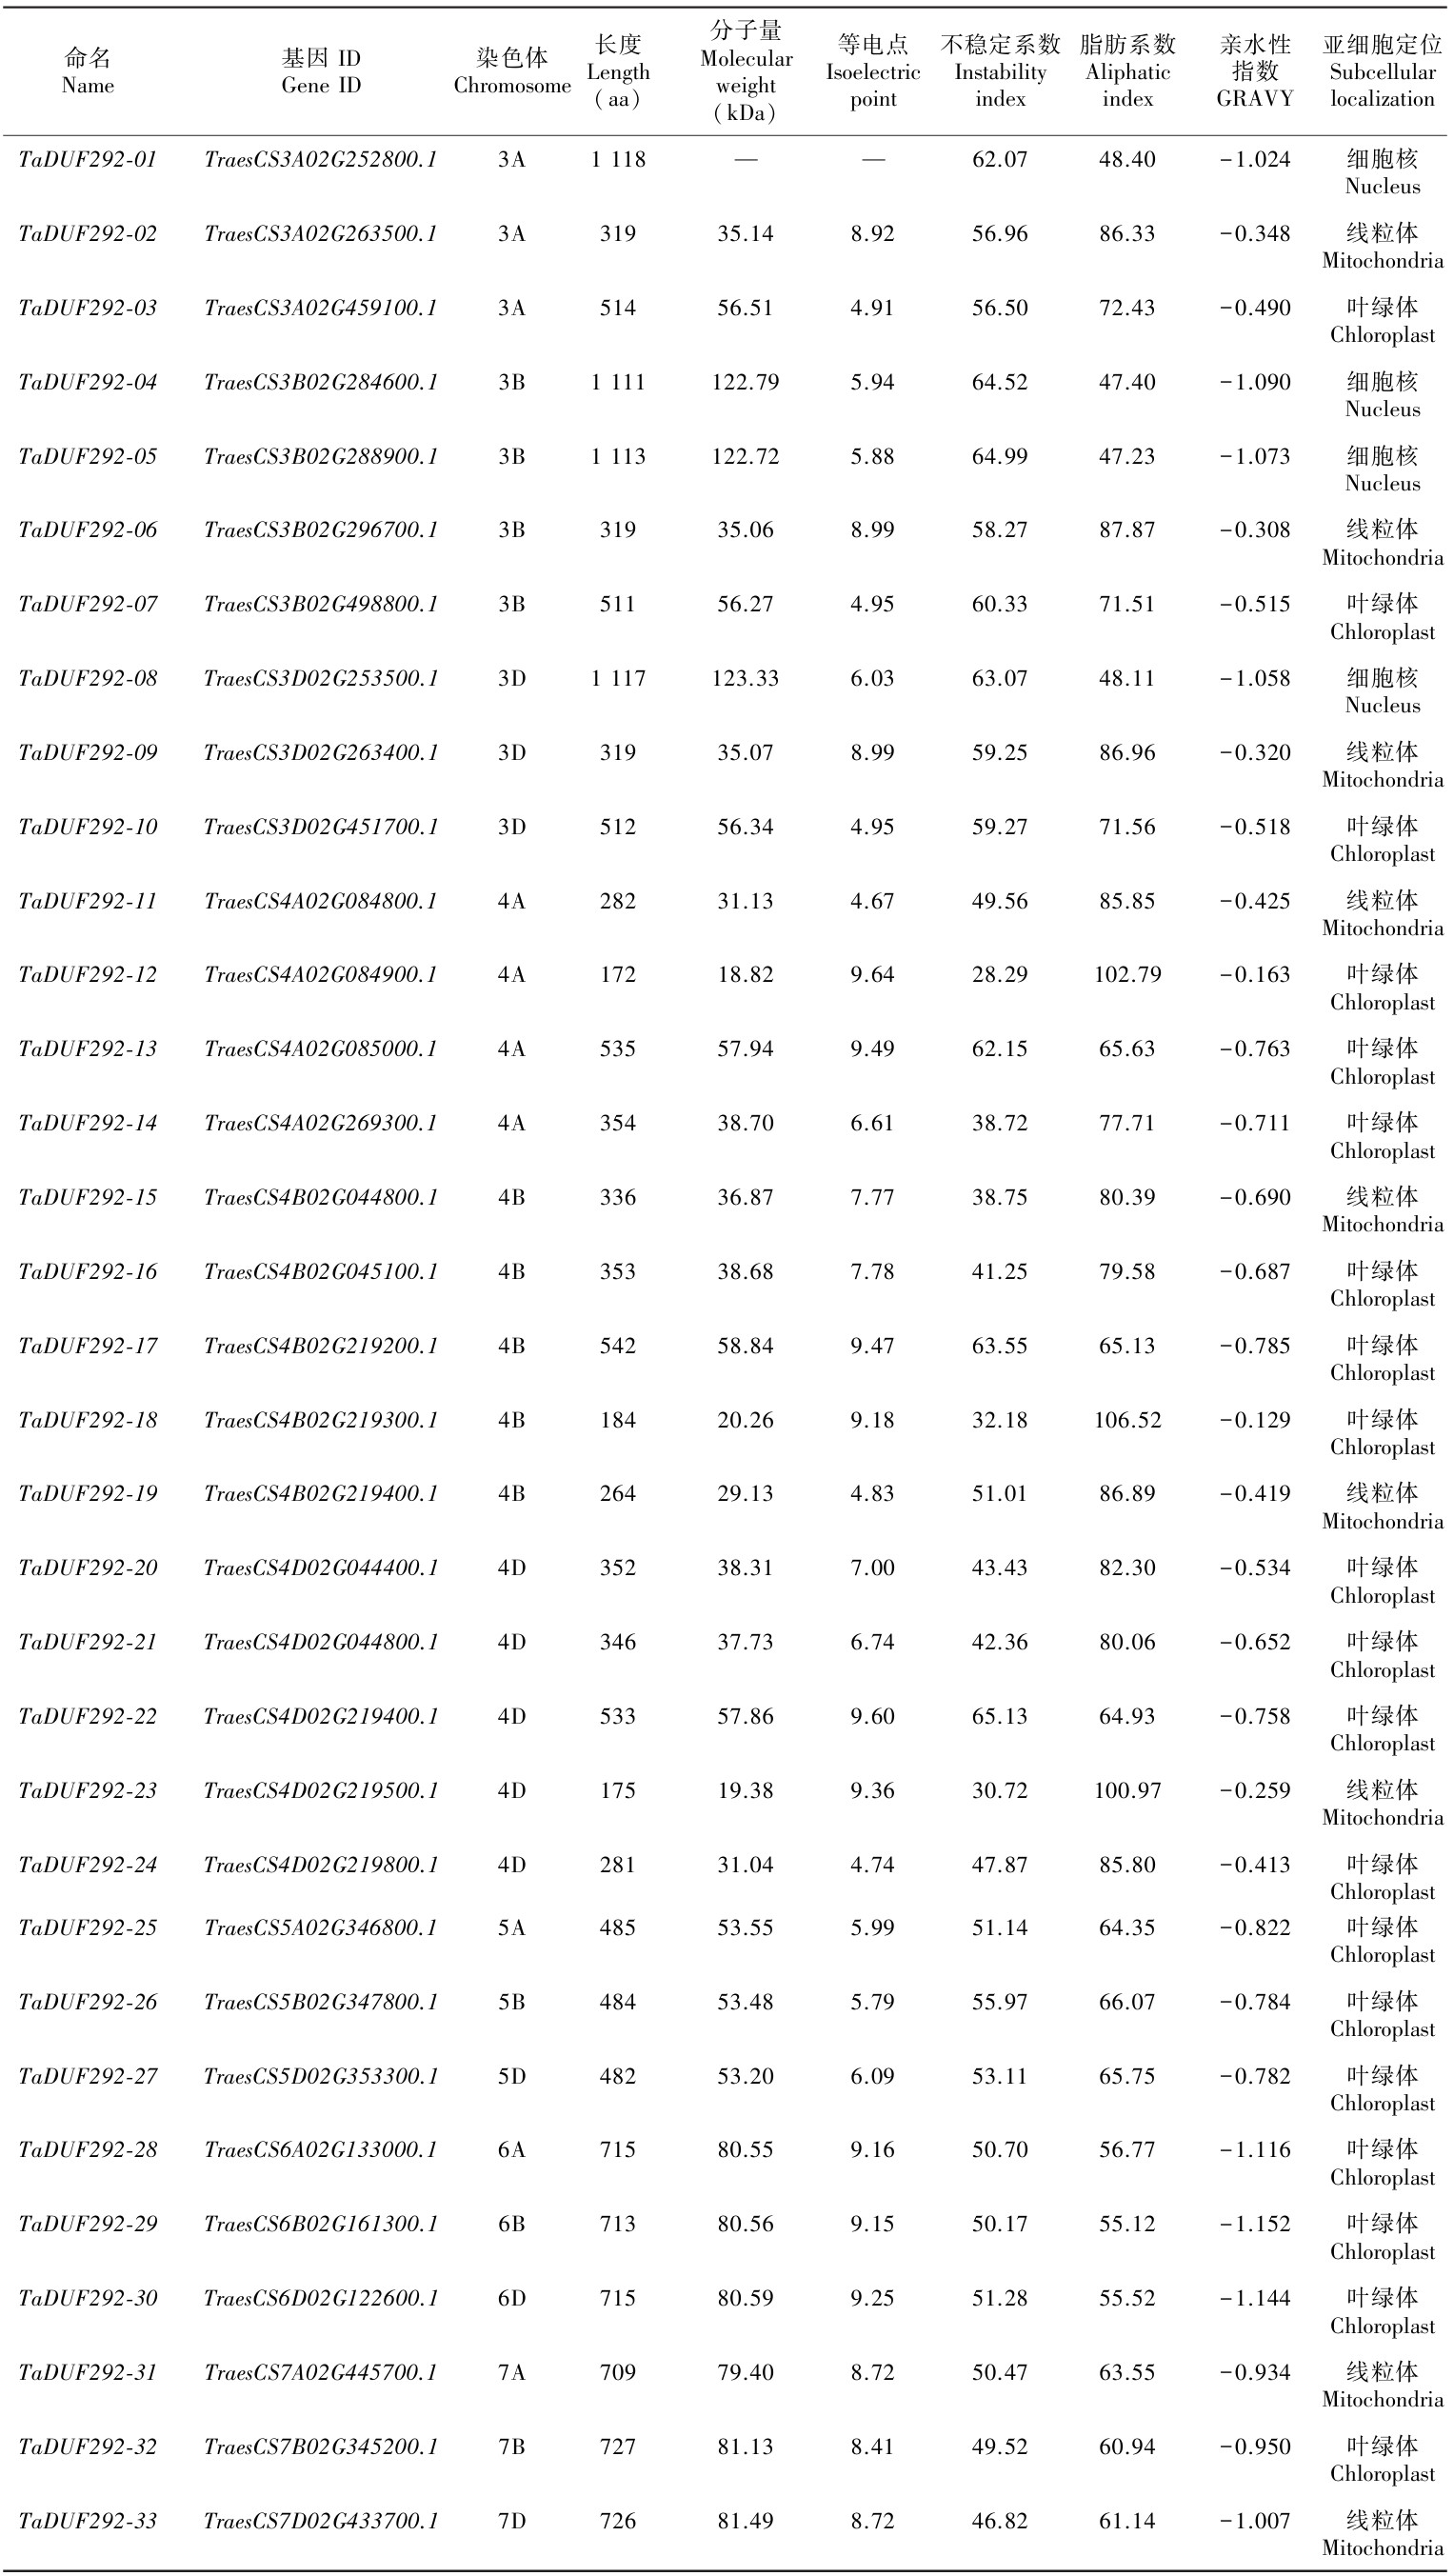
在普通小麦全基因组范围内共鉴定出33个小麦DUF292基因,根据其在染色体上的位置,将其依次命名为TaDUF292-01-TaDUF292-33(表2)。蛋白理化性质分析发现,TaDUF292基因家族蛋白的氨基酸长度为172~1 118 aa。除TaDUF292-01基因序列及蛋白序列因含有无法确定的碱基及氨基酸外,其他成员蛋白分子量为18.82~123.33 kDa,等电点为4.67~9.64,其中15个DUF292蛋白的等电点小于7.5,属于酸性蛋白。不稳定系数为28.29~65.13,其中TaDUF292-12、TaDUF292-14、TaDUF292-15、TaDUF292-18和TaDUF292-23编码蛋白的不稳定系数均小于40,提示蛋白稳定性好,属于稳定蛋白。
表
2
小麦DUF292基因家族成员信息
Table
2
Information of TaDUF292 gene family members in wheat
注:—表示无法计算。
Note:—indicates not calculated.
脂肪系数为47.23~106.52。亲水性指数为-1.152~-0.129,均小于0,均属于亲水蛋白。亚细胞定位预测显示,TaDUF292基因家族成员中有4个位于细胞核,9个位于线粒体,20个位于叶绿体。
2.2 系统发育分析
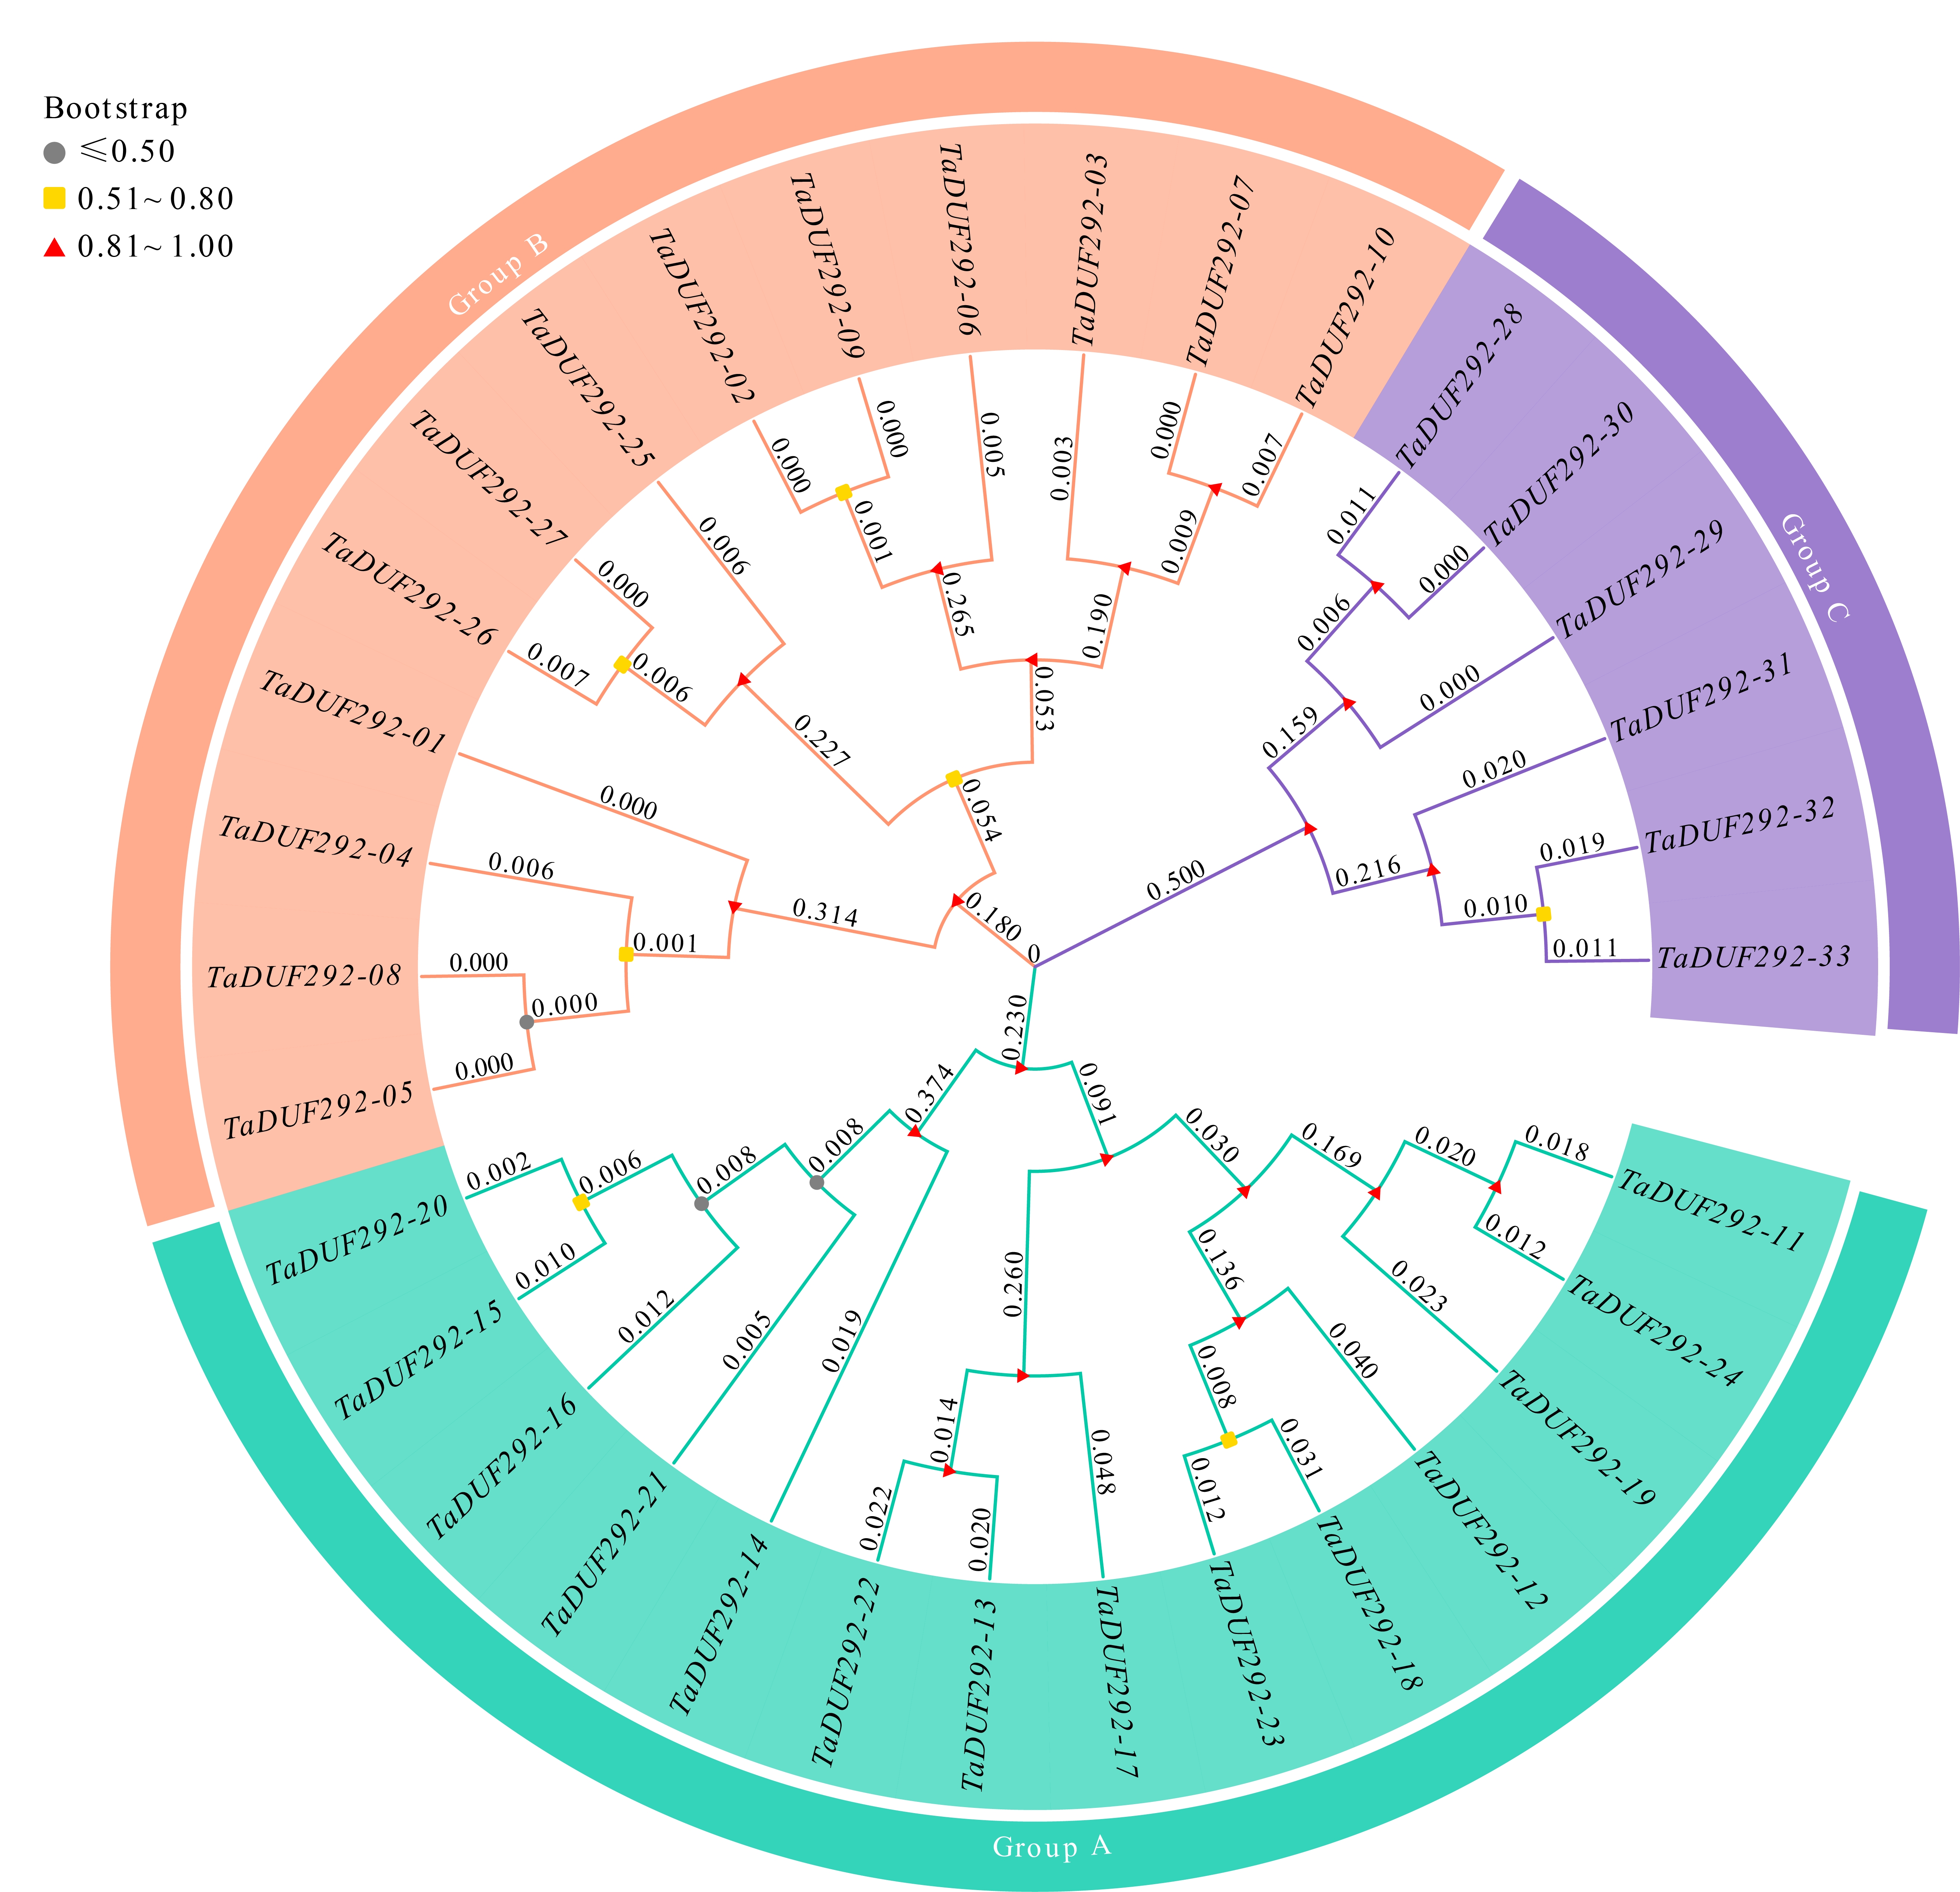
通过构建小麦DUF292基因家族成员的系统发育树,揭示了该基因家族的进化关系(图1)。系统发育树主要分为3个亚族,即Group A、Group B 和 Group C。Group A包含了如TaDUF292-14、TaDUF292-15等14个基因,这些基因显示出较高的相似性,表明它们可能源于最近的共同祖先,并在进化过程中维持了相似功能。Group B则包含了更广泛的基因,共有13个,如TaDUF292-01和TaDUF292-26等,显示出较大的多样性,提示这些基因可能适应了不同环境条件。Group C的成员虽然数量较少,只有6个,如TaDUF292-28和TaDUF292-31等,但它们之间的相似性仍然较高,可能在特定的生物学过程或发育阶段中发挥重要作用。
图
1
小麦DUF292蛋白系统发育树
Fig.
1
Phylogenetic tree of DUF292 proteins in wheat
2.3 基因结构分析
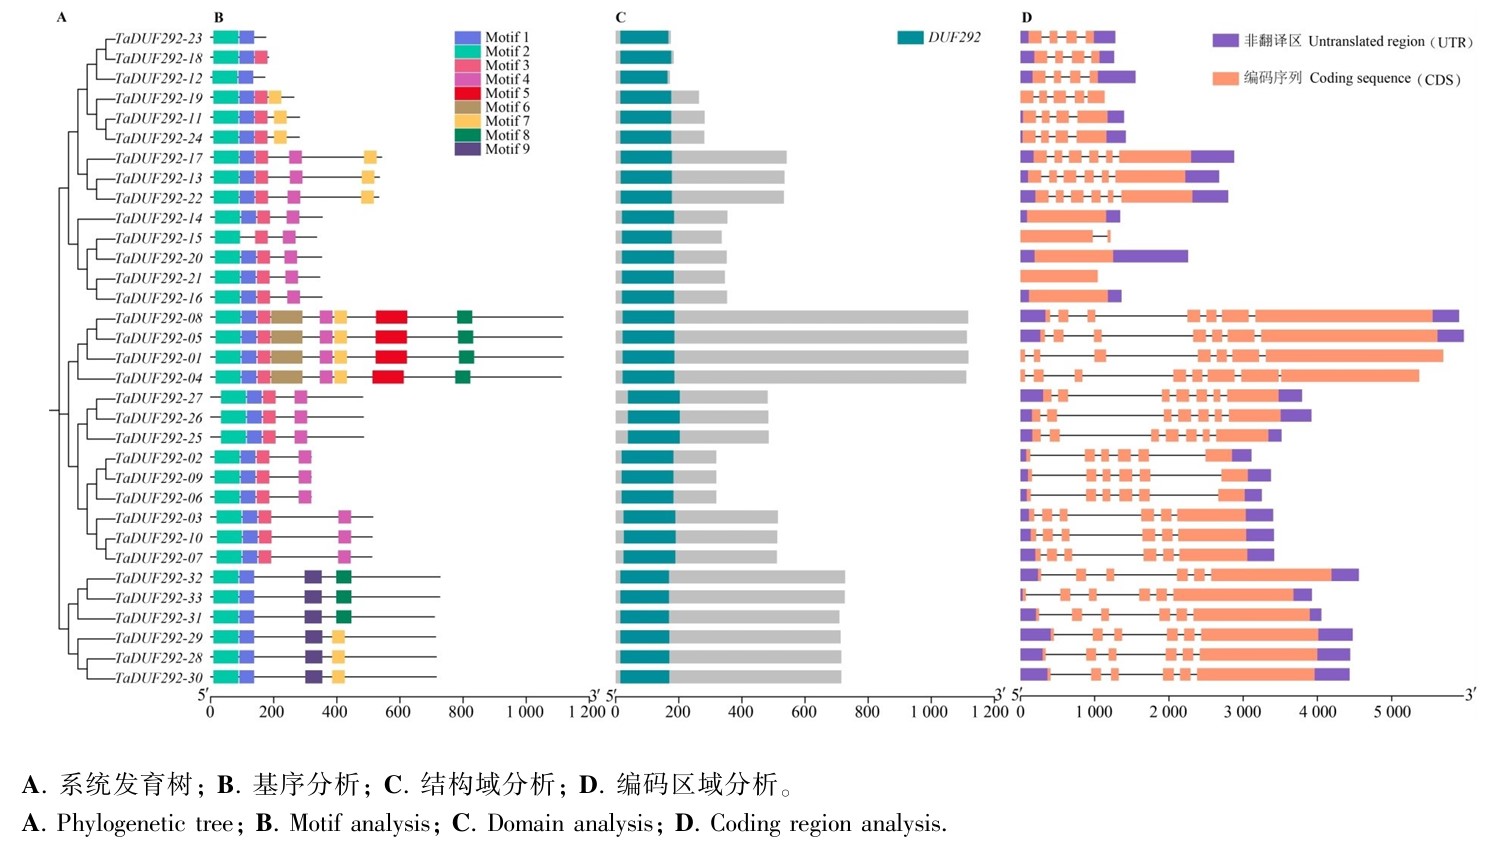
基因结构分析揭示了小麦TaDUF292基因家族的多样性和保守性(图2)。保守基序分析发现,Motif 2广泛存在于所有成员中,Motif 5与Motif 6为Group B亚族所特有,Motif 9仅存在于Group C亚族中。结构域分析结果表明,所有成员均保守地含有DUF292特征性结构域。编码区域分析发现,Group A亚族成员内含子数量为1~6个,其中TaDUF292-15、TaDUF292-19及TaDUF292-21无UTR区域;Group B亚族成员为6~8个,其中TaDUF292-01和TaDUF292-04无UTR区域;Group C亚族成员内含子数量均为6个,且均存在UTR区域。
2.4 启动子顺式作用元件分析
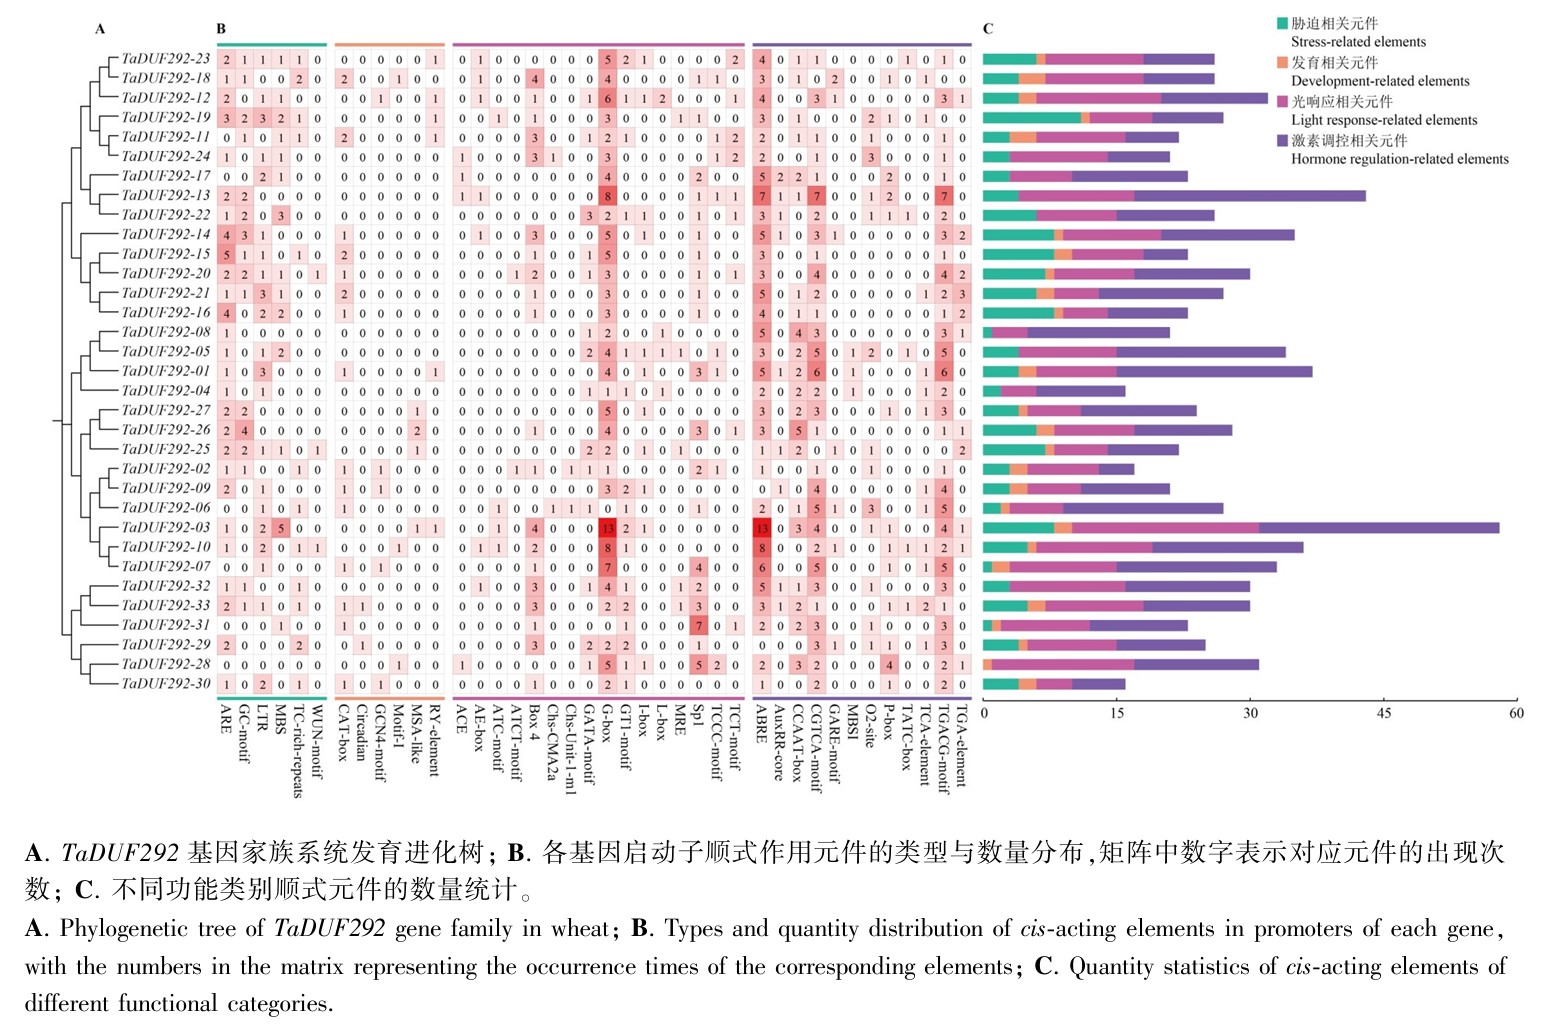
通过启动子区域的顺式作用元件预测,共检测到913个核心功能元件(图3),涉及胁迫(148个)、发育(40个)、光响应(310个)及激素调控(415个)四类。小麦DUF292家族成员所有启动子序列中,出现频率最高的4个顺式作用元件分别为G-box(参与光反应)、ABRE(参与ABA反应)、TGACG-motif(参与MeJA反应)和CGTCA-motif(参与MeJA反应),表明该家族可能通过多激素协同调控参与胁迫适应。TaDUF292-03与TaDUF292-13启动子区域所包含的顺式作用元件分别为58个和43个,显著高于其他家族成员,暗示这两个基因可能在小麦生理过程中发挥关键作用。
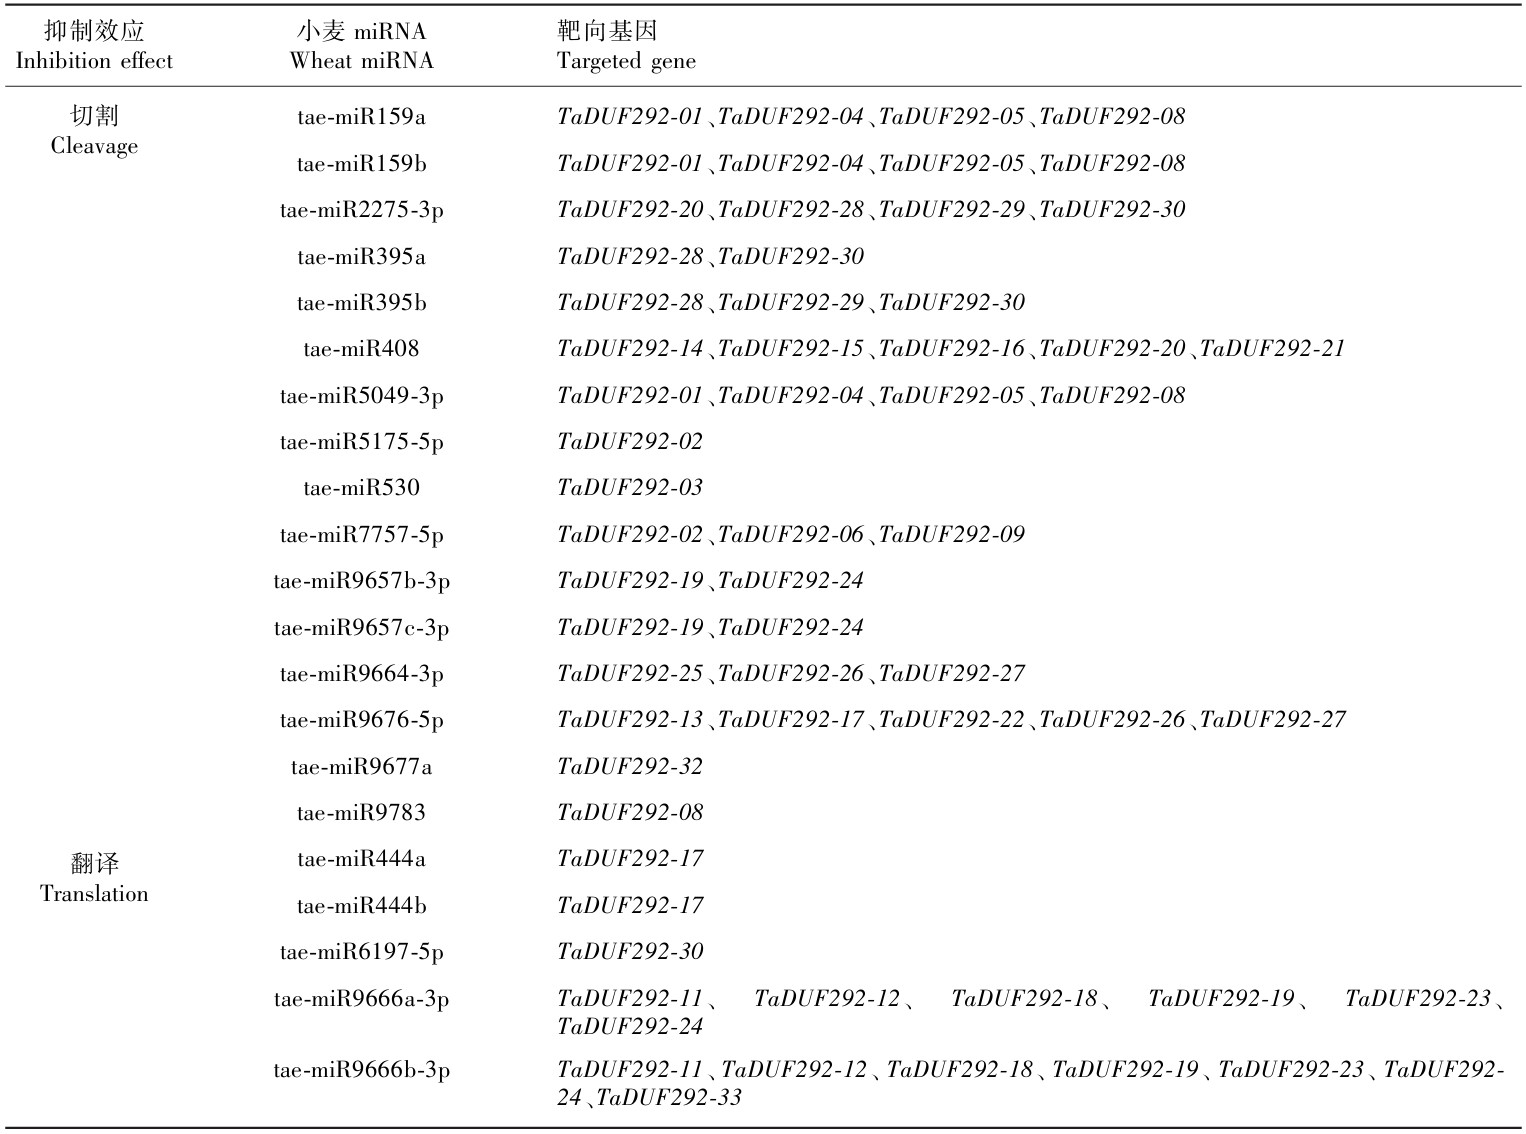
2.5 miRNA与TaDUF292基因家族的靶向关系预测
通过生物信息学预测,发现小麦DUF292基因家族成员受到两类miRNA的靶向调控,根据作用机制可分为切割抑制和翻译抑制两类(表3)。切割抑制中,tae-miR159a/b与tae-miR5049-3p协同靶向TaDUF292-01、TaDUF292-04、TaDUF292-05和TaDUF292-08,这种多miRNA共调控现象可能构成功能冗余的分子调控网络,以此来维持靶基因表达调控的稳定性;tae-miR408和tae-miR9676-5p展现出广泛的靶向范围,而tae-miR5175-5p、tae-miR530、tae-miR9677a和tae-miR9783均仅调控单个基因,表现出严格的特异性,表明其可能参与特定家族成员的功能分化调控。翻译抑制中,tae-miR9666b-3p靶向7个成员,构成最复杂的抑制网络。大部分成员仅存在一类调控效应,但TaDUF292-17、TaDUF292-19、TaDUF292-24和TaDUF292-30同时受切割抑制和翻译抑制双重调控,此类多层级调控可能精确控制基因表达时空动态。
2.6 小麦TaDUF292基因的染色体分布及共线性分析
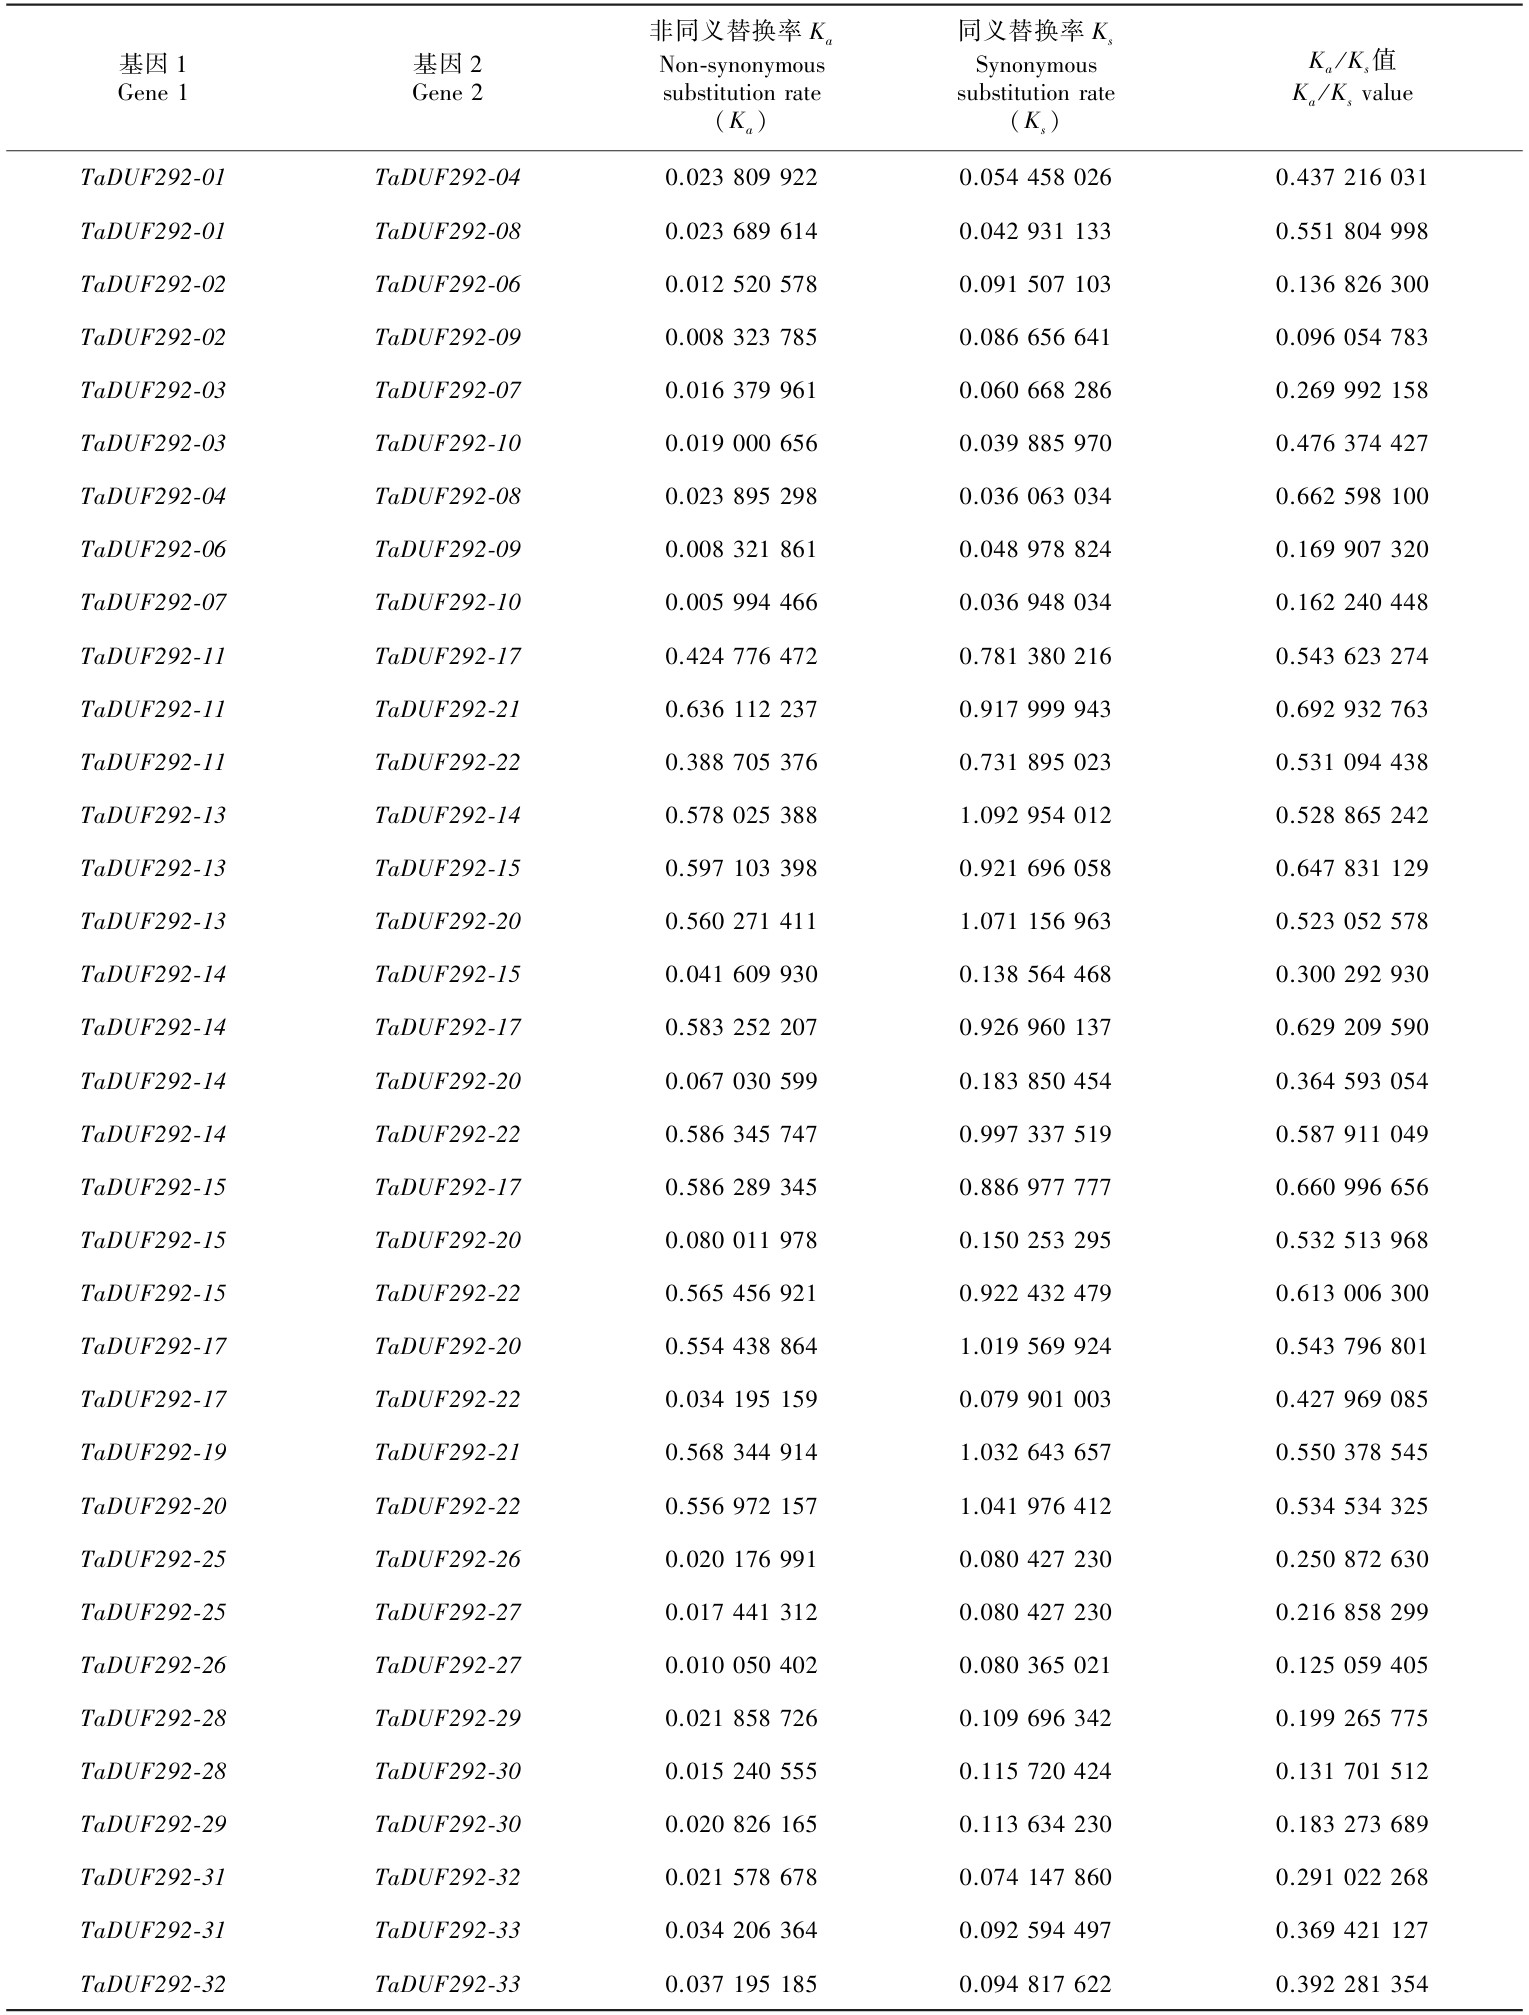
染色体定位显示,普通小麦DUF292基因家族成员非均匀分布于15条染色体(图4),其中染色体4B和4D分布密度较高。物种内共线性分析共鉴定出35个共线性基因对。进化选择压力分析表明(表4),物种内共线性基因对的Ka/Ks值均小于1(范围为0.096 054 783~0.692 932 763),其中3A染色体上的TaDUF292-02、3B染色体上的TaDUF292-06及3D染色体上的TaDUF292-09,两两之间Ka/Ks值均在0.096~0.170范围内,显示出强烈的纯化选择信号。TaDUF292-11分别与TaDUF292-17、TaDUF292-21、TaDUF292-22的Ka/Ks值在0.531~0.693之间,虽仍低于1,但其非同义替换率(Ka=0.388 705 376~0.636 112 237)要高于大部分其他基因对,可能暗示该基因在功能约束上存在细微分化。
图
2
小麦DUF292基因家族成员结构分析
Fig.
2
Structural analysis of DUF292 gene family members in wheat
图
3
小麦DUF292基因家族成员启动子顺式作用元件统计
Fig.
3
Statistics of cis-acting elements in promoters of DUF292 gene family members in wheat
表
3
miRNA与TaDUF292转录本靶向关系
Table
3
Targeted relationship between miRNA and TaDUF292 transcript
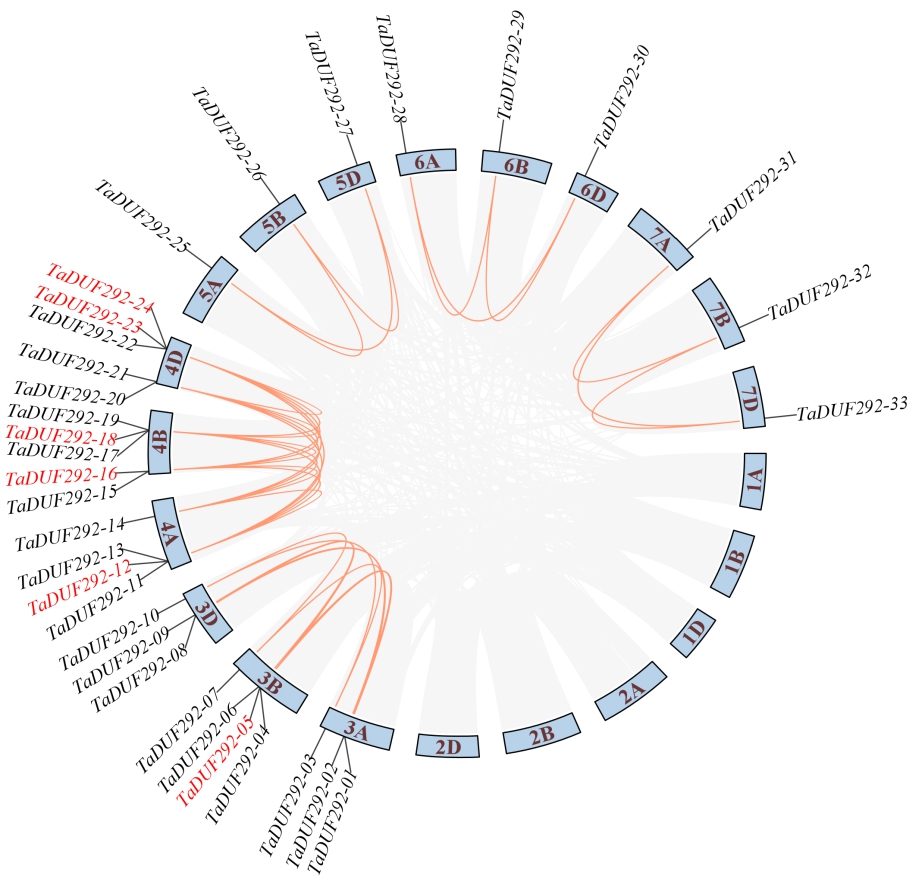
图
4
物种内共线性分析及染色体定位
Fig.
4
Intra-species collinearity analysis and chromosomal localization
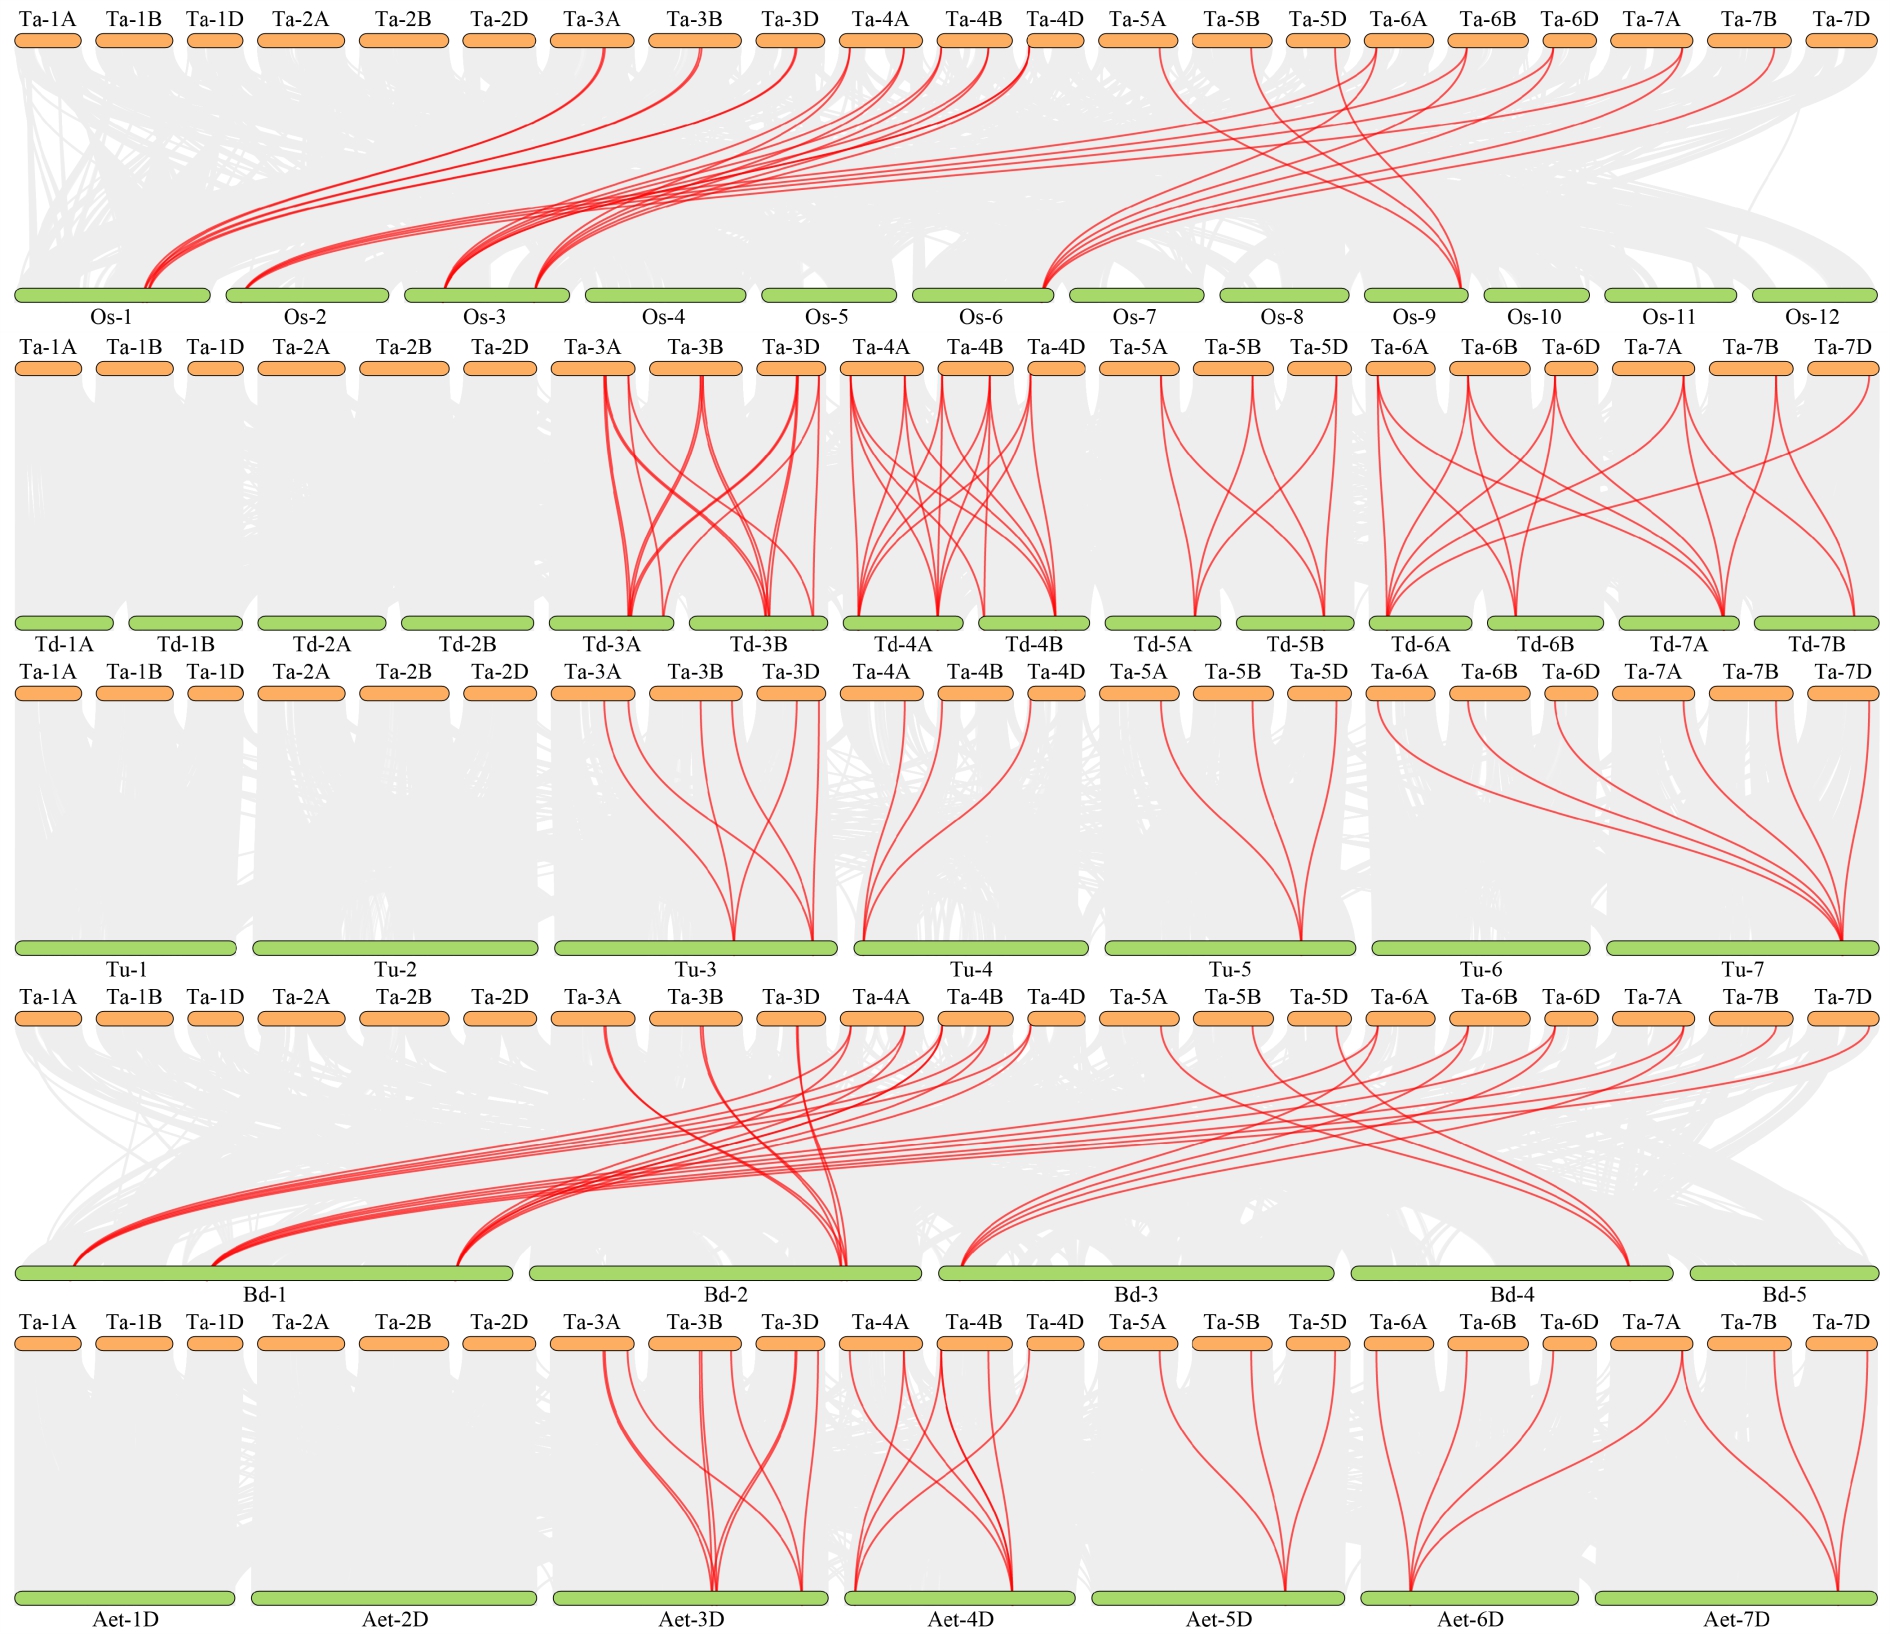
跨物种共线性分析(图5)显示,普通小麦DUF292基因与5个近缘物种存在不同程度的同源保守性。具体而言,24个普通小麦基因与9个节节麦基因形成27对共线性关系,21个普通小麦基因与8个二穗短柄草基因关联30对,20个普通小麦基因与8个水稻基因关联29对。值得注意的是,普通小麦与野生二粒小麦的共线性网络最为密集(22个普通小麦基因对应16个野生二粒小麦基因,共54对),而与乌拉尔图小麦的共线性关系最少(18个普通小麦基因对应乌拉尔图小麦5个基因,共18对)。分析发现,TaDUF292-14、TaDUF292-15和TaDUF292-31在物种间共线性基因对中参与度最高,各涉及10对保守关系,提示这些基因在禾本科演化过程中具有高度功能保守性。
表
4
小麦DUF292基因的进化选择压力
Table
4
Evolutionary selection pressure on DUF292 genes in wheat
图
5
小麦TaDUF292家族成员与水稻、野生二粒小麦、乌拉尔图小麦、二穗短柄草、节节麦的共线性关系
Fig.
5
Collinearity relationships between wheat TaDUF292 family members and those of Oryza sativa, Triticum dicoccoides, T. urartu, Brachypodium distachyon, and Aegilops tauschii
2.7 TaDUF292表达模式分析
通过整合前人已发表的转录组数据,对TaDUF292家族成员进行了表达模式分析。组织特异性表达分析(图6)显示,TaDUF292家族成员呈现显著表达异质性。整体而言,TaDUF292-01、TaDUF292-04、TaDUF292-05及TaDUF292-08基因表达量要显著高于其他家族成员。TaDUF292-16、TaDUF292-27等基因在营养器官(根、茎、叶)中维持中等表达水平,但在生殖器官(穗、籽粒)中表达量较低。相反,部分基因(如TaDUF292-12、TaDUF292-18)在穗部特异性表达,TaDUF292-21在籽粒中表达量最高,根系中也有表达但表达量较低,提示其可能分别参与穗部和籽粒发育调控。
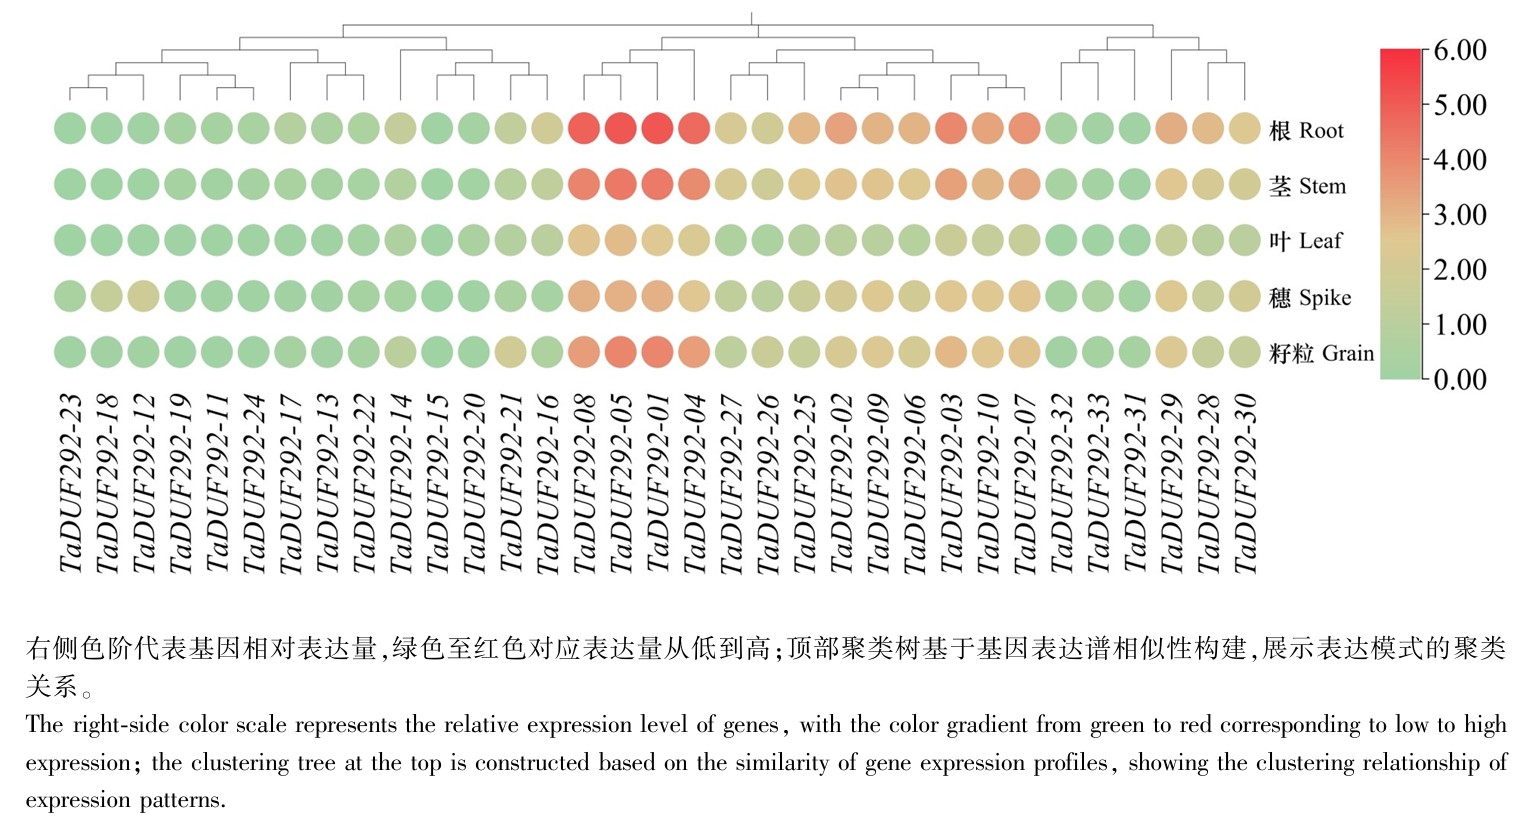
图
6
小麦TaDUF292基因在不同组织中的表达模式
Fig.
6
Expression patterns of wheat TaDUF292 gene in different tissues
生物胁迫表达模式分析(图7)显示,小麦在白粉菌侵染后的表达响应表现出时间依赖性:处理后24 h的表达模式与对照组无显著差异,多数成员维持低表达;而48 h和72 h后,部分TaDUF292成员的表达量明显上调,说明该家族基因对小麦白粉菌侵染的响应存在滞后性,主要在侵染中后期被激活。条形柄锈菌侵染后的表达特征则体现出“快速瞬时响应”的特点:处理24 h后,个别TaDUF292成员显著高表达,但处理48 h和72 h后,表达水平迅速回落至接近对照组的低表达状态,表明条形柄锈菌仅在侵染早期(24 h)触发该家族特定成员的瞬时表达上调。
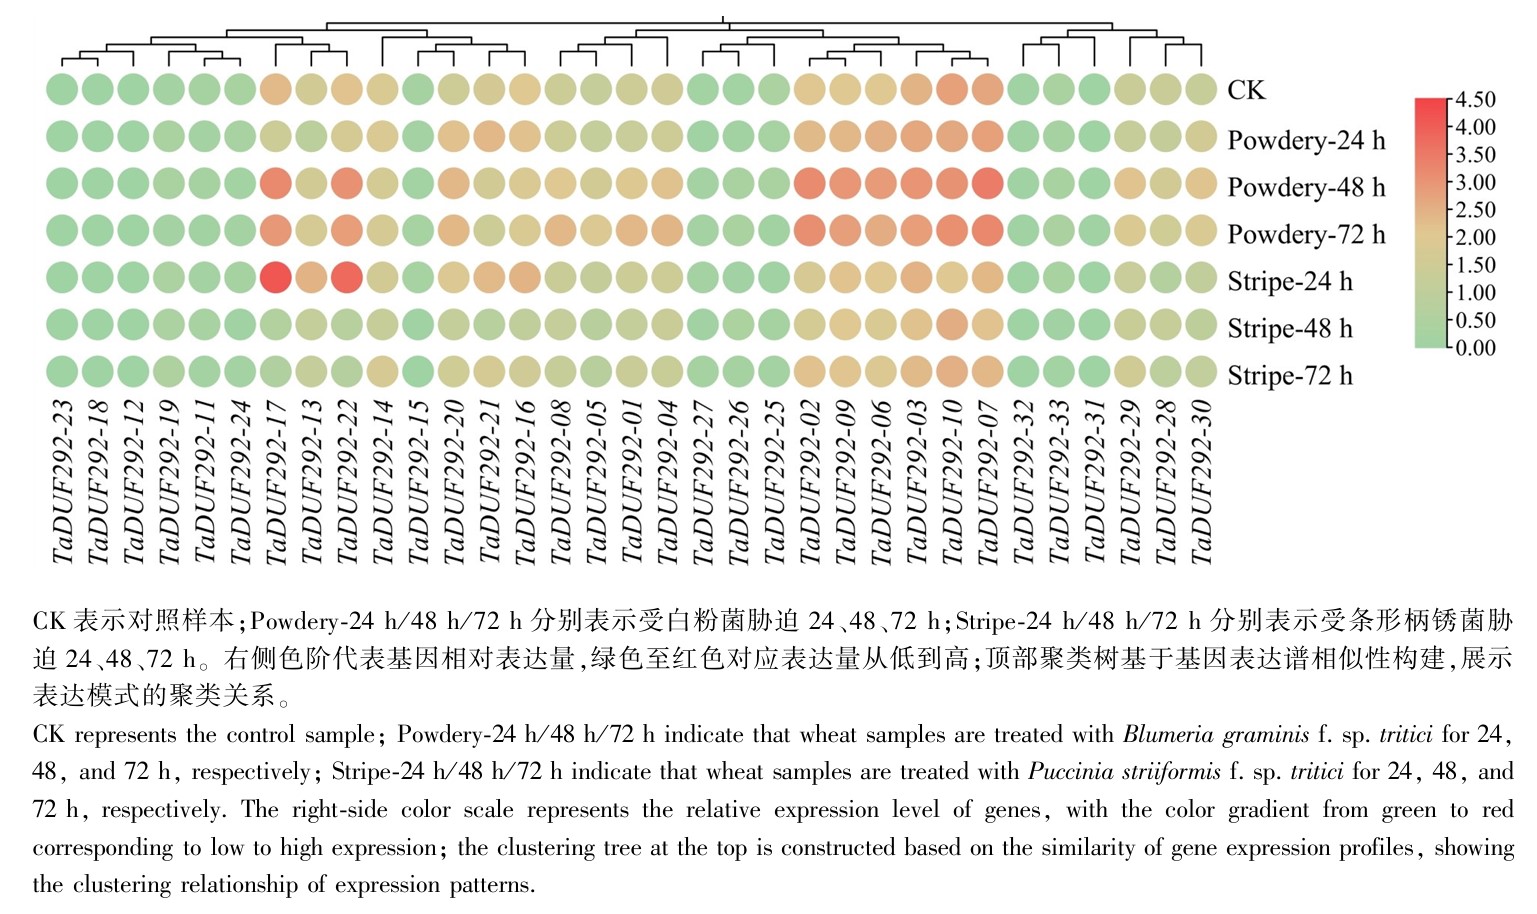
图
7
小麦TaDUF292基因在小麦白粉菌和条形柄锈菌胁迫下的表达模式
Fig.
7
Expression patterns of wheat TaDUF292 gene under the stresses of Blumeria graminis f. sp. tritici and Puccinia striiformis f. sp. tritici
2.8 非生物胁迫下的qRT-PCR分析
为验证小麦DUF292基因家族的非生物胁迫应答特征,从其3个亚族中各选取1个代表性基因,分别检测其在干旱(D)、高温(H)、盐(S)胁迫及复合胁迫下的相对表达量。结果(图8)显示,Group A亚族的TaDUF292-21在单胁迫处理下,高温、盐处理后其表达出现上调,复合胁迫中仅“盐+高温”胁迫处理维持较高表达,其余复合处理下表达量接近对照(CK)水平,体现出其对盐、高温单胁迫的响应特异性,以及部分复合胁迫下的胁迫间拮抗效应。Group B亚族的TaDUF292-08在单胁迫处理下,干旱、高温胁迫均显著抑制其表达;复合胁迫下,“盐+干旱”、“干旱+高温+盐”胁迫组合(All)中的表达量也有一定程度的下调。Group C亚族的TaDUF292-29响应模式最为活跃,所有胁迫处理后其表达量均有一定提高。单胁迫下,高温胁迫表达量要高于干旱胁迫及盐胁迫下;复合胁迫下,“高温+盐”及“高温+干旱”胁迫的表达量提升更为明显,整体呈现出胁迫间的协同诱导作用,暗示其在复合胁迫应答中具有核心调控潜力。
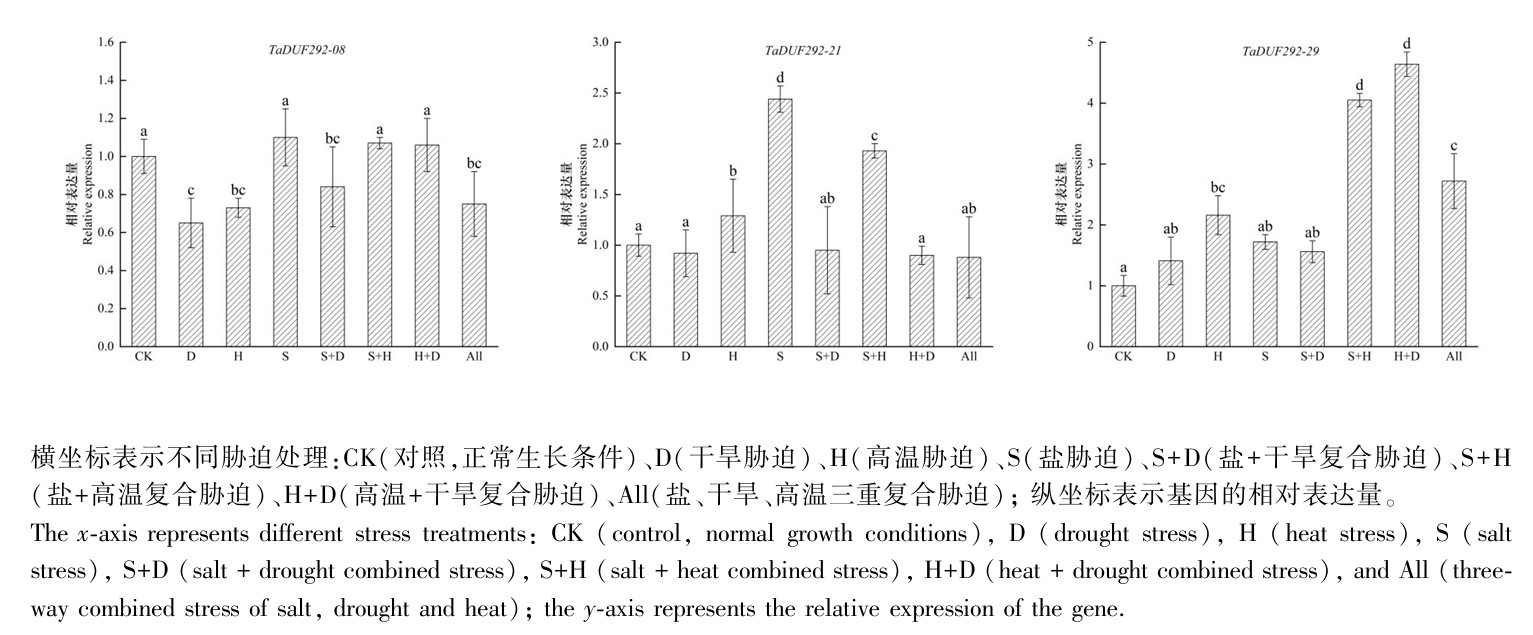
图
8
小麦TaDUF292基因在非生物胁迫下的表达模式
Fig.
8
Expression patterns of wheat TaDUF292 gene under abiotic stresses
3 讨论与结论
3.1 TaDUF292家族结构保守性与功能分化特征
本研究在普通小麦全基因组中鉴定出33个TaDUF292家族成员,均含保守DUF292结构域,且Motif 2普遍存在于全部成员,表明该家族进化中核心功能高度保守,这与拟南芥DUF966家族在保留保守结构域的同时调控抗逆性的机制相似(Shen et al., 2019)。系统发育树将其分为3个亚族,亚族内基因结构与保守基序一致性强,分支间呈现明显分化:Group A内含子1~6个、部分成员无UTR;Group B内含子6~8个、部分成员缺失UTR;Group C内含子均为6个且全部含UTR。此外,Motif 5与Motif 6为Group B特有,Motif 9仅存于Group C。这种保守结构域与分化基序、编码区并存的模式,既保证家族基础功能稳定,又通过结构变异实现亚家族功能特化,与拟南芥DUF288(Zhang et al., 2016)、水稻DUF266(Zhou et al., 2009)等家族进化规律相似,推测是基因复制与选择性剪接共同驱动的结果(Cheng et al., 2019)。
3.2 多层级调控网络赋予TaDUF292家族环境响应潜力
启动子顺式作用元件分析显示,光响应与激素调控元件占绝对优势,核心元件包括G-box、ABRE、TGACG-motif、CGTCA-motif,提示TaDUF292家族主要通过光信号与ABA、MeJA等激素通路整合环境胁迫信号。这与大豆GmDUF4228-70过表达增强盐旱抗性、水稻OsDUF668激活生物胁迫通路的调控机制类似(Zhong et al., 2019; Leng et al., 2021),但小麦TaDUF292家族的光响应与激素相关元件富集度更高,尤其TaDUF292-03和TaDUF292-13的启动子元件数量显著高于其他成员,推测其可能在小麦发育过程中发挥重要作用。
miRNA靶向预测揭示,16类切割抑制型和5类翻译抑制型miRNA构成转录后调控网络,tae-miR9666a-3p和tae-miR9666b-3p为核心调控因子,靶向多个成员,这种多miRNA共调控模式可能提供功能冗余,确保靶基因在胁迫下的表达稳定性。TaDUF292-17、TaDUF292-19、TaDUF292-24、TaDUF292-30同时受双重调控,这种多层级机制可能精确控制时空表达动态,为家族响应多样胁迫提供一定分子基础。
3.3 纯化选择主导家族进化,亚基因组分化适配小麦多倍体特征
物种内共线性分析鉴定出35对共线性基因对,所有Ka/Ks值均小于1,表明TaDUF292家族整体受强烈纯化选择。3A/3B/3D同源基因对纯化信号最强,核心功能在进化中被严格保留;4A/4B/4D部分基因对Ka/Ks相对较高,存在轻微功能分化,可能与小麦驯化中环境适应相关。
跨物种共线性显示,普通小麦与野生二粒小麦共线性网络最密集,与乌拉尔图小麦共线性关系最少,符合六倍体小麦演化路径。其中,TaDUF292-14、TaDUF292-15、TaDUF292-31物种间保守性最高,为禾本科祖先核心保守基因,这类保守基因与水稻DUF266家族[调控纤维素合成(Zhou et al., 2009)]、拟南芥DUF246家族成员[参与果胶合成(Stonebloom et al., 2016)]类似。家族成员在小麦亚基因组呈非对称分布,4B/4D密度最高,3A/3B/3D同源基因保守且表达趋同,4A/4B/4D同源基因分化且组织特异,这种亚基因组分化模式是六倍体小麦兼顾基础功能与环境适应的典型进化策略(Pont et al., 2019)。
3.4 表达特异性分化明确TaDUF292家族的抗逆与发育功能
组织表达显示家族呈显著特异性:TaDUF292-01、TaDUF292-05、TaDUF292-08在根中高表达,可能参与根系抗逆与养分吸收;TaDUF292-12、TaDUF292-18在穗部特异表达,TaDUF292-21在籽粒中优势表达,提示其可能参与生殖发育调控,类似于水稻OsSGL调控籽粒大小的机制(Cui et al., 2016)。
生物胁迫响应具病原菌特异性:白粉菌侵染诱导家族多成员的中后期表达上调,条形柄锈菌仅触发个别成员早期瞬时响应,说明家族成员在小麦免疫中存在阶段与病原菌特异分工。qRT-PCR验证显示:Group A的TaDUF292-21特异响应盐、高温单胁迫;Group B的TaDUF292-08受干旱、高温抑制;Group C的TaDUF292-29在所有单/复合胁迫下均有不同程度的上调表达,尤其是对高温干旱复合逆境具有更强的响应敏感性,推测该基因参与小麦对多种非生物胁迫的应答过程,并可能在高温干旱复合逆境中发挥重要作用。不同亚族的代表性基因对非生物胁迫的响应模式存在明显分化,这比棉花GhDUF4228家族成员的单胁迫响应更复杂(Lv et al., 2022),这一特征不仅体现了TaDUF292家族在小麦适应不同单/复合非生物胁迫过程中的功能多样性,也为后续解析该家族的抗逆功能及分子调控机制提供了直接的实验依据。
3.5 结论和展望
本研究首次系统解析普通小麦TaDUF292基因家族,明确其分子特征、进化规律、调控网络与表达模式,证实该家族通过结构保守与分化、多层级调控、亚基因组功能特化,广泛参与小麦生长发育及干旱、盐、高温、病原菌等胁迫响应。本研究填补了小麦DUF292家族研究空白,为小麦抗逆分子育种提供关键候选基因与理论支撑。未来工作应结合功能验证,推动这些发现向田间应用转化。