摘要
为明确猕猴桃属植物叶绿体基因组特征与系统发育关系,该文以贵州地区葛枣、革叶、京梨等9种猕猴桃为研究对象,基于二代测序数据开展叶绿体基因组组装、注释和比较基因组学分析,系统解析了其基因组特征与系统发育关系。结果表明:(1)9种猕猴桃属植物的叶绿体基因组均为双链环状分子,呈典型的四分体环状结构,序列全长为155 660~156 770 bp,总GC含量为37.21%~37.33%,基因组大小相似度较高。(2)除黄毛与条叶猕猴桃仅注释到129个基因以外,其他猕猴桃均注释得到130个基因,包括83个蛋白质编码基因、39个tRNA基因与8个rRNA基因。(3)密码子使用偏好性相近,第三位碱基以A/U结尾为主;共鉴定出491个SSR位点,涵盖单核苷酸至六核苷酸6种重复类型。(4)比较基因组分析显示,大单拷贝(LSC)与小单拷贝(SSC)区序列变异高于反向重复(IR)区,非编码区变异较编码区更显著,共识别出9个突变基因片段,包括𝑟𝑝𝑠16-𝑡𝑟𝑛Q-UUG、𝑛𝑑ℎC-𝑡𝑟𝑛V-UAC和𝑟𝑏𝑐L-𝑎𝑐𝑐D等基因间隔区与基因区段。(5)系统发育树分为4支,葛枣猕猴桃遗传距离较远,中华与美味猕猴桃聚为一支,京梨、革叶、条叶和黄毛猕猴桃聚集为一支,阔叶与毛花猕猴桃亲缘关系最近。该研究为贵州省猕猴桃种质资源的鉴定与保护提供了叶绿体基因组层面的重要依据,也为该属植物的分类、系统进化及分子鉴定研究积累了关键数据基础与理论基础。
Abstract
To elucidate the chloroplast genomic characteristics and phylogenetic relationships within the genus Actinidia, nine species distributed in Guizhou Province, including A. 𝑝olygama, A. rubricaulis var. coriacea, and A. callosa var. henryi, were selected in this study. Based on next-generation sequencing data, we performed chloroplast genome assembly, annotation, and comparative genomic analysis to systematically investigate their genomic characteristics and phylogenetic relationships. The results were as follows: (1) The chloroplast genomes of all nine Actinidia species were double-stranded circular molecules with a typical quadripartite structure. Their full lengths ranged from 155 660 to 156 770 bp, and the overall GC content varied from 37.21% to 37.33%, indicating high similarity in genome size. (2) A total of 130 genes were annotated in most species, including 83 protein-coding genes, 39 tRNA genes, and 8 rRNA genes, except that 129 genes were annotated in A. fulvicoma and A. fortunatii. (3) Codon usage bias was similar among species, with a preference for A/U at the third codon position. A total of 491 simple sequence repeat (SSR) loci were identified, encompassing six repeat types ranging from mononucleotide to hexanucleotide. (4) Comparative genomic analysis revealed that sequence variation was higher in the large single copy (LSC) and small single copy (SSC) regions than in the inverted repeat (IR) region, and that non-coding regions exhibited more pronounced variation than coding regions. Nine divergent gene fragments were identified, including intergenic spacers such as 𝑟𝑝𝑠16-𝑡𝑟𝑛Q-UUG, 𝑛𝑑ℎC-𝑡𝑟𝑛V-UAC, and the rbcL-𝑎𝑐𝑐D region. (5) Phylogenetic analysis resolved the nine species into four clades: A. polygama was phylogenetically distant from the others; A. chinensis and A. chinensis var. deliciosa clustered together; A. callosa var. henryi, A. rubricaulis var. coriacea, A. fortunatii, and A. fulvicoma formed a distinct clade; and A. latifolia showed the closest relationship with A. eriantha. This study provides an important basis at the chloroplast genome level for the identification and conservation of kiwifruit germplasm resources in Guizhou Province, and also accumulates key data and a theoretical basis for the taxonomy, phylogeny and molecular identification of this genus.
Keywords
猕猴桃为猕猴桃科(Actinidiaceae)猕猴桃属(Actinidia Lindl.)多年生藤本植物,驯化历史仅百余年。全球的猕猴桃属植物约有54个种和21个变种(Li et al., 2007),自然分布在以中国为中心,南起赤道、北至寒温带(北纬50°)的亚洲东部地区(黄宏文等,2013)。贵州省地处中国西南,其复杂的地貌与多样的小气候为野生猕猴桃提供了丰富的生境。野生猕猴桃常见于山坡杂木林、溪边灌丛及林缘路旁等地,这也使贵州成为我国野生猕猴桃资源的重要分布区之一(刘磊等,2015)。我国丰富的猕猴桃资源为系统开展进化研究与遗传育种工作提供了宝贵的材料(Liu et al., 2010),这使当下仅以中华猕猴桃(A. chinensis)、美味猕猴桃(A. chinensis var. deliciosa)等少数种类为主要的商业化栽培格局更加丰富(Mai et al., 2022)。然而,该属植物种间杂交频繁且广泛(Li et al., 2014),染色体倍性变异复杂(Shi et al., 2010),仅凭外观形态和生理特征难以准确鉴定,给分类学研究带来了较大困难。因此,有必要提供更多的基因组资源,以探索猕猴桃属内的系统发育关系(Zhang et al., 2025)。在此背景下,利用贵州省内丰富的野生资源开展系统比较与进化分析,对厘清猕猴桃属植物的分类关系、促进省内种质资源的科学保护与可持续利用具有重要意义。
叶绿体是植物光合作用的关键细胞器,不仅参与淀粉、脂肪酸、色素和氨基酸的生物合成,也是代谢与能量转换的重要场所。其基因组通常为环状双链DNA结构,具有相对保守的组成、单亲遗传模式以及丰富的变异位点,因此被广泛用于植物系统发育重建、物种鉴定和遗传多样性分析等研究中(Nock et al., 2011; Shi et al., 2023)。近年来,随着测序技术的发展,猕猴桃叶绿体基因组研究取得了一系列重要进展。目前,已陆续报道了中华(Yao et al., 2015b)、山梨(Kim et al., 2018)、长叶(Qi et al., 2021)、阔叶(Yang et al., 2021)、毛花(Yao et al., 2022)、狗枣(Qiu et al., 2021)等猕猴桃物种的完整叶绿体基因组,为揭示该属植物的遗传背景与进化关系提供了重要依据。基于叶绿体基因组的系统发育分析表明,美味猕猴桃、中华猕猴桃、黑蕊猕猴桃和硬齿猕猴桃亲缘关系较近(Liu et al., 2022)。然而,目前针对贵州地区野生猕猴桃资源的叶绿体基因组研究仍相对有限,缺乏对多种野生资源的系统性比较与进化分析且猕猴桃属内某些近缘种的分类地位长期存在争议(黄宏文等,2013),其亲缘关系尚未经叶绿体基因组数据得以澄清。贵州作为多种野生猕猴桃的分布中心,这些物种的遗传背景和进化历史仍不清楚。
基于上述背景,本研究以贵州地区的9种猕猴桃属植物为材料,采用高通量测序与生物信息学分析方法,通过对叶绿体基因组进行组装、注释、比较与系统发育重建,探究以下问题:(1)明确贵州9种猕猴桃的叶绿体基因组结构特征;(2)分析不同物种间叶绿体基因组的特征差异,发现可用于猕猴桃属物种鉴定的潜在分子标记;(3)基于叶绿体基因组序列构建系统发育树,以阐明该地区猕猴桃属植物的亲缘关系。
1 材料与方法
1.1 材料
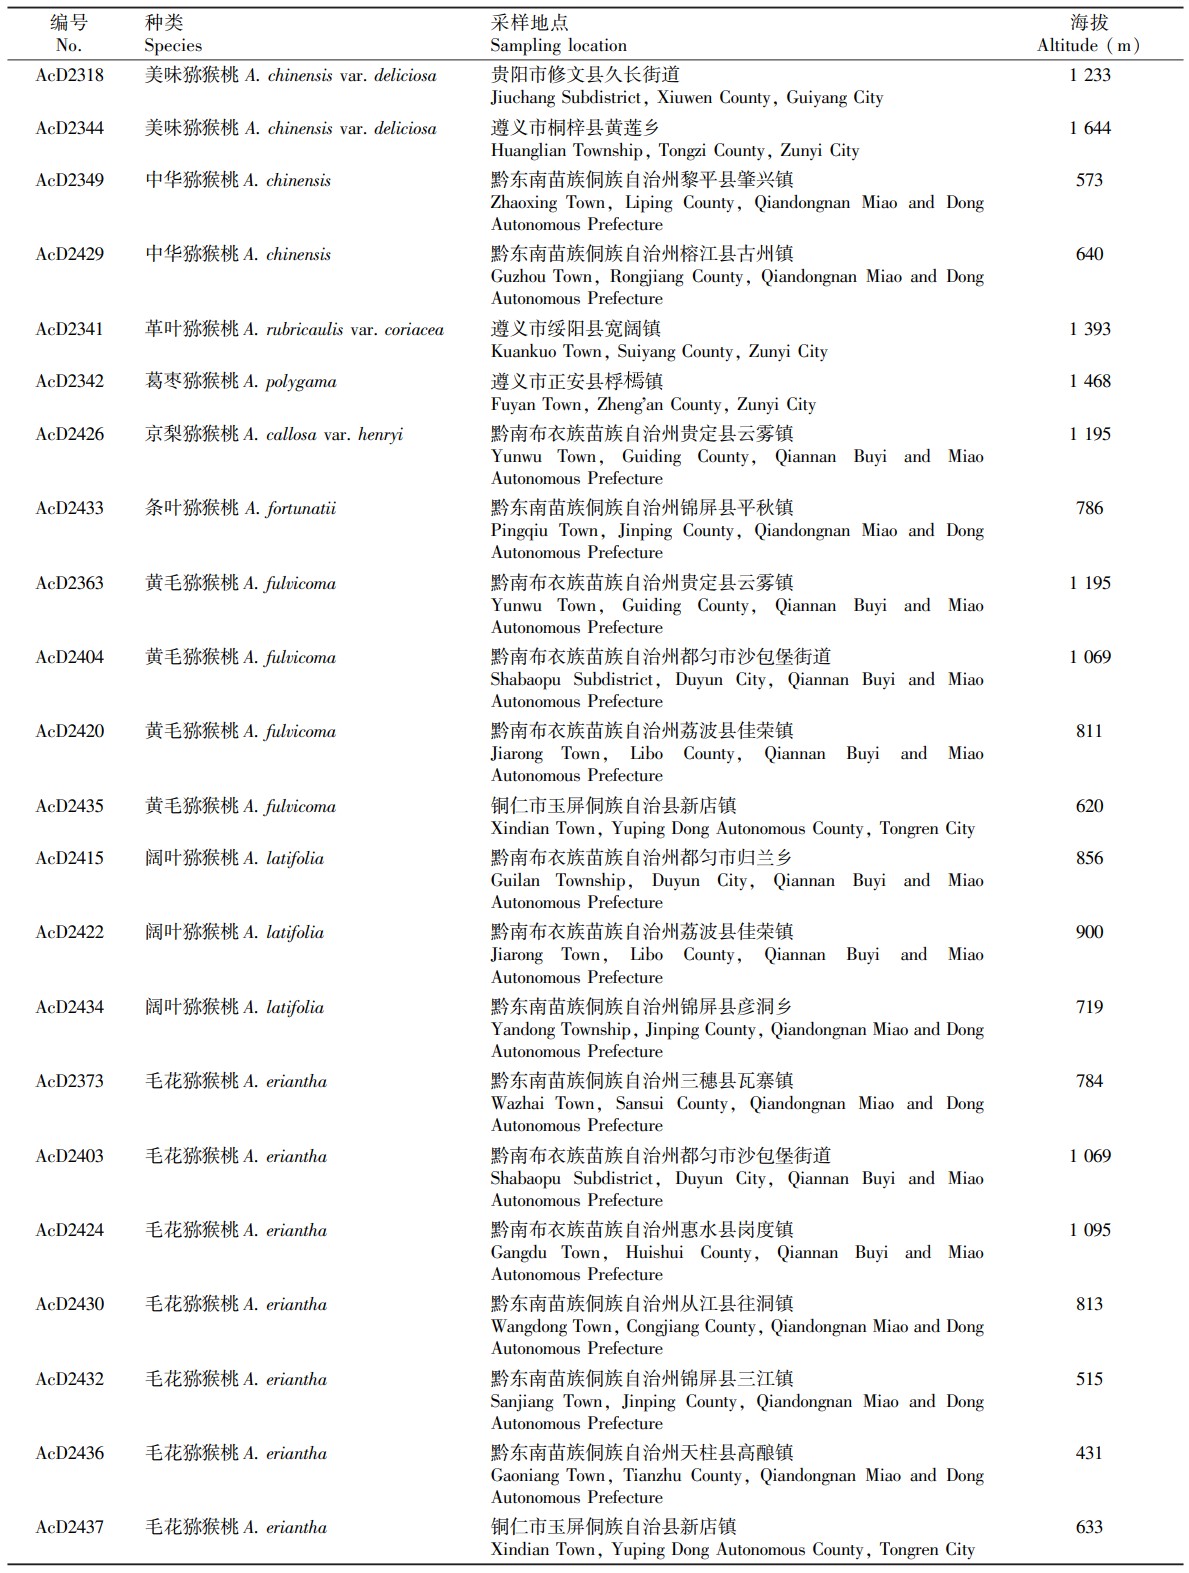
美味、中华和革叶等9种猕猴桃的幼嫩叶片均为贵州省内野外采集或基地保存的猕猴桃野生资源,共22个样本,所有样本的物种鉴定信息及详细采集地点见表1。叶片经纯水清洗擦干后,放置于冻存管内进行液氮速冻,后置于-80 ℃超低温冰箱中保存。
1.2 基因组DNA提取与测序
采用改良CTAB法(陈昆松等,2004)提取猕猴桃叶片全基因组DNA,按照Illumina标准流程制备测序文库,文库质检合格后利用Illumina高通量测序平台进行双末端测序;利用Fastp软件对原始测序数据进行质控过滤,获得高质量测序数据(Li et al., 2009)。
1.3 序列组装和注释
利用GetOrganelle软件进行叶绿体基因组初步组装。以中华猕猴桃(NC_026690.1)的叶绿体基因组序列作为参考,通过CPStools工具对所得的数据进行校正(Huang et al., 2024),采用CPGAVAS2注释叶绿体基因组。使用在线细胞器基因组绘图软件(https://irscope.shinyapps.io/Chloroplot/)绘制9种猕猴桃属植物叶绿体基因组物理图谱。
1.4 简单重复序列分析
利用MISA在线软件(https://webblast.ipk-gatersleben.de/misa/)对叶绿体基因组进行简单重复系列(smiple sequence repeat,SSR)位点分析,设置单核苷酸至六核苷酸的最少重复性数目分别为10、5、4、3、3、3,两个SSR之间的距离≥100 bp。
1.5 密码子偏好性分析
提取叶绿体基因组的编码序列(coding sequence,CDS),去除重复序列、小于300 bp的序列和非ATG起始的序列进行密码子偏好性分析,最终保留50条CDS进行后续分析。参考CodonW软件的分析流程,使用自定义Python脚本计算相对同义密码子使用度(relative synonymous codon usage,RSCU)。
1.6 叶绿体基因组比较分析
使用在线网站IRscope(https://irscope.shinyapps.io/irapp/)绘制9种猕猴桃属植物叶绿体基因组中大单拷贝(large single copy,LSC)区、小单拷贝(small single copy,SSC)区和反向重复(inverted repeat,IR)区的区域边界进行差异分析(Amiryousefi et al., 2018)。利用mVISTA程序(https://genome.lbl.gov/vista/index.shtml)将这些物种的叶绿体基因组与中华猕猴桃(GenBank ID:NC_026690.1)的叶绿体基因组序列进行比对(Frazer et al., 2004)。用MAFFTv7对叶绿体基因组序列进行比对,并利用DnaSP(version 6.12.03)进行滑动窗口分析检测核苷酸多态性。
1.7 系统发育分析
从NCBI上下载已报道的中华(NC_026690.1)、美味(NC_026691.1)、革叶(OM949903.1)、葛枣(NC_031186.1)、京梨(OM949886.1)、条叶(OM949932.1)、阔叶(OM949887.1)和毛花(OM949893.1)猕猴桃,以及外类群绵毛藤山柳(Clematovlethra acandens subsp. hemsleyi KX345299.1)的叶绿体基因组序列与9种猕猴桃属植物(共22个样本)构建系统发育树。用MAFFT(https://mafft.cbrc.jp/alignment/server/)进行多重序列比较(Oliveira et al., 2022),使用IQtree2建树,使用在线工具iTOL(https://itol.embl.de)美化系统发育树。
2 结果与分析
2.1 叶绿体基因组结构与特征
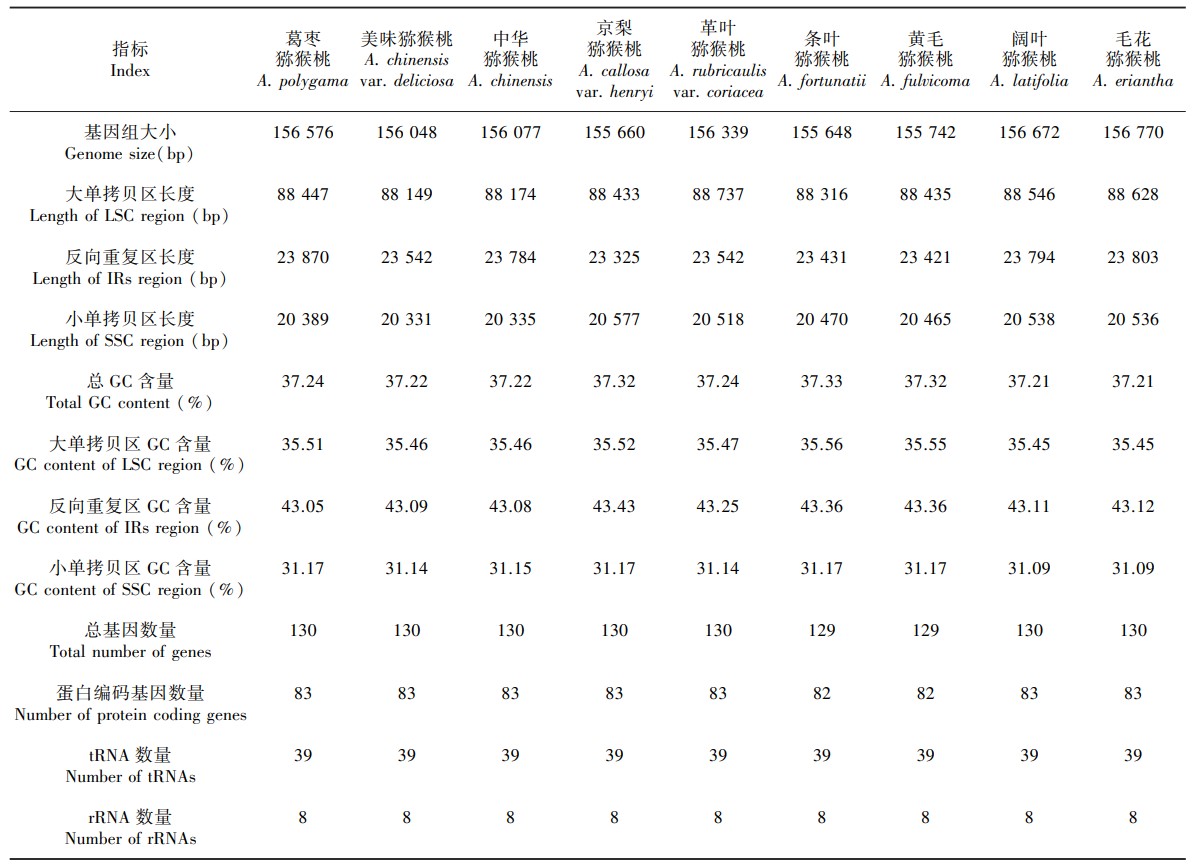
葛枣、中华、美味、革叶、京梨、黄毛、条叶、阔叶和毛花猕猴桃叶绿体基因组长度为155 660~156 770 bp,其中毛花基因组最大,京梨最小。各基因组均呈典型的四分体环状结构,由1个大单拷贝(LSC)区、2个反向重复(IR)区与1个小单拷贝(SSC)区组成,其长度范围分别为88 737~88 149 bp、23 870~23 325 bp和20 331~20 577 bp(图1)。
表
1
猕猴桃属植物样品采集信息
Table
1
Sampling information of Actinidia species
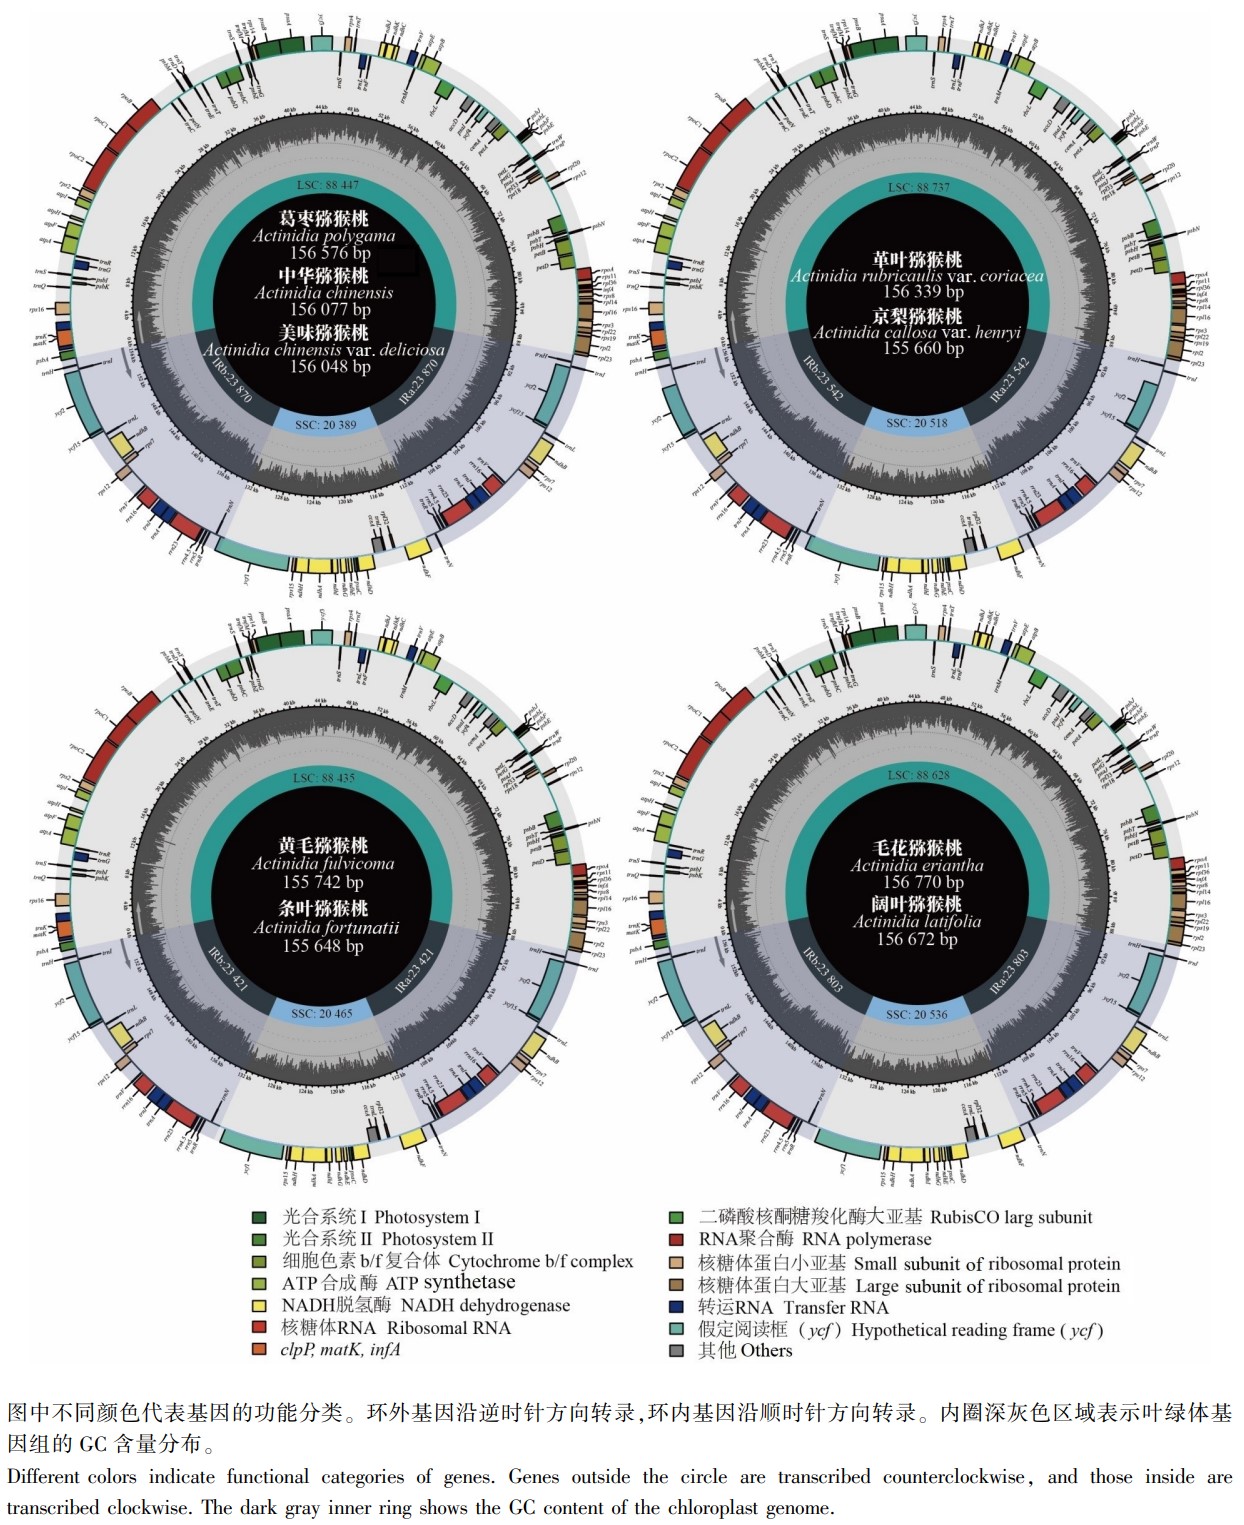
图
1
9种猕猴桃属植物的叶绿体基因组图谱
Fig.
1
Chloroplast genome maps of nine Actinidia species
这9种猕猴桃叶绿体基因组的总体GC含量为37.21%~37.33%,其中条叶、京梨与黄毛猕猴桃的GC含量相对较高;LSC区GC含量为35.45%~35.56%,IR区为43.05%~43.43%,SSC区为31.09%~31.17%(表2)。整体而言,这些物种间叶绿体基因组长度差异较小,结构相对保守。
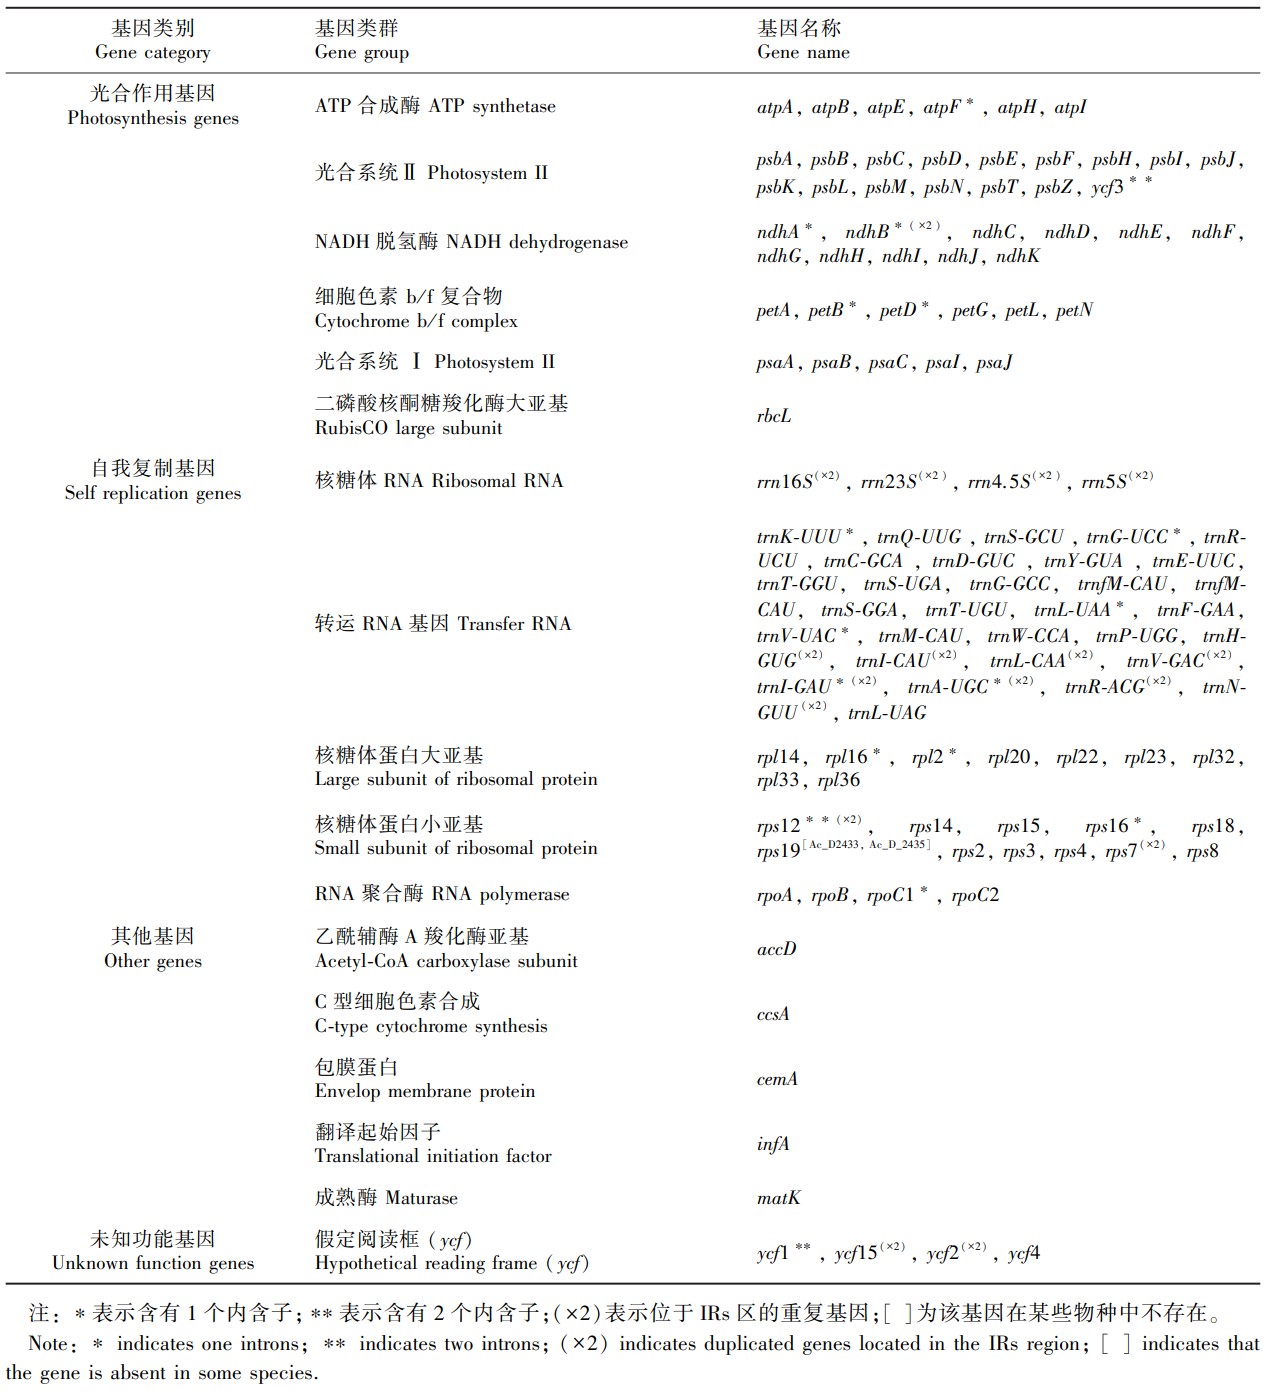
基因注释结果(表2)显示,葛枣、中华、美味、革叶、京梨、阔叶和毛花猕猴桃均注释到130个基因,其中蛋白质编码基因83个、tRNA基因39个、rRNA基因8个,而黄毛和条叶猕猴桃因缺失rps19基因而仅注释到129个基因。在IR区,ndhB、rps12、rps7、ycf15、ycf2 5个蛋白质编码基因,8个tRNA基因以及4个rRNA基因均出现1次重复。此外,atpF、ndhA、ndhB等15个基因各含有1个内含子,rps12、ycf3和ycf1则各含有2个内含子(表3)。
2.2 叶绿体基因组密码子偏好性分析
9种猕猴桃属植物的叶绿体基因组共包含61个密码子(终止密码子除外),编码20种氨基酸(图2)。其中,亮氨酸(Leu)的密码子数量最多(CUA、CUC、CUG、CUU、UUA、UUG,共6种),而甲硫氨酸(Met)与色氨酸(Trp)均仅对应1个密码子。除Met(AUG)和Trp(UGG)以外,其余氨基酸的密码子均表现出一定的使用偏好。在29个相对同义密码子使用度大于1的高频密码子中,仅1个以G/C结尾。整体上,不同猕猴桃物种间的密码子使用偏好高度一致,均明显倾向于以A/U结尾的密码子。
2.3 简单重复序列(SSR)分析
这9种猕猴桃属植物的叶绿体基因组中共鉴定出491个SSR位点,按重复单元长度可分为单核苷酸(315个,占64.15%)、二核苷酸(43个,占8.76%)、三核苷酸(38个,占7.74%)、四核苷酸(66个,占13.44%)、五核苷酸(27个,占5.50%)和六核苷酸(2个,占0.41%)。其中,单核苷酸重复所占比例最高,其次为四核苷酸重复(图3:A)。各物种的SSR数量分别为葛枣猕猴桃53个、中华猕猴桃54个、美味猕猴桃51个、革叶猕猴桃54个、京梨猕猴桃51个、黄毛猕猴桃50个、条叶猕猴桃57个、阔叶猕猴桃59个和毛花猕猴桃62个。在检测到的SSR类型中,A/T 的数量最多(301个),AT/AT(43个)、AAT/ATT(35个)、AAAG/CTTT(30个)和AAAT/ATTT(27个)的数量在20个以上,为优势重复单元,同时表明猕猴桃属植物叶绿体SSR具有明显的A/T碱基偏好性。此外,不同物种中也存在特有的SSR类型,如AGG/CCT仅出现于中华和美味猕猴桃中,AAG/CTT仅存在于毛花猕猴桃中,AATT/AATT为葛枣猕猴桃特有,而AATAT/ATATT则仅出现于条叶猕猴桃中(图3:B)。
2.4 叶绿体基因组比较分析
以已报道的中华猕猴桃(GenBank ID:NC_026690.1)注释序列作为参考序列,运用在线工具mVISTA分析得到9种猕猴桃属植物的叶绿体基因组比对结果(图4)。结果显示,相较于IR区,9种猕猴桃属植物在LSC区和SSC区表现出更高的序列差异性,非编码区的差异较编码区更显著,如rps16-trnQ-UUG、ndhC-trnV-UAC、rbcL-accD、rps12-psbB、rps7-trnV-GAC。同时,在差异较大的区域内,每个物种具有不同特征。总体而言,美味猕猴桃、葛枣猕猴桃、毛花猕猴桃、中华猕猴桃和阔叶猕猴桃的序列同源性更高。
对9种猕猴桃属植物叶绿体基因组边界进行的比较分析表明,其边界区域的基因组成相对保守,但基因与边界的距离存在种间差异(图5)。其中,IRa/LSC边界最为保守,所有物种的psbA基因均位于此处且与边界的距离恒为2 bp。rpl23基因位于LSC区内,距离LSC/IRb边界99~111 bp;ndhF基因位于SSC区内,距离IRb/SSC边界21~137 bp。ycf1基因在SSC/IRa边界的分布模式存在种间差异:在中华、京梨、葛枣、革叶和美味猕猴桃中,ycf1编码区跨越该边界,其6 632~6 753 bp位于SSC区,另有291~407 bp延伸至IRa区;而在黄毛、阔叶、条叶和毛花猕猴桃中,ycf1基因完全位于SSC区内,与边界相距368~611 bp。
2.5 叶绿体基因组序列的核苷酸多样性
通过DnaSP计算分析9种猕猴桃属植物叶绿体间的核苷酸多样性值(Pi),得出编码区域的Pi值范围为0~0.051 1(图6),高变异的位点主要集中在LSC区,其次是SSC区。在编码区内,psbB基因的核苷酸多态性指数最高(Pi=0.051 1),其次是psbE-psbF-psbL,这两个区域的核苷酸多样性值显著高于其他区域。此外,还有6个核苷酸多样性较高(Pi>0.013 9)的基因区域,trnL-UAA、trnV-UAC、trnR-UCU、trnF-GAA和psbM位于编码区,rps16-trnQ-UUG位于基因间隔区。这些核苷酸高度变异区可作为猕猴桃属植物的候选DNA条码,有潜力被开发成为物种鉴定的高效特异性分子标记。
表
2
9种猕猴桃属叶绿体基因组特征分析
Table
2
Characteristics analysis of the chloroplast genomes from nine Actinidia species
2.6 叶绿体基因组系统发育分析
为明确贵州猕猴桃属植物间的亲缘关系,本研究基于叶绿体全基因组序列,结合已报道的中华、美味、革叶和葛枣等猕猴桃叶绿体基因组,以绵毛藤山柳为外类群,对9种猕猴桃属植物(共计22个样本)进行了系统发育分析。结果(图7)显示,除外类群以外,22个猕猴桃样本可分为4个主要分支,同一物种的不同个体均聚为单系群,并且与已报道的叶绿体基因组聚在一起。其中,葛枣猕猴桃与其他物种遗传距离较远,形成独立分支;中华与美味猕猴桃聚为一个支系;京梨、革叶、条叶和黄毛猕猴桃共同构成一个分支;阔叶与毛花猕猴桃亲缘关系最近,聚为一支。
3 讨论与结论
本研究对贵州省9种猕猴桃属植物叶绿体基因组进行了测序和全序列比对分析。葛枣、中华、美味、革叶、京梨、黄毛、条叶、阔叶和毛花猕猴桃的叶绿体基因组大小范围为155 660~156 770 bp,叶绿体基因组的长度因物种而异,已有研究证实其主要受IR区的扩张/收缩、单拷贝区长度的变异、基因间隔区及重复序列的扩增等因素影响(Zheng et al., 2017;Turudic′ et al., 2023)。此外,基因丢失、假基因化及寄生生活型也可导致基因组显著缩减(Turudic′ et al., 2023)。尽管如此,这些物种在基因组成、基因排列顺序及GC含量等方面表现出高度相似性,与已报道的中华(Yao et al., 2015b)、山梨(Kim et al., 2018)、狗枣(Qiu et al., 2021)、阔叶(Yang et al., 2021)和毛花猕猴桃(Tang et al., 2019a)也相似,反映了猕猴桃属叶绿体基因组在进化过程中的整体保守性。本研究中,9种猕猴桃均未检测到clpP基因。clpP基因的缺失在猕猴桃属中可能是一个普遍事件,近期对猕猴桃属多个种的比较基因组研究也证实了这一点(Wang et al., 2016)。该基因编码蛋白酶水解亚基,其缺失推测是由于功能已转移至核基因组,这一现象在被子植物叶绿体进化中并不罕见,可能与基因的亚细胞定位重排有关。相比之下,infA基因在本研究所有物种中均保留,但Lin等(2025)报道该基因在安息香猕猴桃和浙江猕猴桃中发生缺失。这种谱系特异性的基因丢失现象表明,叶绿体基因组的演化并非完全保守,不同支系可能经历不同的选择压力。猕猴桃属不同物种间的密码子使用的偏好性高度一致,均倾向于使用以A/U结尾的密码子,这一趋势在其他被子植物中也很明显(Zhou et al., 2022)。
表
3
9种猕猴桃属叶绿体基因组基因类型
Table
3
Gene types in the chloroplast genome of nine Actinidia species
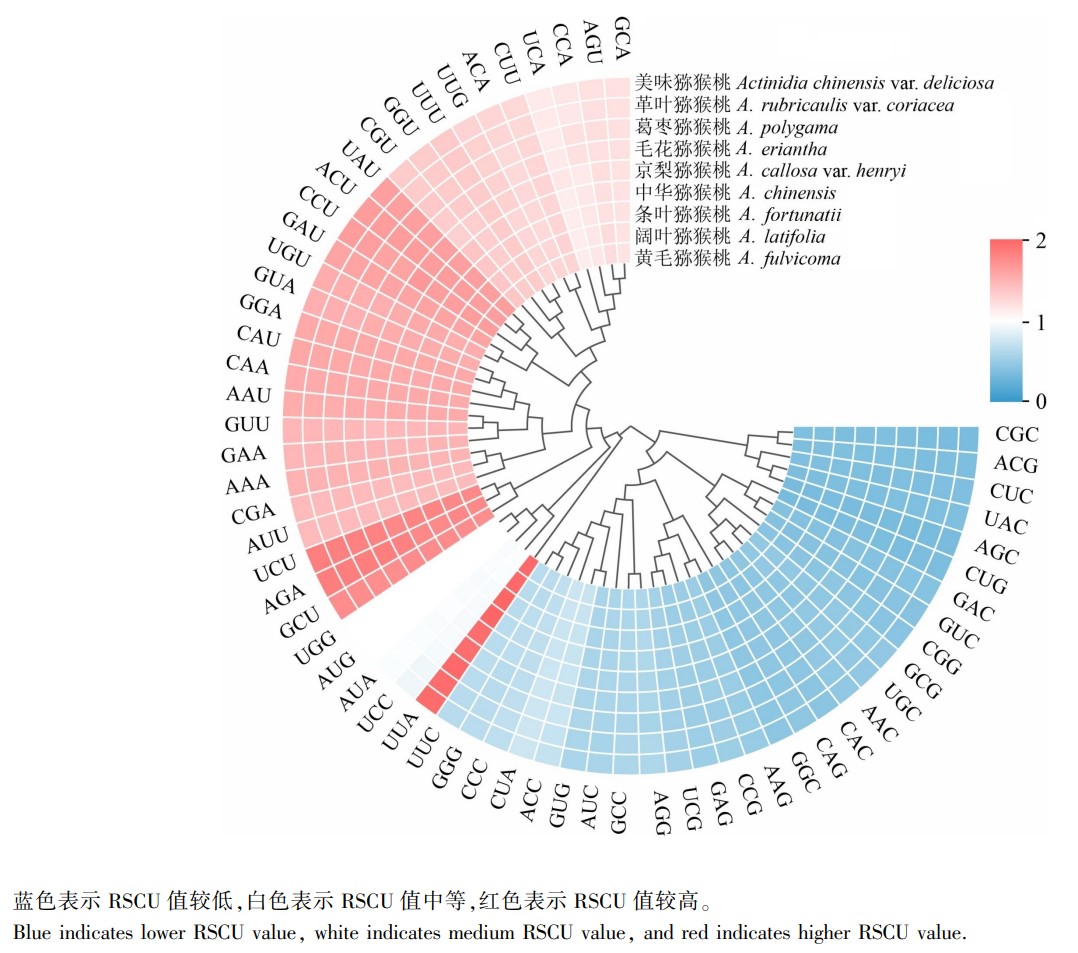
图
2
9种猕猴桃属植物共有蛋白编码基因密码子分布热图
Fig.
2
Heatmap plot of codon distribution of all shared protein-codinggenes in the chloroplast genomes of nine Actinidia species
简单重复序列(SSR)在叶绿体基因组中广泛分布,因其在DNA复制中易发生滑动错配而积累多态性,因此常被用作系统进化与群体遗传研究中的重要分子标记(Jansen et al., 2011;Yang et al., 2012;Li et al., 2020)。在本研究涉及的物种中,中华和美味猕猴桃分别检测到54个和51个SSR位点,均包含从单核苷酸到六核苷酸的6种重复类型;而革叶、京梨、黄毛、条叶、阔叶和毛花猕猴桃中虽分别检测到54个、51个、50个、57个、59个和62个SSR,但这些物种均未发现六核苷酸重复类型。绝大多数SSR富含A/T碱基,与多数被子植物叶绿体基因组中以PolyA/T为主的重复模式相符(Nie et al., 2012),富含AT的基序为DNA复制滑动提供了结构基础(Wolfson et al., 1991),其在叶绿体基因组中的广泛存在,可能继承自其原核内共生祖先的保守序列特征(Brázda et al., 2018)。此外,部分SSR类型表现出物种特异性。例如,AGG/CCT仅存在于中华和美味猕猴桃中,AAG/CTT为毛花猕猴桃特有,AATT/AATT仅出现于葛枣猕猴桃,而AATAT/ATATT则特异分布于条叶猕猴桃,这些特异SSR位点为开发可用于物种鉴别的猕猴桃属专用分子标记提供潜在的分子基础。
植物叶绿体基因组序列中的高变区可为物种鉴定提供充分的遗传信息(Li et al., 2018),是潜在的理想系统发育标记。以往研究多利用matK、psbC-trnS、rbcL和trnL-trnF等分子片段探讨猕猴桃属的系统发育关系(Chat et al., 2004)。基于 mVISTA 对贵州省 9 种猕猴桃属植物完整叶绿体基因组的比较分析,本研究共识别出9个突变基因片段(rps16-trnQ-UUG、ndhC-trnV-UAC、rbcL-accD、rps12-psbB、trnI-CAU-ycf2、trnN-GUU-ndhF、rps7-trnV-GAC、ycf1-trnN-GUU和trnH-GUG-psbA),其中,rps16-trnQ-UUG和ndhC-trnV-UAC区域此前已在猕猴桃系统发育研究中得到应用(Tang et al., 2019b)。此外,本研究亦发现,ycf2和accD基因存在显著序列变异,与Lin等(2025)的报道一致。核苷酸多样性分析进一步表明,部分区域具有较高的Pi值,提示其作为系统发育标记的潜力。叶绿体基因组的IR区通常最为保守,其边界的收缩或扩张可导致邻近基因拷贝数变化或假基因形成(胡康等,2024)。本研究中,9个猕猴桃物种的IR区长度相近,表明IR/LSC与IR/SSC边界在属内可能较为保守。值得注意的是,中华、京梨、葛枣、革叶和美味猕猴桃的ycf1基因编码区跨越边界延伸至IRa区,该现象亦见于大百合属、金缕梅科及其他多种植物(Lu et al., 2017;Wang et al., 2022)。综上,本研究在猕猴桃叶绿体基因组中发掘出多个高变异位点,进一步扩充了该属系统发育研究的标记资源。未来仍需结合更大规模样本,验证这些区域在物种鉴别与系统发育重建中的实际应用价值。
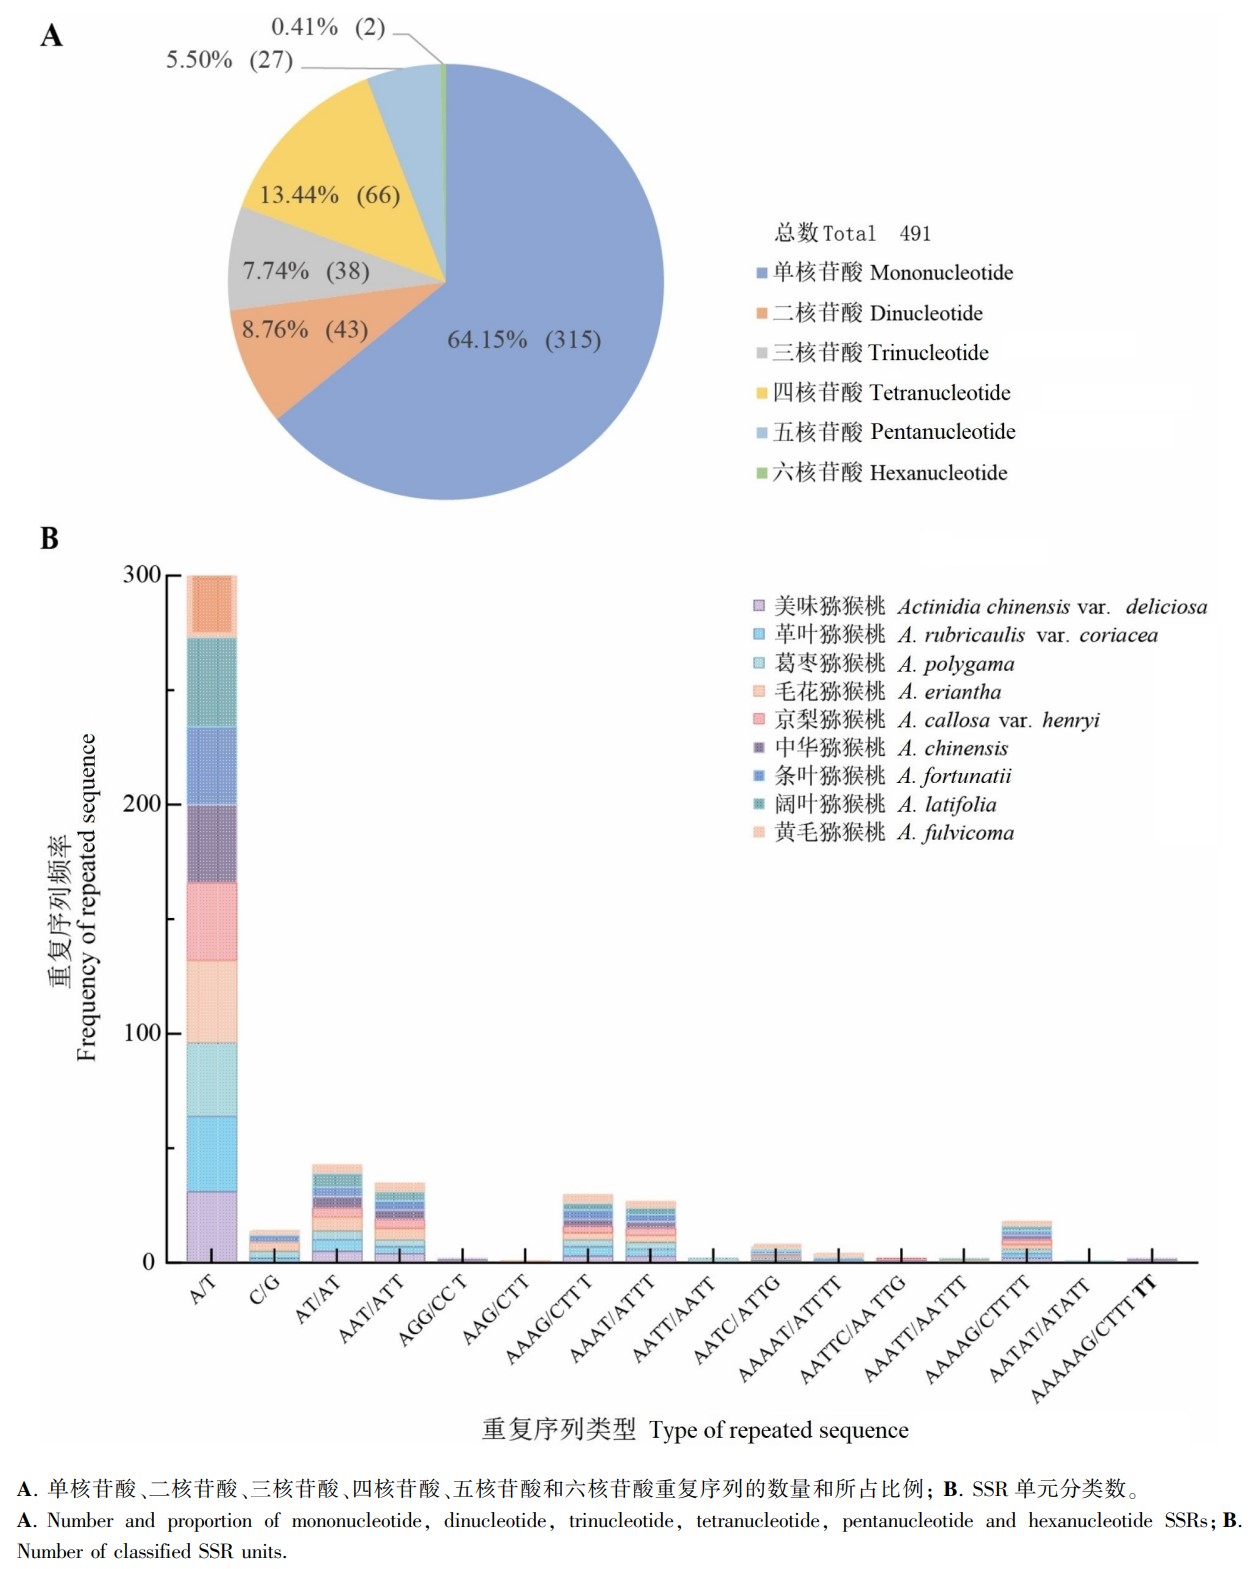
图
3
9种猕猴桃属植物叶绿体基因组的简单重复序列分析
Fig.
3
Analysis of SSRs in the chloroplast genomes of nine Actinidia species
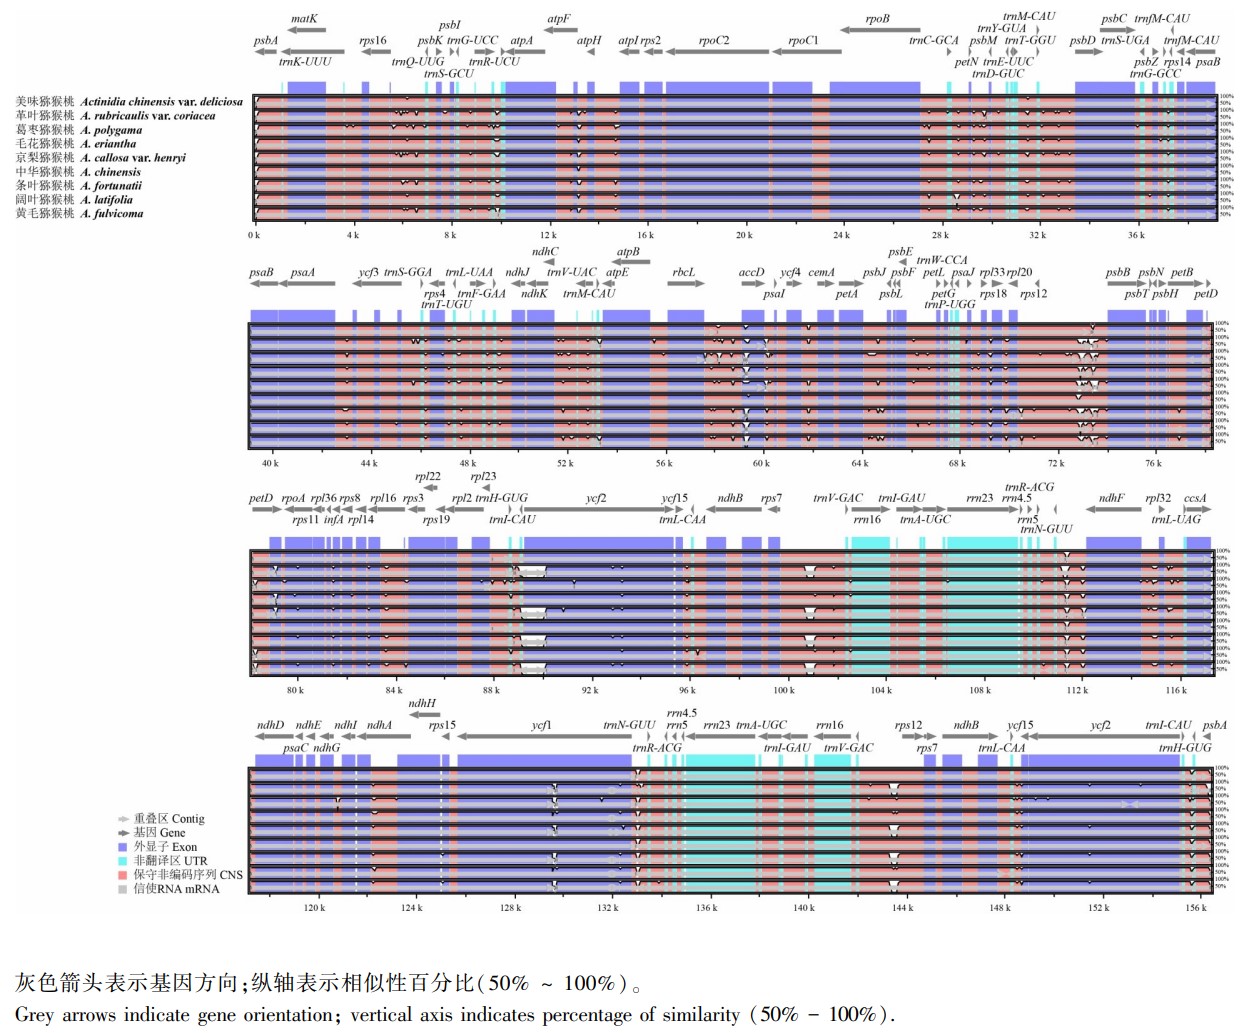
图
4
9种猕猴桃属植物叶绿体基因组的比较分析
Fig.
4
Comparative analysis of the chloroplast genomes of nine Actinidia species
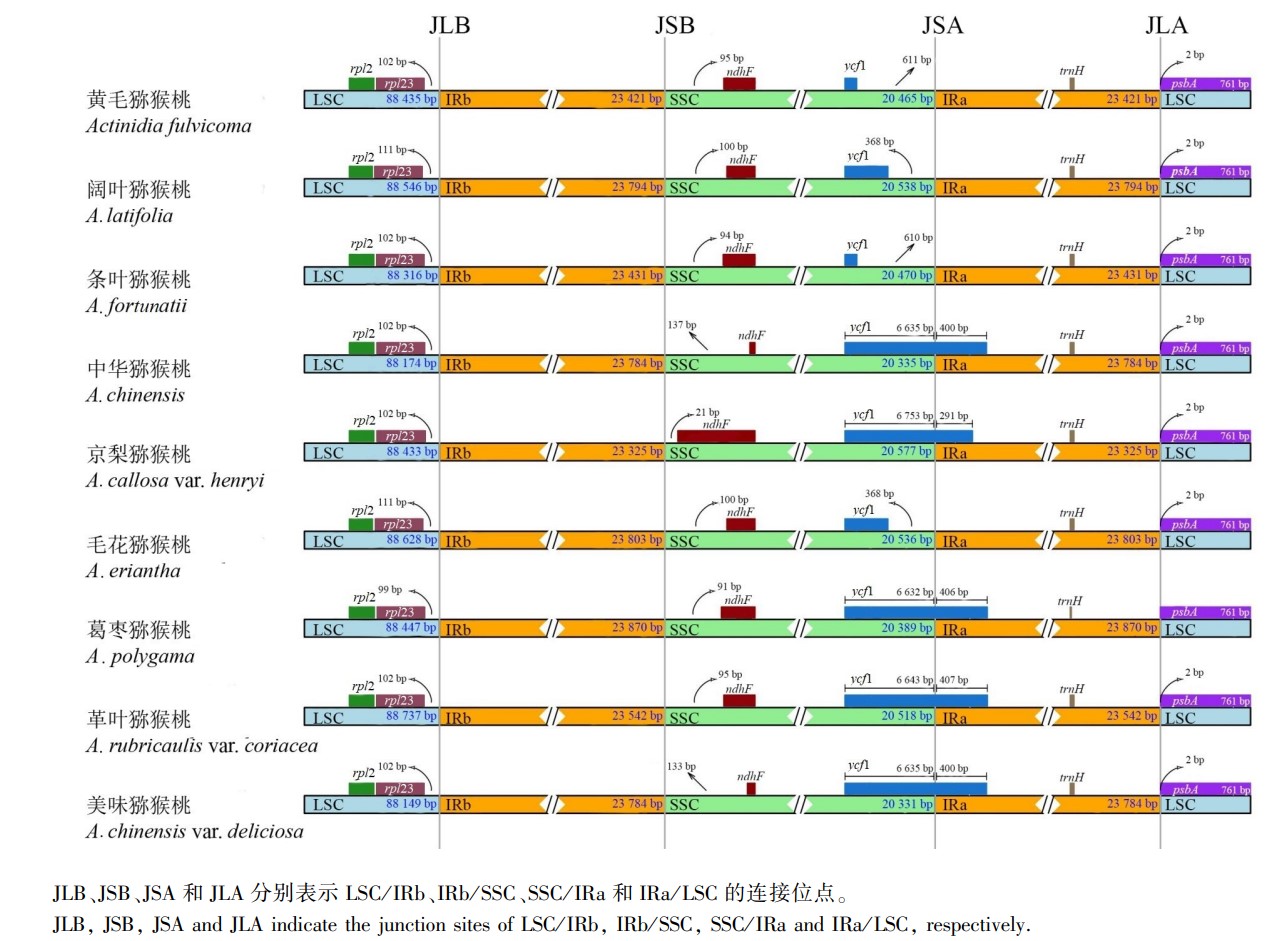
图
5
9种猕猴桃属植物叶绿体基因组IR/SC边界分析
Fig.
5
Comparison of the borders of IR/SC in the chloroplast genomes of nine Actinidia species
猕猴桃属植物因普遍存在种间杂交与基因渐渗,其分类体系长期面临较大挑战(Yao et al., 2015a)。本研究旨在利用叶绿体基因组探讨猕猴桃属内的系统发育关系,结果显示9种猕猴桃属植物可划分为4个主要分支。同一物种的不同个体在系统发育树上均聚于同一位置,支持此前物种划分的可靠性。其中,葛枣猕猴桃与其他物种遗传距离较远,中华与美味猕猴桃聚为一支,京梨、革叶、条叶和黄毛猕猴桃共同聚为一个分支,而阔叶与毛花猕猴桃则表现出更近的亲缘关系,这与前人的报道基本一致(He et al., 2025),同时也与基于多个分子标记(Chat et al., 2004;Li et al., 2009;Tang et al., 2019b)构建的系统发育关系基本一致。前人研究表明,猕猴桃叶绿体DNA主要呈现父系遗传模式,约占种间与种内杂交的75%(Li et al., 2013),这为系统发育重建提供了丰富的信息位点(Cipriani et al., 1995)。本研究中,阔叶猕猴桃与毛花猕猴桃在叶绿体基因组系统发育树上聚为一支,表明二者具有高度相似的叶绿体单倍型。然而,前人基于形态性状和核基因标记的研究却显示二者差异显著(黄宏文等,2013)。这种叶绿体基因组与核基因组的系统发育冲突,在植物中往往是杂交起源或谱系分选不完全的重要指征。考虑到猕猴桃属中叶绿体主要为父系遗传(Li et al., 2013),我们推测:阔叶猕猴桃可能作为父本参与了毛花猕猴桃的起源,导致后者继承了前者的叶绿体基因组,而核基因组则保留了更多分化特征。这一假说有待后续基于核基因组多位点标记的群体遗传学分析进一步验证。此外,黄毛和毛花猕猴桃的部分样本在系统发育树上并未完全聚集成单一分支,表明种内存在一定的遗传分化。这种分化可能与样本采集地的地理隔离或生境异质性有关,提示在今后的系统发育研究中,需进一步结合地理分布与群体遗传学方法进行综合分析,以更全面地阐释猕猴桃属植物的物种形成与扩散历史。
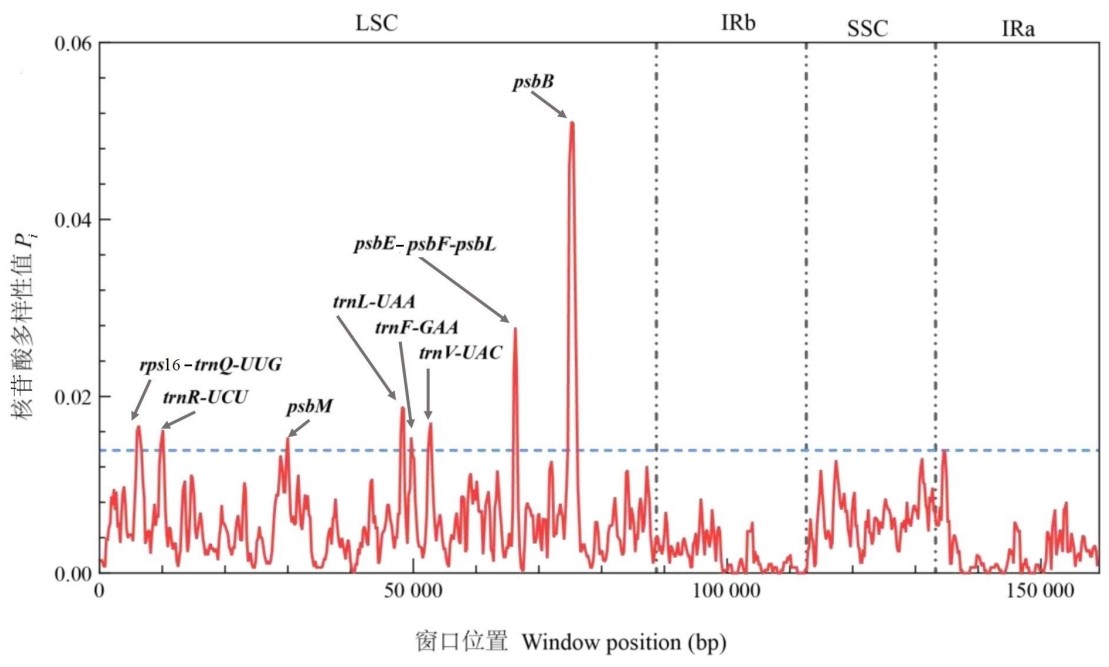
图
6
猕猴桃属植物叶绿体基因组核苷酸变异的滑动窗口分析
Fig.
6
Sliding window analysis of nucleotide variability among the chloroplast genomes of Actinidia species
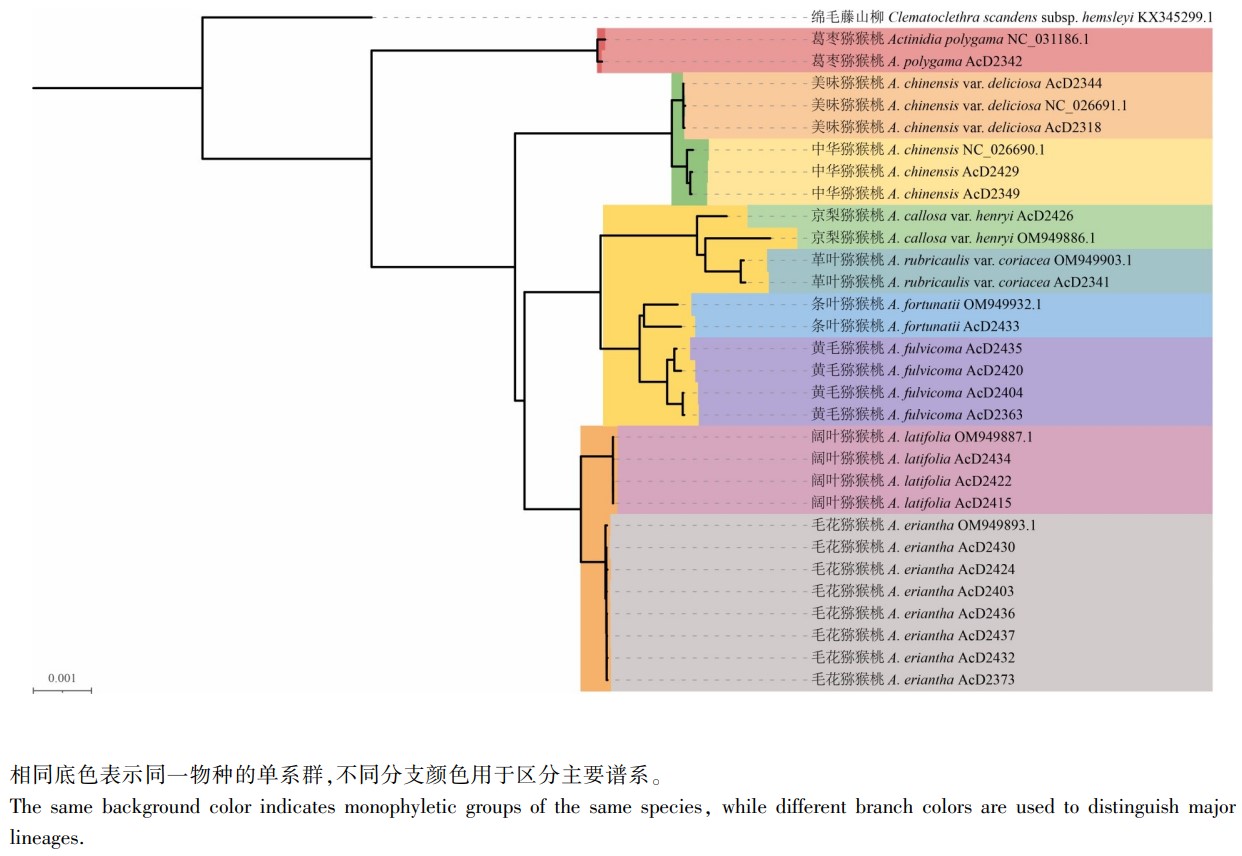
图
7
基于叶绿体基因组构建猕猴桃属22种植物的系统进化树
Fig.
7
Phylogenetic tree of 22 Actinidia species based on chloroplast genomes