摘要
3-羟基-3-甲基戊二酰辅酶A还原酶(HMGR)是萜类化合物生物合成途径中的关键酶,在植物的生长发育和逆境胁迫响应中发挥着重要作用。为了探究AvHMGR基因家族的特性及其在淹水胁迫中的功能,该研究采用生物信息学方法对对萼猕猴桃HMGR基因家族进行了全基因组鉴定,并对其染色体定位、基因结构、蛋白保守结构域、启动子顺式作用元件等进行了系统分析。结果表明:(1)共鉴定到12个AvHMGR家族成员,分布于12条染色体上,编码514~597个氨基酸,均定位于内质网。系统进化树将AvHMGR成员分为3个亚家族。(2)启动子分析发现其富含激素与逆境响应顺式作用元件。(3)AvHMGR6b和AvHMGR9𝑎/𝑏在不同组织和果实不同发育时期的表达水平较高;AvHMGR5𝑎/b在盐胁迫12 h时表达升高,参与对短期盐胁迫的响应。(4)淹水胁迫下,对萼猕猴桃叶和根中多个AvHMGR基因表达显著上调,包括AvHMGR5𝑏、AvHMGR6𝑎/𝑏、AvHMGR9𝑎/𝑏和AvHMGR21𝑎,表明AvHMGR在淹水胁迫的响应中发挥着重要作用。该研究结果为进一步研究HMGR基因在淹水胁迫下的功能特征及培育耐涝猕猴桃新种质提供了理论依据。
Abstract
3-Hydroxy-3-methylglutaryl coenzyme A reductase (HMGR) is a key enzyme in the terpenoid biosynthetic pathway and plays a vital role in plant growth, development, and responses to abiotic stress. To investigate the characteristics of the AvHMGR gene family and its function under waterlogging stress, a genome-wide identification of the AvHMGR gene family in Actinidia valvata was performed using bioinformatics approaches. Comprehensive analyses were conducted on their chromosomal localization, gene structures, conserved protein domains, and cis-acting elements in promoter regions, etc. The results were as follows: (1) A total of 12 AvHMGR family members were identified in the A. valvata genome and were located across 12 different chromosomes. These AvHMGR genes encoded proteins ranging from 514 to 597 amino acids in length, all of which were predicted to be localized in the endoplasmic reticulum. Based on the phylogenetic analysis, AvHMGR members were grouped into three clusters. (2) Promoter analysis revealed abundant hormone-responsive elements and stress-responsive elements within the AvHMGR promoters. (3) Expression profiling showed that AvHMGR6𝑏 and AvHMGR9𝑎/𝑏 exhibiting relatively high expression levels at different tissues and fruit developmental stages; AvHMGR5𝑎/𝑏 were up-regulated after 12 h of salt stress, suggesting their involvement in short-term salt stress response. (4) Under waterlogging stress, multiple AvHMGR genes including AvHMGR5𝑏, AvHMGR6𝑎/𝑏, AvHMGR9𝑎/𝑏, and AvHMGR21𝑎 were significantly up-regulated in both leaves and roots, suggesting that AvHMGRs played a critical role in plant responses to waterlogging stress. The results of this study provide a theoretical foundation for further research on the functional characterization of HMGR in plant responses to waterlogging stress and future breeding effort aimed at enhancing kiwifruit tolerance to waterlogging stress.
萜类化合物是植物中一类重要的次生代谢产物,不仅参与植物正常的生长发育,而且还在植物对多种环境胁迫的响应中发挥重要作用(薛永常等,2025)。植物体中的萜类化合物主要通过两条途径合成,分别是细胞质中的甲羟戊酸途径(mevalonate pathway, MVA)和质体中的2-甲基赤藓糖醇-4-磷酸途径(2-C-methyl-D-erythritol-4-phosphate pathway, MEP)(郑婷等,2022)。作为MVA途径的限速酶,3-羟基-3-甲基戊二酰辅酶A还原酶(3-hydroxy-3-methylglutaryl coenzyme A reductase,HMGR)催化3-羟基-3-甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-CoA, HMG-CoA)转化为甲羟戊酸(MVA),对多种萜类化合物如倍半萜类和三萜类等萜类化合物的合成至关重要,并且在植物应对逆境胁迫中发挥重要作用。
作为MVA途径中的关键限速酶,HMGR对植物的生理功能和代谢调控具有重要影响。Moehninsi等(2020)研究发现,在马铃薯中过表达HMGR1会使其花期提前,生物量增加和块茎总重增加。除在正常生长中发挥作用以外,HMGR还参与代谢调控。有研究发现,在丹参中过表达𝑆𝑚HMGR4促进了丹参酮的积累(Majewska et al., 2022),在黄花蒿中过表达HMGR提高了青蒿素含量(Nafis et al., 2011)。近年来,HMGR基因家族已在多种植物中被克隆与鉴定,如拟南芥(Learned & Fink, 1989)、大豆(王帅等,2023)、葡萄(Leng et al., 2017)、枣(李娜等,2025)、洋常春藤(邓孝汲等,2026)等。这些植物中HMGR基因通常以多成员基因家族的形式存在,并且不同的HMGR家族成员在生长发育及逆境胁迫响应中发挥不同作用。拟南芥中共有两个HMGR基因成员,即AtHMGR1和AtHMGR2,其中AtHMGR1在所有器官中均有表达,对于维持植株体内萜类化合物的合成至关重要,当其功能缺失时表现出植株矮小、早衰和雄性不育(Suzuki et al., 2004),而AtHMGR2则主要在快速生长的组织中特异性表达且AtHMGR2缺失突变体在正常生长条件下与野生植株表型无异(Enjuto et al., 1994)。与拟南芥不同的是,洋常春藤中共有8个HMGR家族成员,其中HhHMGR4在脱落酸(abscisic acid,ABA)处理后表达水平显著升高(邓孝汲等,2026)。HMGR的表达不仅受到激素诱导调控,同时也受到逆境胁迫调控。大豆中共有8个HMGR家族成员,其中G𝑚HMGR1和GmHMGR4在盐胁迫下表达显著上调,G𝑚HMGR2和G𝑚HMGR6在干旱胁迫下表达量显著上调(王帅等,2023)。此外,过表达PtHMGR5显著提升了毛果杨对干旱胁迫的耐受性(Ma et al., 2023)。倍半萜类化合物脱落酸(ABA)是一种重要的逆境响应激素,可以通过调节气孔关闭、渗透物质的合成及抗氧化酶活性等来帮助植物应对干旱、盐碱等多种逆境胁迫(薛永常等,2025)。当水分过多而发生淹水胁迫时,水稻通过调控二萜类化合物的生物合成来应对淹涝胁迫(罗肖郧等,2025)。除二萜类化合物以外,木薯幼苗还同时激活半萜和三萜类化合物的生物合成来应对淹水胁迫(张欣等,2025)。Takahashi等(2023)发现,三萜类化合物的积累有助于增强大豆根内部的通气和根系发育,可提高大豆对淹水胁迫的耐受性。在对萼猕猴桃AvERF73过表达株系中,HMGR显著受到淹水胁迫诱导表达(Bai et al., 2025),表明HMGR可能参与对萼猕猴桃对淹水胁迫的响应。
猕猴桃为猕猴桃科(Actinidiaceae)猕猴桃属(Actinidia Lindl.)的藤本植物,其因果实富含维生素C和丰富的矿质元素而备受人们青睐。其中,对萼猕猴桃(Actinidia valvata)因其较强的耐涝性和扦插易生根,常被用作砧木嫁接中华系或美味系猕猴桃,不仅可以提高接穗植株的长势和耐涝性(陈玉明等,2018;高磊等,2024),而且还能显著提高果实产量和品质(刘扬等,2020;李大卫等,2023)。近年来,国内一些产区用对萼猕猴桃作砧木,与主要猕猴桃优良品种嫁接,可以保持优良品种的性状并促进接穗生长和丰产稳产,经济效益显著,现已在多个省、市得到推广(郭兴利等,2022;宋云云等,2022)。HMGR已在多种植物中被证实参与多种逆境胁迫的响应,但有关对萼猕猴桃中HMGR的种类、结构和功能却知之甚少。鉴于此,本研究以对萼猕猴桃为研究对象,采用生物信息学方法,通过对HMGR基因家族进行全基因组鉴定、系统进化分析及表达模式解析,拟探讨以下问题:(1)对萼猕猴桃HMGR基因家族的成员特征、理化性质、保守基序、启动子顺式作用元件、系统进化关系及染色体定位;(2)AvHMGRs基因在不同组织器官、果实发育时期及盐胁迫条件下的表达模式;(3)AvHMGRs基因在淹水胁迫下的响应特征及其在猕猴桃耐淹性中的潜在功能。本研究结果可为进一步探究对萼猕猴桃HMGR蛋白的功能及培育耐淹猕猴桃提供理论依据。
1 材料与方法
1.1 材料和处理
试验材料为广西壮族自治区中国科学院广西植物研究所猕猴桃种质资源圃提供的对萼猕猴桃扦插苗。选择生长一致的猕猴桃苗,每盆1株。采取“双套盆”法模拟淹水胁迫,将苗钵(18 cm × 18 cm黑色塑料营养钵)放入套有薄膜塑料袋的红色塑料花盆中(29 cm × 25 cm × 19 cm),每个花盆中放置1盆苗钵,保持花盆水面始终高出盆土表面2~3 cm,以模拟淹水胁迫。试验处理中,白天温度(25 ± 2)℃,夜间温度(18 ± 2)℃,光照周期12 h光/12 h暗,相对湿度60%~70%。以淹水处理0 d作为对照(CK),分别于处理0 d(CK)、1 d和7 d对植株根和叶片进行采样,每个时间点设置3个生物学重复,每个重复由3株植株组成,液氮速冻后置于-80 ℃保存。
1.2 方法
1.2.1 对萼猕猴桃HMGR基因家族成员的全基因组鉴定
对萼猕猴桃基因组数据由中国深圳华大基因测序获得,数据尚未公开发布。从Pfam数据库(http://pfam.xfam.org/)下载HMGR的HMM文件(PF00368),通过TBtools(v2.3111)(Chen et al., 2023)中的Advanced HMMER Search,以e值≤1×e-5为筛选阈值,从对萼猕猴桃蛋白数据进行检索。在拟南芥基因组数据库(TAIR,https://www.arabidopsis.org/)下载已公布的2条拟南芥HMGR蛋白序列作为种子序列,在对萼猕猴桃基因组中进行Blast比对筛选。两种方法筛选结果进行合并后提交到NCBI CDD和SMART,对初筛序列进行蛋白结构域的验证,最终确定对萼猕猴桃HMGR基因家族成员。通过ProtParam在线软件(https://web.expasy.org/protparam/)对AvHMGRs氨基酸长度、相对分子量大小和等电点等理化性质进行分析。通过Cell-PLoc 2.0网站(http://www.csbio.sjtu.edu.cn/bioinf/Cell-PLoc-2/)中的Plant-mPLoc对AvHMGR蛋白进行亚细胞定位预测。
1.2.2 AvHMGRs基因系统进化分析
从猕猴桃基因组数据库网站(https://kiwifruitgenome.atcgn.com/#/home)下载中华猕猴桃‘红阳’基因组数据,共鉴定得到6条AcHMGR基因序列,根据其在染色体上的位置,分别命名为AcHMGR01g-AcHMGR21g。利用MEGA7软件中的ClustalW对拟南芥、水稻、玉米、烟草(Du et al., 2024)、‘红阳’猕猴桃的HMGR氨基酸序列进行多重比对,通过邻接法(neighbor-joining)构建系统进化树,参数使用默认值,Bootstrap值设置为1 000,并使用iTOL对进化树进行美化。
1.2.3 AvHMGRs基因结构、蛋白基序和保守结构域的分析
通过MEME在线软件(https://meme-suite.org/meme/tools/meme)对AvHMGRs蛋白的保守基序进行分析。同时,利用NCBI中的CDD(https://www.ncbi.nlm.nih.gov/cdd/)对AvHMGRs蛋白的保守结构域进行分析,通过TBtools中的Gene Structure View(Advanced)对AvHMGRs的蛋白保守基序、保守结构域及基因结构进行可视化。
1.2.4 A𝑣HMGR𝑠蛋白二级结构和三级结构的分析
通过SOPMA在线软件(https://npsa-prabi.ibcp.fr/cgi-bin/npsa_automat.pl?page=npsa_sopma.html)对AvHMGRs蛋白的二级结构进行预测。同时,利用Phyre2(http://www.sbg.bio.ic.ac.uk/phyre2/html/page.cgi?id=index)对AvHMGRs蛋白的三级结构进行预测分析。
1.2.5 A𝑣HMGR𝑠基因染色体定位和共线性分析
根据对萼猕猴桃基因组GFF3注释文件提取AvHMGRs基因的染色体定位信息,利用MG2C(v2.1)在线工具(http://mg2c.iask.in/mg2c_v2.1/)对其染色体定位进行可视化。通过TBtools中One Step MCScanX-Super Fast对AvHMGR基因的复制事件进行共线性分析,并使用Advanced Circos进行可视化绘图。利用TBtools计算共线性基因的非同义替换率(non-synonymous substitution rate, K𝑎)和同义替换率(synonymous substitution rate, K𝑠),以及K𝑎/K𝑠值。当K𝑎/K𝑠<1时,表示存在纯化选择;当K𝑎/K𝑠>1时,表示存在正向选择;当Ka/Ks=1时,表示存在中性选择(Zhang, 2022)。基因分化时间(T)通过以下公式计算:T=K𝑠/𝑟,其中𝑟= 6.78 × 10⁻⁹(Luo et al., 2023; Tu et al., 2023),𝑇的单位为百万年前(million years ago, Mya)。
1.2.6 A𝑣HMGR𝑠基因启动子顺式作用元件分析
利用TBtools提取对萼猕猴桃HMGR基因家族成员上游2 000 bp的启动子序列,利用PlantCARE(http://bioinformatics.psb.ugent.be/webtools/plantcare/html/)对AvHMGRs启动子区域顺式作用元件进行预测和分析,再利用TBtools对启动子顺式作用元件进行可视化。
1.2.7 A𝑣HMGR𝑠基因在不同组织部位、不同果实发育阶段和盐胁迫下的表达分析
从NCBI数据库(https://www.ncbi.nlm.nih.gov/)分别下载对萼猕猴桃不同组织部位(PRJCA016269)、不同果实发育阶段(PRJNA984935)和盐胁迫(PRJNA726156)条件下AvHMGRs基因转录组测序数据,通过TBtools中的Kallisto Super GUI Wrapper计算基因表达量,再使用TBtools软件对AvHMGRs基因表达量进行log2转换后生成基因表达热图。
1.2.8 总RNA提取和RT-qPCR分析
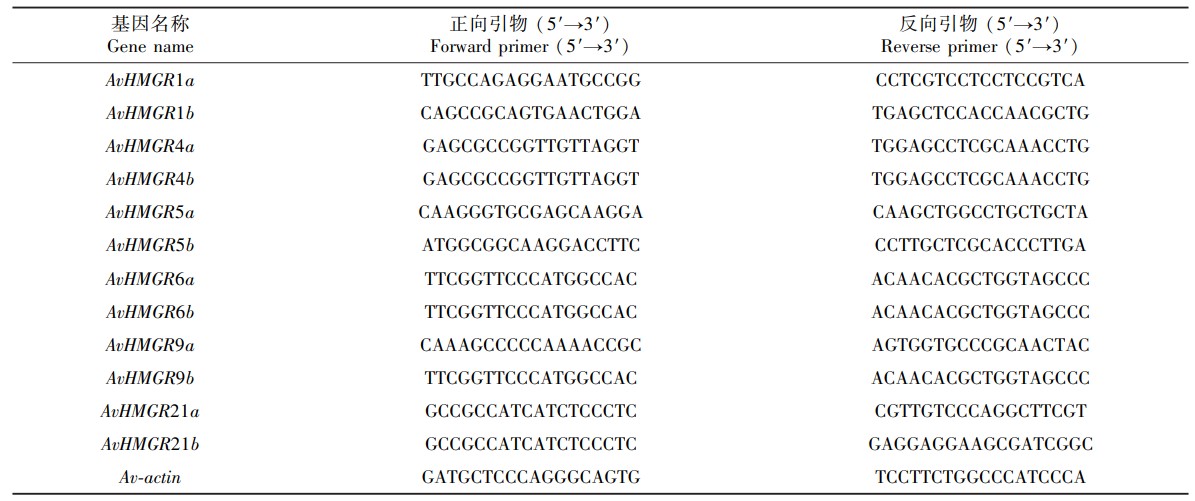
利用RNAprep Pure植物总RNA提取试剂盒 [天根生化科技(北京)有限公司]提取不同淹水处理时间猕猴桃叶和根的总RNA,通过琼脂糖凝胶电泳和分光光度计检测RNA的质量和浓度,利用FastKing cDNA第一链合成试剂盒 [天根生化科技(北京)有限公司]进行反转录获得cDNA,通过TBtools中的Batch q-PCR Primer Design设计定量引物(表1),以对萼猕猴桃Av-actin作为内参基因,采用SuperReal PreMix Plus[天根生化科技(北京)有限公司]进行荧光定量PCR,利用2-ΔΔCt方法计算AvHMGRs的表达量。
表
1
实时荧光定量PCR引物
Table
1
Quantitative real-time PCR primers
1.2.9 数据统计与分析
采用Excel 2021软件进行数据统计,SPSS 26.0软件进行单因素方差分析,*表示差异显著(𝑃<0.05),**表示差异极显著(𝑃<0.01)。所有数据结果以均值±标准误表示。
2 结果与分析
2.1 AvHMGRs基因家族成员的鉴定
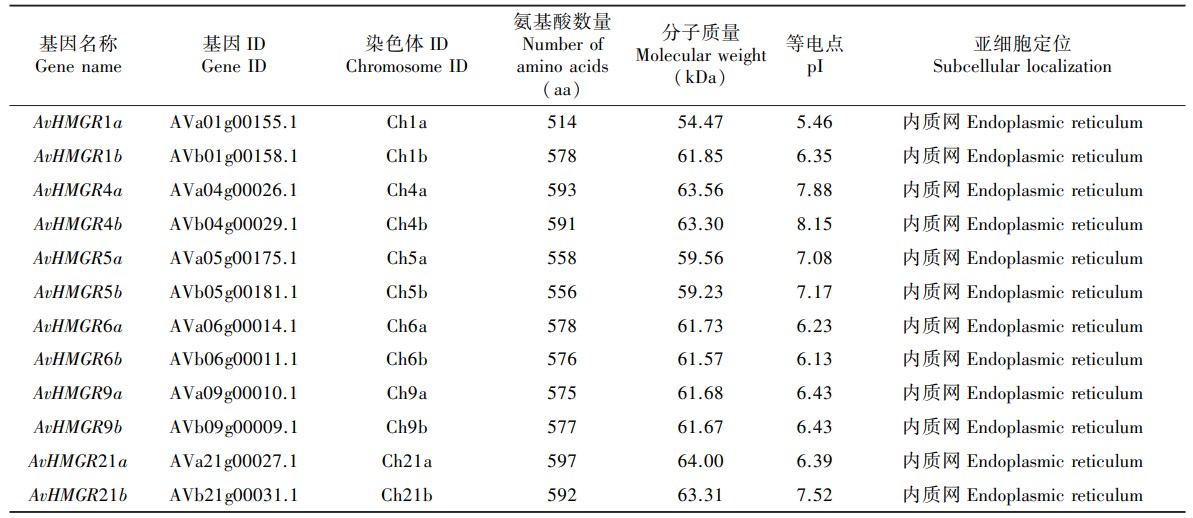
以拟南芥AtHMGR蛋白氨基酸序列作为初始序列,通过BlastP比对和Pfam结构域分析,从对萼猕猴桃基因组数据库中共筛选得到12个AvHMGR候选基因,经保守结构域筛查并去除冗余序列后,共鉴定到12个AvHMGR基因。根据它们在染色体上的具体位置,分别名为AvHMGR1a-AvHMGR21b(表2)。通过对其蛋白理化性质进行分析,如表2所示。AvHMGR蛋白长度差异较小,为514 aa(AvHMGR1a)~597 aa(AvHMGR21a),分子量为54.47~64.00 kDa,理论等电点(pI)为5.46~8.15,亚细胞定位预测显示所有的AvHMGR均定位于内质网。
表
2
对萼猕猴桃HMGR基因家族成员信息
Table
2
Information of HMGR gene family members in Actinidia valvata
2.2 AvHMGRs基因家族成员系统进化分析
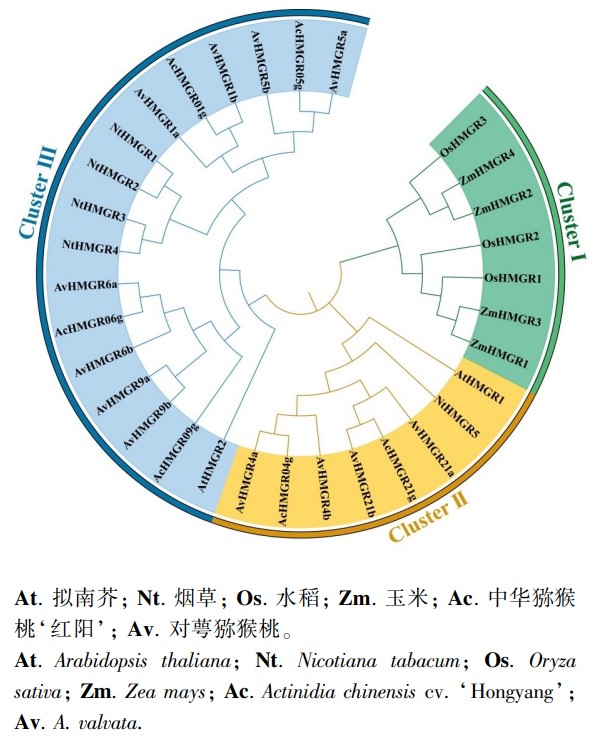
为阐明A𝑣HMGR𝑠的系统进化关系及功能,利用MEGA软件对拟南芥、烟草、水稻、玉米、对萼猕猴桃以及中华猕猴桃‘红阳’中的HMGR蛋白氨基酸序列进行了多重序列比对,并构建了系统进化树(图1)。根据系统进化树的分支,HMGR共分为3个亚家族:Cluster I中均为单子叶植物,无AvHMGR;Cluster Ⅱ中包含AvHMGR4a/b和AvHMGR21a/b,与AtHMGR1聚为一类;其余A𝑣HMGR𝑠成员与AtHMGR2聚为一类,为Cluster Ⅲ。Cluster Ⅲ中A𝑣HMGR5a/b与A𝑣HMGR1a/b亲缘关系更近,而A𝑣HMGR6a/b与AvHMGR9a/b亲缘关系更近;另外,A𝑣HMGRs与中华猕猴桃‘红阳’中的HMGRs具有高度同源性且A𝑣HMGR𝑠与位于相同染色体的A𝑐HMGR𝑠亲缘关系更近。
图
1
猕猴桃与其他物种HMGR基因家族成员的系统发育树
Fig.
1
Phylogenetic tree of the HMGR gene family members in kiwifruit and other species
2.3 AvHMGRs基因的系统进化树、蛋白保守基序、保守结构域和基因结构分析
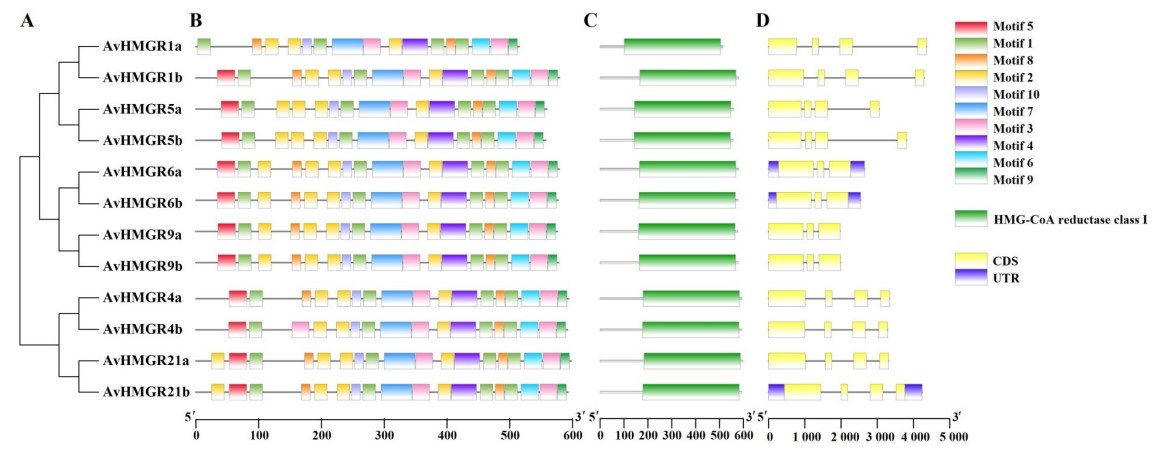
通过对对萼猕猴桃种内系统分析,发现12个AvHMGRs主要归于两个主要分支(图2:A)。为探究AvHMGRs结构的多样性,通过MEME对AvHMGR蛋白的保守基序进行分析,结果(图2:B)显示,AvHMGR家族蛋白序列非常保守,所有的AvHMGRs保守基序的种类、数量、位置差异较小,并且均含有NADP(H)结合基序(GTVGGG和DAMGMNM)和HMG-CoA结合基序(EMPVGYVQIP和TTEGCLVA)。通过NCBI-CDD对AvHMGRs的蛋白保守结构域进行预测分析,发现所有的AvHMGR均含有HMG-CoA reductase class I结构域(图2:C)。通过对AvHMGRs基因结构进行分析,发现AvHMGRs基因结构差异较小,其中Cluster Ⅲ的AvHMGR6a/b与AvHMGR9a/b均含有3个外显子和2个内含子,其他的AvHMGRs基因均含有4个外显子和3个内含子(图2:D)。
图
2
对萼猕猴桃HMGR基因家族系统进化树(A)、蛋白保守基序(B)、保守结构域(C)和基因结构(D)分析
Fig.
2
Analysis of phylogenetic tree (A), protein conserved motifs (B), conserved domains (C), and gene structure(D) of HMGR gene family in Actinidia valvata
2.4 AvHMGRs蛋白结构分析
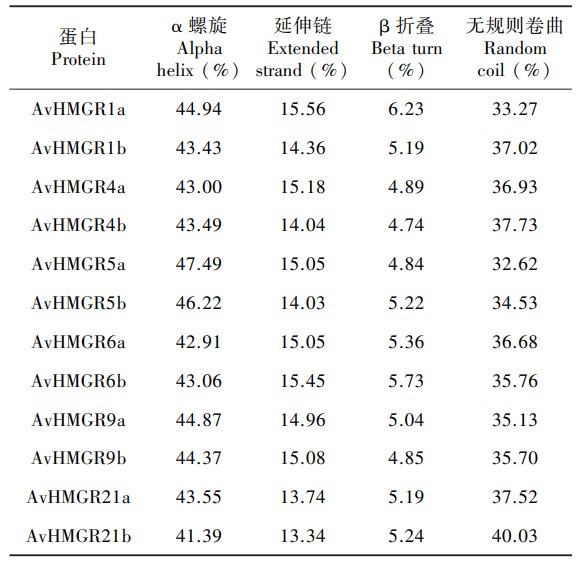
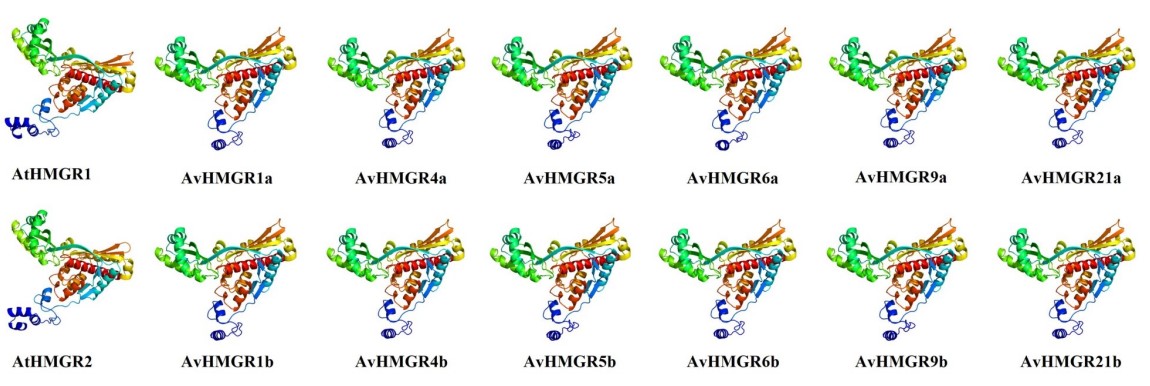
为进一步探究AvHMGR的蛋白结构,通过SOPMA对AvHMGR的二级结构进行预测,结果(表3)发现,AvHMGR蛋白主要由α螺旋、延伸链、β折叠和无规则卷曲组成,其中α螺旋和无规则卷曲占比较高,其次是延伸链,而β折叠的占比最低。此外,还通过Phyre2对AvHMGR蛋白的三级结构进行预测,结果(图3)发现,AvHMGR蛋白三级结构高度保守,与拟南芥AtHMGR结构相近。种胁迫响应)数量最多,分布最广,所有的AvHMGR基因均有分布,其次是缺氧响应元件(anaerobic responsive element,ARE)和胁迫响应元件(stress responsive element,STRE)。
表
3
AvHMGR 蛋白二级结构
Table
3
Secondary structures of AvHMGR proteins
2.5 AvHMGRs基因染色体定位和共线性分析
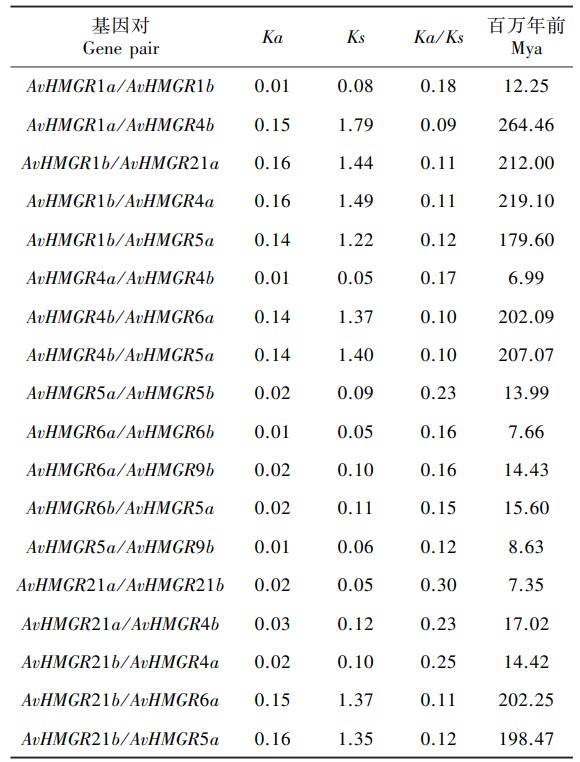
为进一步探究AvHMGRs在对萼猕猴桃基因组中的分布,利用对萼猕猴桃基因组数据,通过MG2C对AvHMGRs进行染色体定位分析。结果(图4)发现,12个A𝑣HMGR基因分别分布于12条染色体上,每条染色体上各有1个A𝑣HMGR基因。为阐明HMGR基因间的共线性关系,通过MCScanX对对萼猕猴桃种内进行了共线性分析,如图5所示,在对萼猕猴桃基因组内共有18对共线性基因。通过计算这18对共线性基因的Ka/Ks值,如表4所示,所有基因对的K𝑎/K𝑠值均小于1,表示这些共线性基因在进化过程中均经历了纯化选择。另外,这些基因的复制事件发生在6.99~264.46百万年前(Mya)(表4),部分基因对中的两个基因位于不同的亚家族中,这些基因复制事件发生时间较早。
2.6 AvHMGRs基因启动子顺式作用元件分析
为进一步探究AvHMGR基因的调控模式,通过PlantCARE对所有的A𝑣HMGR基因启动子区域顺式作用元件进行了预测。结果(图6:A)显示,每个A𝑣HMGR基因启动子区域均富集光响应相关顺式作用元件。与植物激素响应相关的顺式作用元件中,ABA响应元件几乎存在于所有的A𝑣HMGR基因中,而赤霉素(gibberellin,GA)响应元件仅存在于4个A𝑣HMGR基因中,分别为A𝑣HMGR1𝑎、A𝑣HMGR4𝑎、A𝑣HMGR4b及A𝑣HMGR5𝑎。另外,A𝑣HMGR基因启动子区域还包含多种与逆境胁迫响应相关的顺式作用元件,如干旱响应、厌氧诱导、低温响应以及防御和应激响应元件。其中,除A𝑣HMGR5𝑎以外,所有基因均含有厌氧诱导元件,表明A𝑣HMGR基因可能参与对淹水引起的缺氧胁迫响应。仅A𝑣HMGR5𝑎启动子含有干旱胁迫响应元件,表明A𝑣HMGR5𝑎可能参与对干旱胁迫的响应。另外,对顺式作用元件的数量统计分析发现,与植物生长发育相关的顺式作用元件包含35个G-box(参与光响应),其中A𝑣HMGR1a中包含了7个G-box元件(图6:B);与植物激素响应相关的元件中,ABA响应元件(abscisic acid responsive element,ABRE)最多,有32个;在与非生物和生物胁迫相关的元件中,MYC元件(参与多
2.7 AvHMGRs基因在不同组织部位、不同果实发育时期和盐胁迫下的表达
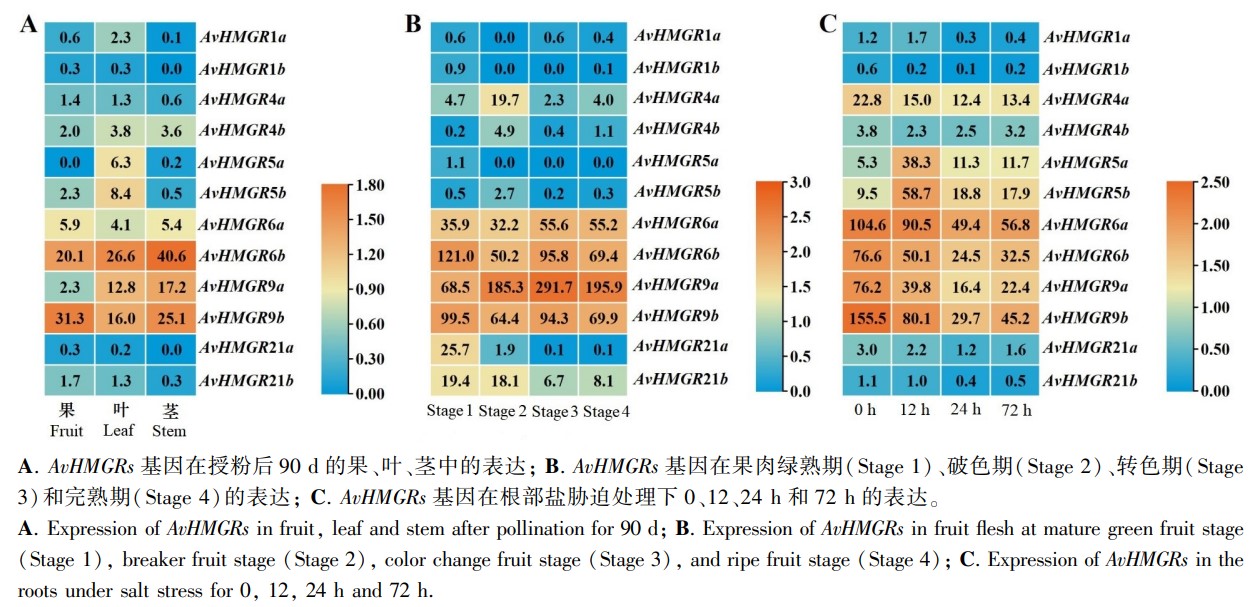
为进一步研究AvHMGR基因在不同植物组织中的表达模式,对对萼猕猴桃的果、叶和茎的转录组数据进行了分析。结果(图7:A)表明,在对萼猕猴桃不同组织中,AvHMGR6𝑏和AvHMGR9𝑎/𝑏表达相对较高,其中AvHMGR6𝑏和AvHMGR9𝑎在茎中表达较高,而AvHMGR9𝑏在果中表达最高。另外,AvHMGR5𝑎/𝑏在叶中表达相对较高。
为进一步探究AvHMGR基因在不同果实发育时期的表达模式,对对萼猕猴桃果实发育转录组数据进行了分析。结果(图7:B)表明,AvHMGR6𝑎/𝑏和AvHMGR9𝑎/𝑏在果实不同发育时期表达相对较高,其中AvHMGR6𝑎的表达水平在果实发育过程中逐渐增加,而AvHMGR6b和AvHMGR9𝑏在果实发育过程中呈先下降后上升再下降的动态表达模式。AvHMGR9a在绿熟期到转色期表达升高,到完熟期时表达降低;另外,AvHMGR21𝑎/𝑏在果实发育过程中逐渐降低,其中AvHMGR21𝑎降低幅度更大(图7:B)。
为进一步探究AvHMGR基因对盐胁迫的响应,对盐胁迫下对萼猕猴桃根中转录组数据进行了分析。结果(图7:C)表明,盐胁迫下,大多数AvHMGR基因表达下调,尤其是AvHMGR4𝑎、AvHMGR6𝑎/𝑏和AvHMGR9𝑎/𝑏。AvHMGR5𝑎/𝑏在盐胁迫12 h时表达升高,在盐胁迫24 h和72 h时表达水平下降,表明AvHMGR5𝑎/𝑏可能参与对盐胁迫的响应。
2.8 AvHMGRs基因在淹水胁迫下的表达分析
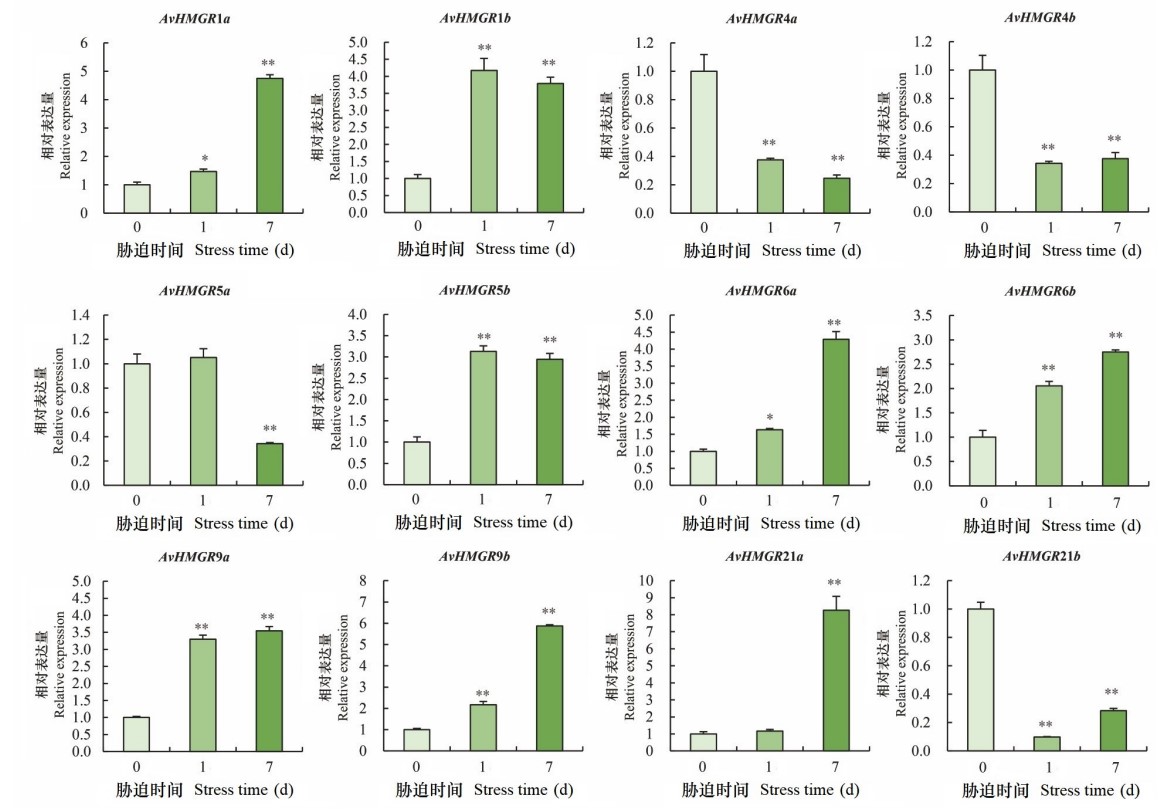
为探究AvHMGR在淹水胁迫下的表达情况,利用荧光定量PCR对AvHMGR基因的相对表达量进行了分析。结果(图8)显示,淹水胁迫处理后,叶中有多个AvHMGR基因表达显著上调,包括AvHMGR1𝑎/𝑏、AvHMGR5𝑏、AvHMGR6𝑎/𝑏、AvHMGR9𝑎/𝑏和AvHMGR21𝑎,这些基因在不同的淹水时期表达模式有所不同,其中AvHMGR1a、AvHMGR6a和AvHMGR21a在长时间淹水时表达显著增加,表达量显著上调至对照的4.75倍、4.29倍和8.26倍;AvHMGR1𝑏、AvHMGR5𝑏、AvHMGR6𝑏、AvHMGR9𝑎和AvHMGR9𝑏则在淹水胁迫1 d时表达量显著上调至对照的4.17倍、3.13倍、2.06倍、3.30倍和2.17倍。与此同时,AvHMGR4𝑎/𝑏、AvHMGR5𝑎和AvHMGR21𝑏在遭遇淹水胁迫后表达量显著下调。
图
3
AvHMGR蛋白的三级结构分析
Fig.
3
Tertiary structure analysis of AvHMGR proteins
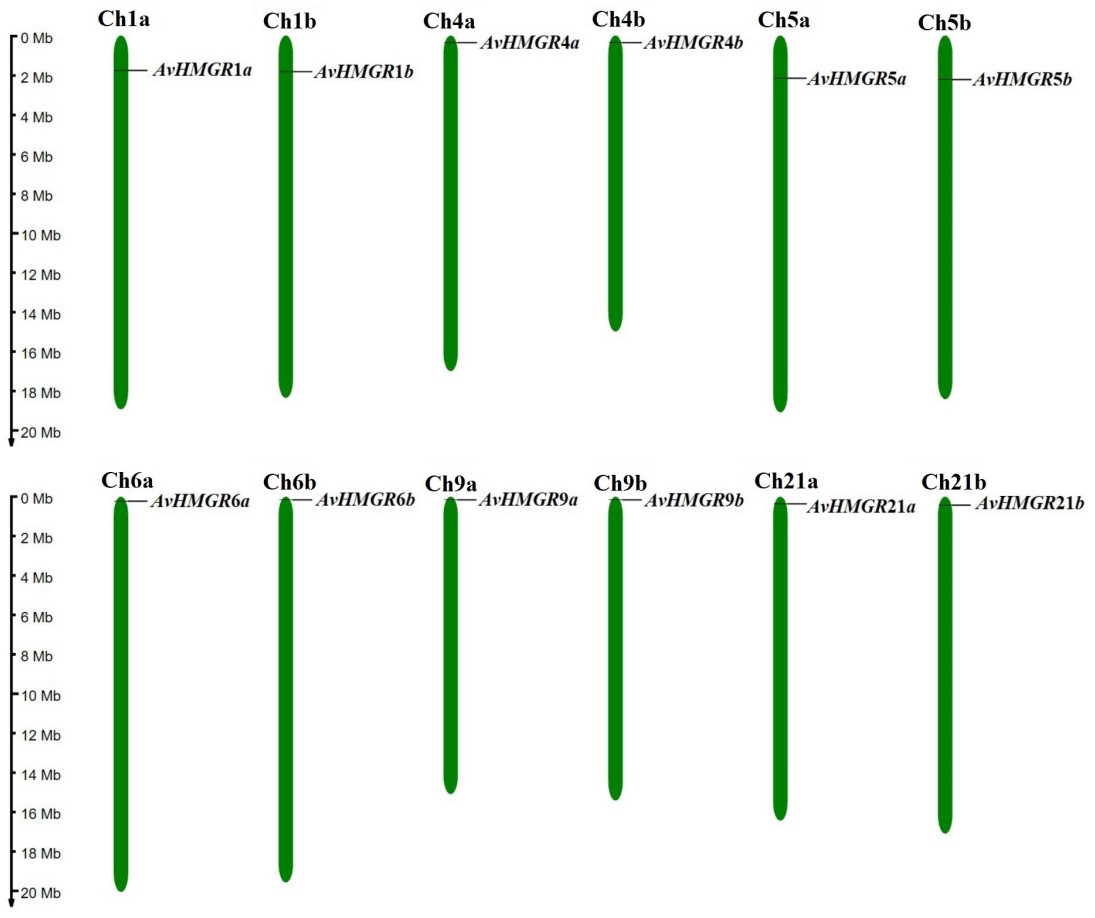
图
4
AvHMGR基因染色体定位分析
Fig.
4
Chromosomal localization analysis of AvHMGR genes
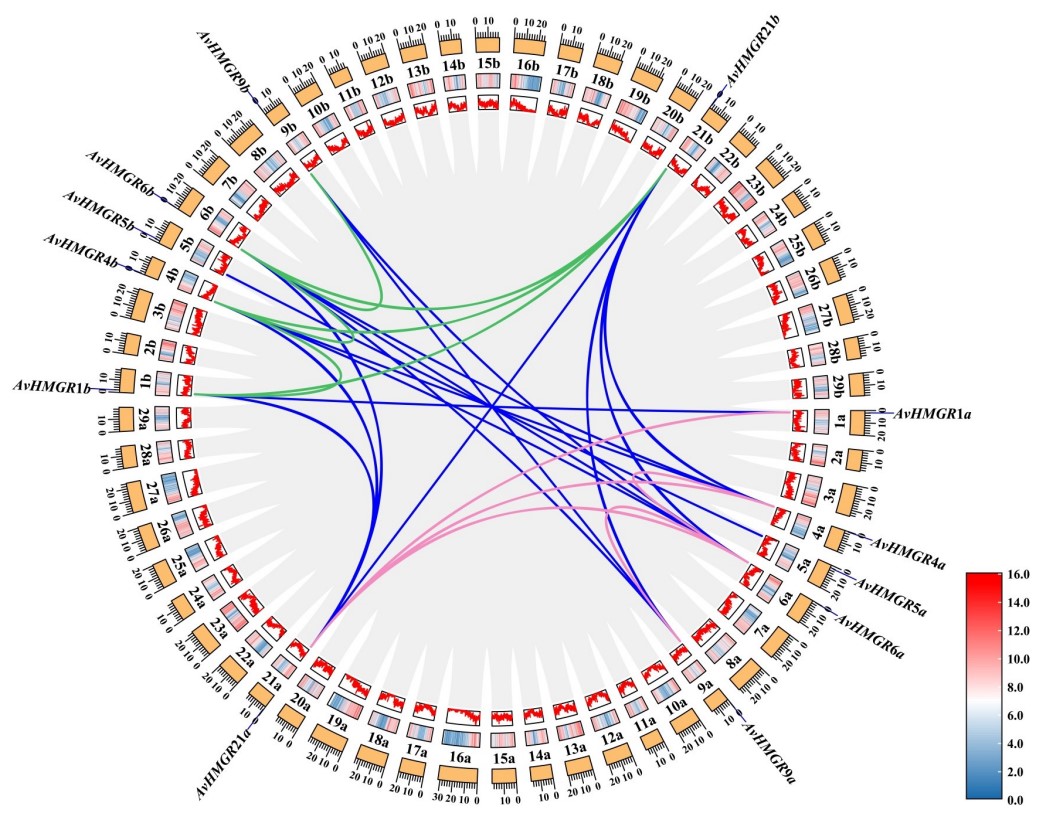
图
5
对萼猕猴桃HMGR基因家族共线性分析
Fig.
5
Collinearity analysis of HMGR gene family in Actinidia valvata
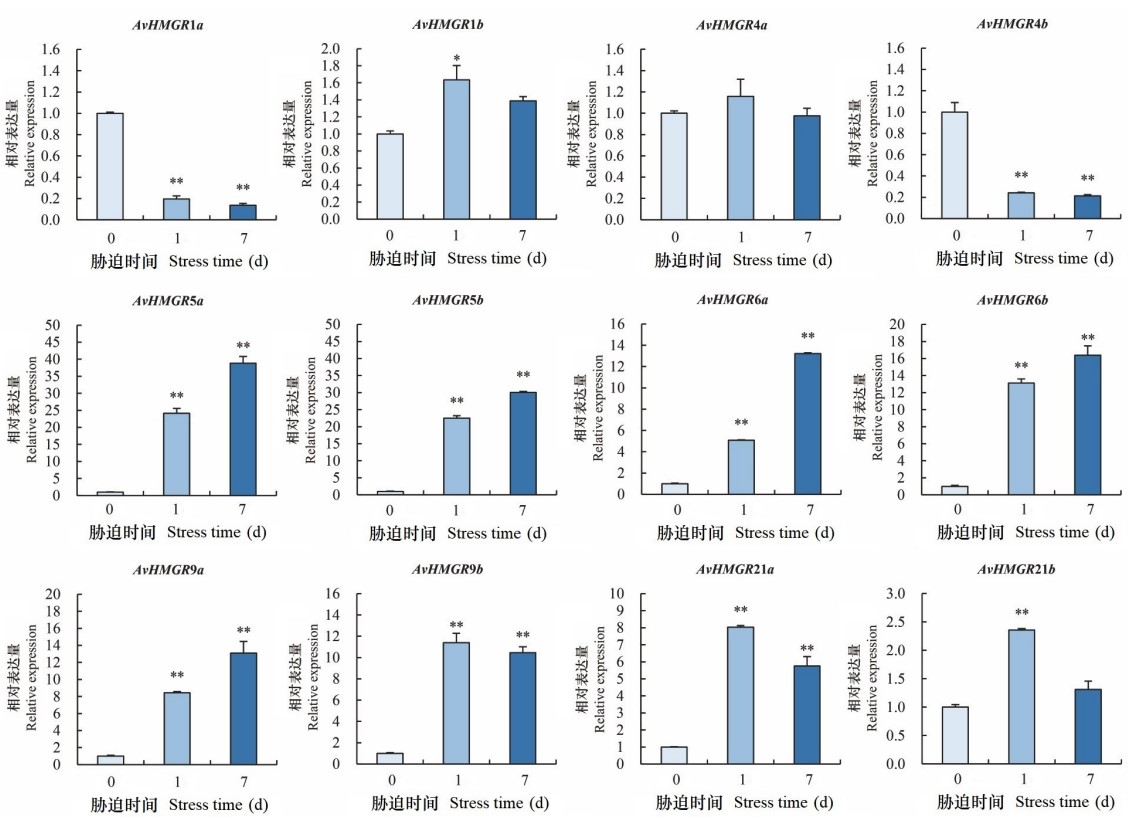
如图9所示,淹水胁迫下,对萼猕猴桃根中多个AvHMGR基因表达显著上调。其中,AvHMGR5a/b、AvHMGR6a/b和AvHMGR9a随着处理时间的延长,表达量逐渐增加,在淹水胁迫7 d时表达量分别显著上调至对照的38.83倍、30.04倍、13.22倍、16.39倍和13.09倍;AvHMGR9b和AvHMGR21a/b分别在处理1 d时表达量升至最高,随着淹水时间加长,表达量逐渐降低,尤其是AvHMGR21b在处理7 d时降低至对照水平;AvHMGR1a和AvHMGR4b在受到淹水胁迫后表达量显著下调。
3 讨论与结论
HMGR是MVA途径的限速酶,在萜类化合物的合成和逆境胁迫的响应中发挥着重要的作用。本研究从耐淹性强的对萼猕猴桃中共鉴定出12个AvHMGR基因,分布于12条染色体上,基因结构显示其包含3~4个外显子。AvHMGR基因编码的蛋白均定位于内质网,与掌叶覆盆子(陈俊宇等,2024)、洋常春藤(邓孝汲等,2026)、葡萄(Leng et al., 2017)、橡胶草(Du et al., 2024)和酸枣(Tang et al., 2025)中的HMGR定位一致。所有的AvHMGR均含有HMG-CoA reductase class I结构域,并具有高度保守的基序,表明AvHMGR在进化过程中具有较高的保守性,为其酶学活性及功能的稳定发挥提供了分子基础。系统进化树将HMGR分为3个亚家族,其中单子叶植物中的HMGR独立形成一个分支;在双子叶植物中,HMGR分为两组,其中AvHMGR4a/b和AvHMGR21a/b与拟南芥AtHMGR1聚为一类,归为Cluster Ⅱ;其余AvHMGRs与AtHMGR2聚为一类,归为Cluster Ⅲ。共线性分析表明,不同亚家族中的AvHMGR基因复制事件发生较早,而同一亚家族内的AvHMGR基因复制事件则相对较晚。这表明AvHMGR基因家族的多样性主要源自早期的亚家族分化,而后期的基因复制则促进了同一亚家族内基因功能的细化和多样化。此外,本研究发现多个AvHMGR基因定位于染色体的近末端区域,这些区域通常是基因重组和结构变异较为活跃的区域,常促进基因家族的扩张和分化,表明该基因家族在进化过程中保留了较高的遗传可塑性,并促进了其功能的多样化。同时,位于染色体末端的基因往往具有更灵活的转录调控模式,可能对环境胁迫更为敏感。因此,AvHMGR基因的特殊分布位置可能与其在猕猴桃环境适应性进化中的潜在功能紧密相关。毛酸浆pf04G089580(张振豪,2024)、大理天门冬AtaHMGR3(Zeng et al., 2025)、枣ZjHMGR10(李娜等,2025)等基因也定位于染色体的近末端区域。
顺式作用元件分析显示,AvHMGR基因启动子区富含植物生长发育、植物激素响应和逆境胁迫响应的顺式作用元件。其中,在植物生长发育相关的顺式作用元件中,所有AvHMGR基因都具有较多的光响应元件。在正常生长过程中,AvHMGR6b和AvHMGR9a/b在对萼猕猴桃多个组织中表达相对较高,其中AvHMGR9b在果中表达最高,茎中次之,叶中最低,表明AvHMGR9b可能参与对萼猕猴桃果实香气和色泽的形成。然而,AvHMGR6b和AvHMGR9a在茎中表达最高,叶中次之,果实中最少,表明AvHMGR6b和AvHMGR9a可能参与植株的正常生长发育。拟南芥中AtHMGR1在所有器官中均有表达,当AtHMGR1缺失时突变体表现出矮化和早衰等表型;而AtHMGR2则主要在快速生长的组织中特异性表达,当AtHMGR2缺失时突变体在正常生长条件下无异常表型(Enjuto et al., 1994; Suzuki et al., 2004)。与AtHMGR1在系统进化上归于同一亚家族的AvHMGR4a/b和AvHMGR21a/b在各组织中表达水平较低,而与AtHMGR2在系统进化上归于同一亚家族的AvHMGR6a/b和AvHMGR9a/b则在正常条件下表达水平较高,这与拟南芥中HMGR在正常条件下的表达模式有一定差异,可能是对萼猕猴桃与拟南芥在物种特异性、环境适应和基因调控等方面的差异,导致基因的表达模式不一致。
对萼猕猴桃果实成熟时果肉为橙色,其果实中主要的类胡萝卜素是β-胡萝卜素,在其果实成熟过程中上调的差异表达基因进行GO富集分析发现,类异戊二烯代谢过程显著富集(Bhargava et al., 2023)。通过对AvHMGRs在果实发育过程中的表达模式进行分析,发现AvHMGR6a/b和AvHMGR9a/b表达相对较高,其中AvHMGR9a表达随果实发育显著上调,到转色期时表达值最高,表明它们可能参与对萼猕猴桃果实中类胡萝卜素的积累。这与陈俊宇等(2024)和李娜等(2025)的研究结果一致,在掌叶覆盆子中也发现RcHMGR参与了类胡萝卜素在果实中的积累,成熟枣果实ZjHMGR的表达量与类胡萝卜素含量正相关。此外,在植物激素响应相关的顺式作用元件中,ABA响应元件几乎存在于所有的AvHMGR基因中,7个AvHMGR基因中含有MeJA响应元件。基因表达验证了顺式作用元件预测。例如,大豆和毛果杨的HMGR基因在ABA和MeJA处理后表达均显著上调(王帅等,2023; Ma et al., 2023);洋常春藤中HhHMGR4在ABA处理后表达量显著升高(邓孝汲等,2026);掌叶覆盆子RcHMGR5受到MeJA强烈诱导(陈俊宇等,2024)。另外,AvHMGR基因启动子区域有多个逆境胁迫响应顺式作用元件,如干旱响应、厌氧诱导、低温响应以及防御和应激响应元件,表明AvHMGR可能在多种逆境胁迫的响应中发挥着重要作用。在多种植物中已证实HMGR与植物的抗旱性和耐盐性等有关,如HMGR基因的过表达可以显著提高香榧、毛果杨以及大理天门冬的抗旱性(Ma et al., 2023; 申航,2024; Zeng et al., 2025),同时还可以提高大理天门冬和大豆的耐盐能力(Zeng et al., 2025; 冯鑫杰,2025)。在对萼猕猴桃中,AvHMGR5a/b在盐胁迫12 h时表达升高,在盐胁迫24 h和72 h时表达下降,表明AvHMGR5a/b可能参与对短期盐胁迫的响应,HMGR可能通过参与信号分子的上游调控网络和激素信号途径来提高植株应对盐胁迫的能力。同时,厌氧诱导元件几乎分布于所有的AvHMGR基因中,表明AvHMGR基因可能参与对淹水引起的缺氧胁迫响应。
表
4
AvHMGR基因的复制事件分析
Table
4
Duplication event analysis of AvHMGR genes
淹水胁迫是影响猕猴桃生长的主要非生物逆境胁迫之一。淹水胁迫下,对萼猕猴桃叶和根中多个A𝑣HMGR基因表达显著上调,包括A𝑣HMGR5b、A𝑣HMGR6𝑎/b、A𝑣HMGR9𝑎/b和AvHMGR21a,这些A𝑣HMGR同时在叶和根中表达上调。A𝑣HMGR1𝑎/b在叶中特异性表达上调,而A𝑣HMGR5𝑎和A𝑣HMGR21b在根中特异性表达上调。另外,这些基因在不同的淹水时期表达模式有所不同,在根中,A𝑣HMGR5a/b、A𝑣HMGR6𝑎/b和AvHMGR9a随着处理时间延长,表达量逐渐增加,而A𝑣HMGR9b和A𝑣HMGR21𝑎/b则在处理1 d时表达量升至最高,随后表达量逐渐降低,表明A𝑣HMGR9b和A𝑣HMGR21𝑎/b在短期淹水胁迫中发挥作用,而A𝑣HMGR5𝑎/b、A𝑣HMGR6𝑎/b和AvHMGR9a在较长期淹水胁迫中发挥作用。淹水处理后根际氧气浓度降低,因土壤中氧气迅速被根系呼吸和微生物活动消耗而使植株处于缺氧环境(Xu et al., 2024)。缺氧胁迫下,植株体内能量合成受阻,同时会诱导产生大量的活性氧,从而影响植物的生长发育甚至降低产量(沈家涛等,2022)。为了应对淹水胁迫,植株通过合成激素信号分子,如乙烯,迅速感知胁迫,调控糖酵解和发酵途径来转变能量代谢方式,调控生理代谢途径来清除活性氧等一系列变化以抵御淹水胁迫对植株的损伤(李继军等,2023)。因此,在对萼猕猴桃淹水胁迫的早期阶段,通过诱导A𝑣HMGR基因表达,可能是通过激活MVA途径合成植物激素和甾醇类信号分子,利用信号传导来调节植株体内的生理生化反应,从而调控对萼猕猴桃应对淹水胁迫。蒋环琪等(2025)发现,玉米在渍水胁迫下可通过协同调控类胡萝卜素和植物激素信号转导途径来缓解胁迫造成的氧化损伤,以维持生理稳态。随着淹水的持续,对萼猕猴桃通过调整自身的防御策略,上调表达A𝑣HMGR基因,通过MVA途径合成异戊二烯类抗氧化物,如类胡萝卜素、萜类化合物等,清除自由基,增强植物的抗氧化能力,减轻长时间淹水对植株造成的氧化损伤;同时,还可调控甾醇类物质的合成,维持细胞膜完整性和流动性,从而维持淹水胁迫下细胞内环境的稳态。Bai等(2025)也证实HMGR与淹水胁迫有关,其研究发现,对过表达对萼猕猴桃A𝑣ERF73株系进行淹水胁迫时,HMGR表达上调,可能是通过激活MVA通路积累萜类化合物和甾醇来应对淹水胁迫。水稻和木薯可通过调控萜类化合物的生物合成来应对淹涝胁迫(罗肖郧等,2025;张欣等,2025)。
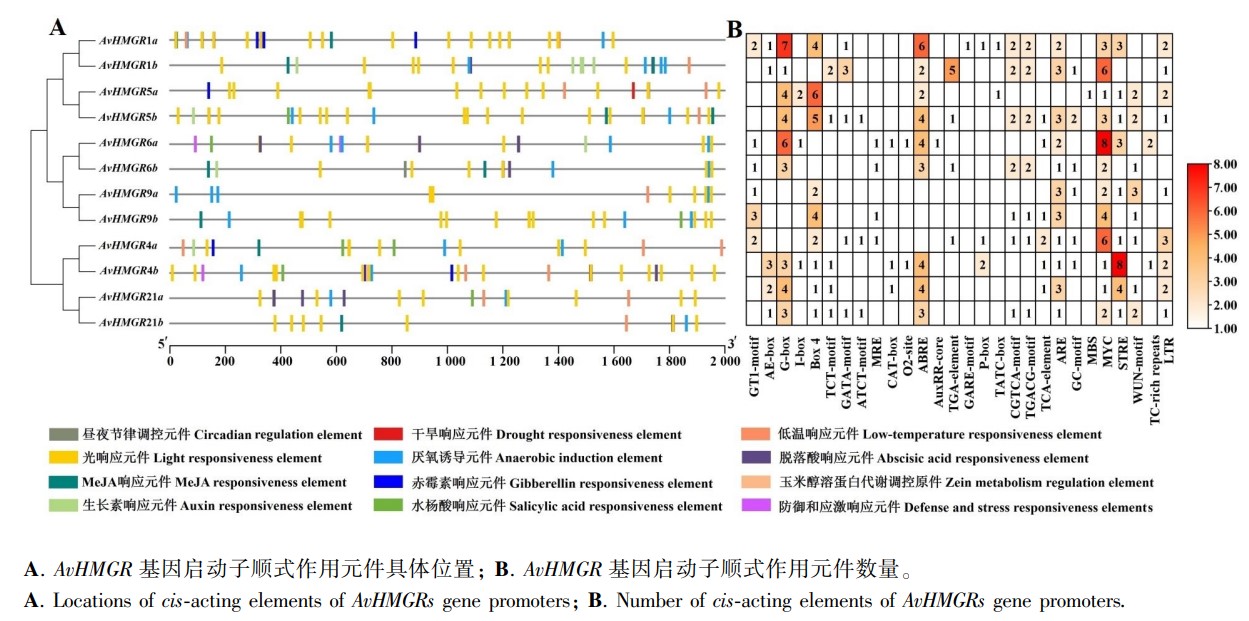
图
6
AvHMGR基因启动子顺式作用元件分析
Fig.
6
Cis-acting element analysis of AvHMGRs gene promoters
图
7
A𝑣HMGR基因在不同组织、不同果实发育时期以及盐胁迫下的表达模式
Fig.
7
Expression profiles of A𝑣HMGR𝑠 in different tissues and fruit developmental stages, and under salt stress

图
8
叶中AvHMGR基因在淹水胁迫0、1、7 d时的相对表达量
Fig.
8
Relative expression of AvHMGRs in leaves under waterlogging stress for 0, 1, 7 d
图
9
根中A𝑣HMGR基因在淹水胁迫0、1、7 d时的相对表达量
Fig.
9
Relative expression of AvHMGRs in roots under waterlogging stress for 0, 1, 7 d
综上所述,本研究在对萼猕猴桃中鉴定了12个A𝑣HMGR基因,所有的A𝑣HMGR均含有HMG-CoA reductase class I结构域,并具有高度保守的蛋白基序。通过构建系统进化树,A𝑣HMGR主要归属于两个亚家族,每个亚家族中的AvHMGR具有相似的基因结构和蛋白质结构。在A𝑣HMGR基因启动子区域发现大量与植物生长发育、植物激素响应和逆境胁迫响应相关的顺式作用元件。多个A𝑣HMGR在果实成熟过程中表达上调,可能和果实中类胡萝卜素的积累有关。多个AvHMGR在淹水胁迫表达量显著升高,表明AvHMGR在淹水胁迫的响应中发挥着重要作用。本研究为进一步探究对萼猕猴桃HMGR在耐涝中的作用机制提供了理论基础,也为培育耐淹猕猴桃提供了参考。