摘要
该研究以革叶猕猴桃(Actinidia rubricaulis var. coriacea)为研究对象,通过系统测定需冷量,结合生理生化测定与高通量转录组测序技术,解析了其从休眠起始至解除过程中芽体内部碳水化合物代谢、内源激素平衡及抗氧化酶系统的动态变化规律。结果表明:(1)随着低温积累,至休眠解除阶段,芽体可溶性糖含量明显增加(约为初始阶段的2倍),而淀粉含量明显降低(约下降至最初水平的一半),表明碳水化合物代谢呈现淀粉降解与可溶性糖积累的动态转换。(2)内源激素水平呈现阶段性变化,脱落酸(ABA)含量从起始阶段的486.75 μg·L-1显著下降至休眠解除阶段的218.45 μg·L-1,赤霉素(GA)含量从214.23 pg·mL-1明显上升至614.75 pg·mL-1,ABA/GA比值从2.27降至0.36,表明激素平衡向促进萌发方向转变。(3)抗氧化酶系统(SOD、POD等)活性在低温积累192 h时达到峰值,表明芽体通过增强抗氧化能力来应对低温胁迫。(4)转录组分析鉴定出12 685个差异表达基因(DEGs),其中6 067个基因表达上调,6 618个基因表达下调,富集于植物激素信号转导、淀粉与蔗糖代谢和环境应答等通路,揭示了多基因协同调控机制。该研究首次在系统水平上阐明了革叶猕猴桃需冷量积累的生理-转录协同调控机制,为应对气候变暖导致的休眠障碍及育种的相关研究奠定了基础。
Abstract
This study selected Actinidia rubricaulis var. coriacea as the research subject, systematically measuring chilling requirements and integrating physiological-biochemical assays with high-throughput transcriptome sequencing to elucidate dynamic changes in bud carbohydrate metabolism, endogenous hormone balance, and antioxidant enzyme systems during the process from the dormancy initiation to the dormancy release. The results were as follows: (1) With chilling accumulation, bud soluble sugar content significantly increased (approximately two fold of initial stage) while starch content markedly decreased (to about half of initial level) by dormancy release, indicating a dynamic metabolic shift from starch degradation to soluble sugar accumulation. (2) Endogenous hormone levels exhibited stage-specific changes, with abscisic acid (ABA) content decreasing from 486.75 μg·L-1 at initial stage to 218.45 μg·L-1 at dormancy release stage, and gibberellin (GA) content increasing from 214.23 pg·mL-1 to 614.75 pg·mL-1, resulting in an ABA/GA ratio decline from 2.27 to 0.36, suggesting a hormonal shift toward germination promotion. (3) Antioxidant enzyme system (SOD, POD, etc.) activities peaked at 192 h of chilling accumulation, indicating enhanced antioxidant capacity as a response to cold stress. (4) Transcriptome analysis identified 12 685 differentially expressed genes (DEGs), with 6 067 genes up-regulated and 6 618 genes down-regulated, enriched in plant hormone signal transduction, starch and sucrose metabolism, and environmental response pathways, revealing a multi-gene coordinated regulatory mechanism. This study, for the first time at the systems level, elucidates the physiological-transcriptomic coordinated regulatory mechanism of chilling requirement accumulation in A. rubricaulis var. coriacea, providing a foundation for addressing climate warming-induced dormancy disorders and related breeding research.
果树休眠(dormancy)是多年生木本植物在长期进化过程中形成的适应性生理过程,对抵御冬季低温胁迫及保障翌年春季正常萌芽、开花与结果具有关键作用(Campoy et al., 2011; Cooke et al., 2012)。该过程通常包含生态休眠(ecodormancy)与内休眠(endodormancy)2个阶段,其中内休眠的解除严格依赖于有效低温的累积,即需冷量(chilling requirement, CR)(Luedeling, 2012; 张磊等,2023)。在落叶果树(如苹果、梨、桃、樱桃、葡萄及落叶型猕猴桃)中,休眠伴随叶片完全脱落与芽鳞紧密包裹等显著形态特征,芽体需积累足够冷量方可解除内休眠(Faust et al., 1997; Campoy et al., 2011; 庄维兵等,2012)。冷量不足将导致萌芽不齐、花期紊乱、坐果率下降及果实品质劣变,严重时引发减产或绝收(Erez & Fishman, 1998; Campoy et al., 2011; Luedeling, 2012; Atkinson et al., 2013; Zhao et al., 2025)。相较而言,常绿果树(如柑橘、荔枝、龙眼、橄榄及常绿猕猴桃)冬季叶片部分存留,休眠缺乏典型形态标志,主要表现为生长速率减缓、顶端分生组织活性降低及芽体生理代谢调整(Cooke et al., 2012)。需明确指出,常绿特性并不等同于“无休眠”,其芽体仍经历明确的生理性内休眠状态,并对低温信号产生特异性响应(Arora et al., 2003; Bielenberg et al., 2008)。Ríos等(2014)研究指出,常绿果树的休眠调控可能涉及差异化的低温感知机制、激素信号网络与代谢适应策略。在气候变暖背景下,常绿猕猴桃因其潜在的低需冷量特性与暖冬适应能力,为猕猴桃产业应对“冷量不足”挑战提供了重要种质资源基础(Luedeling et al., 2011; Zhao et al., 2025)。
需冷量(CR)指解除内休眠所需的有效低温累积量,是果树品种区域适应性评价与产业布局的核心参数(赵海亮等,2007; Campoy et al., 2011; Luedeling, 2012)。传统需冷量模型(chilling hours model)以累计≤7.2 ℃的小时数为指标。在猕猴桃属中,CR存在明显种质差异,受芽类型(营养芽/花芽)、倍性水平及遗传背景等多因素调控(杨义伶等,2010; Wang et al., 2017; Zhao et al., 2017)。不同倍性猕猴桃材料的冷量响应特征具有系统性差异(Zhao et al., 2017)。精准测定CR对指导引种、品种更新、设施栽培及暖冬年份管理具有直接应用价值;盲目引种高需冷量品种至温暖区域,易引发萌芽障碍与产量损失(Luedeling et al., 2011; Campoy et al., 2011; Luedeling, 2012; 张磊等,2023);与此同时,结合IPCC气候情景的CR预测,可为制定品种替换、种植区调整、设施调控或休眠调节剂应用等适应性策略提供科学依据(Luedeling et al., 2011; Darbyshire et al., 2011; Luedeling, 2012)。全球气候变暖导致冬季有效低温累积显著减少,已成为温带果树产业可持续发展的严峻挑战(Luedeling et al., 2011; Masson-Delmotte et al., 2021)。低纬度、沿海及盆地果区的冷量亏缺趋势尤为突出,传统主产区面临长期风险(王连荣等,2008; Luedeling et al., 2011; Luedeling, 2012)。冷量不足引发系统性生产障碍:休眠解除延迟→萌芽花期不整齐→授粉受阻→坐果率下降→果实发育不均→产量与品质降低(Campoy et al., 2011; Atkinson et al., 2013)。同时,暖冬可能诱使芽体提前萌动,增加倒春寒冻害风险(梁浩,2007; Darbyshire et al., 2011)。中国猕猴桃主产区(四川、陕西、贵州、湖南等)冬季升温趋势明显,高需冷量品种(如‘Hayward’)在暖冬年份常出现萌芽率下降与花芽分化不良(Wang et al., 2017; Zhao et al., 2017; 赖喆羽等,2025),凸显挖掘低需冷量种质资源的紧迫性(Campoy et al., 2011; Luedeling, 2012)。
猕猴桃属(Actinidia)起源于中国,物种多样性丰富,是全球栽培品种的主要遗传来源(Hanley, 2018)。商业栽培以中华猕猴桃和美味猕猴桃为主,但在野生资源中已鉴定出具有常绿或半常绿特性的特殊种质;其冬季叶片部分存留,芽体仍能响应低温进入生理性休眠并在适宜条件下解除(Hanley, 2018)。常绿猕猴桃种质的产业价值在于其潜在的低需冷量特性或增强的低温感知能力,可在冷量有限环境下维持正常物候进程(Luedeling et al., 2011; Zhao et al., 2017)。Ríos等(2014)研究指出,常绿性状可能与休眠调控网络、碳代谢途径及激素信号通路的适应性调整相关。然而,当前研究多集中于资源描述、形态分类与初步抗逆性评价,对“休眠→需冷量→萌芽”全过程的生理动态与分子调控机制缺乏系统解析,尤其在需冷量积累关键阶段的基因表达谱与调控网络方面研究匮乏,制约了该类种质向育种实践的有效转化。果树休眠分子机制研究在落叶果树体系中已取得重要进展。DAM(dormancy-associated MADS-box)基因与SVP(short vegetative phase)类MADS-box基因被证实为核心调控枢纽,通过整合植物激素信号 [脱落酸(abscisic acid, ABA)、赤霉素(gibberellin, GA)]、表观遗传修饰、糖代谢动态及氧化还原调控等多层级通路协同作用(Cooke et al., 2012; Falavigna et al., 2019)。在苹果、梨和桃中,DAM基因表达于深休眠期(指需冷量积累中期及芽萌发率最低的生理阶段)达峰值,随冷量累积而下调,休眠解除伴随DAM抑制、GA合成增强及生长相关基因激活(Falavigna et al., 2019; 李家奎等,2025; Zhao et al., 2025)。国内综述亦指出,DAM基因参与芽休眠的形成、维持与解除,受激素与表观遗传因子共同调控,是分子育种的重要靶点(张伟富等,2019; 赵亚林和王力荣,2025)。高水平研究进一步阐明,休眠解除是SVP/DAM模块与多信号通路互作形成的动态网络整体重构过程(Falavigna et al., 2019)。然而,上述机制主要基于落叶果树模型,常绿猕猴桃的休眠分子特征尚未系统阐明。现有证据表明,其低需冷量表型可能与ABA/GA比值动态、碳代谢效率或信号感知阈值的差异相关(Ríos et al., 2014; Zhao et al., 2025),但缺乏时序性多组学数据支持。转录组学技术已在葡萄和樱桃等果树休眠研究中成功应用(Howe et al., 2015; Zhao et al., 2025),而针对常绿猕猴桃休眠进程的整合解析仍属空白。
本研究以革叶猕猴桃(Actinidia rubricaulis var. coriacea)为材料,采用需冷量动态测定、生理生化时序分析与高通量转录组测序相结合的方法,通过系统解析休眠进程中芽体碳水化合物代谢、内源激素平衡、抗氧化酶活性变化及基因表达谱特征,拟探讨以下问题:(1)革叶猕猴桃的需冷量阈值是多少,其休眠进程中可溶性糖、淀粉含量及ABA、GA等内源激素水平如何动态变化;(2)低温累积关键节点的转录组具体特征,哪些关键通路(如植物激素信号转导、淀粉与蔗糖代谢)被显著富集;(3)生理指标变化与差异表达基因(differentially expressed genes,DEGs)之间是否存在显著相关性,能否构建革叶猕猴桃低需冷量特性的生理-转录协同调控网络。本研究旨在阐明革叶猕猴桃需冷量积累的分子生理基础,填补常绿果树休眠调控机制的研究空白,为气候变暖背景下猕猴桃产业的种质创新与精准栽培提供理论依据与关键靶点。
1 材料与方法
1.1 植物材料
供试材料采自广西壮族自治区中国科学院广西植物研究所猕猴桃种质资源圃的革叶猕猴桃,具备常绿特性,多年生已进入结果期的雌株,统一栽培于苗圃中,常规水肥管理,生长势一致。
在冬季猕猴桃自然落叶后,田间日平均气温降低到连续3 d稳定通过7.2 ℃时开始采样。选择树势生长健壮、长势一致无病虫害的1年生枝。每份资源选取5 根枝条,剪去枝条两端,截成30~40 cm的枝段,保存于4 ℃冰箱。从取样开始日起,每2 d从冰箱中取出枝条,剪成每段包括4~6个饱满芽的小段,最终保证每份资源的总芽量为30~50个,插入盛有清水(水深2~3 cm)的器皿中,立即放入智能人工气候箱(PQX-350D,宁波东南仪器有限公司,中国) 进行培养(温度25 ℃,光照时间16 h,黑暗8 h,光强3 000 lx)。每2 d换一次水,并剪去基部2~3 mm,露出枝条基部新茬。水培20 d后统计萌芽率。萌芽率及需冷量的统计:萌芽标准为枝条芽顶端鳞片开裂、露绿为准;萌芽率达到或超过50%,即表示该材料已经顺利通过休眠;试验中测定猕猴桃达到需冷量是以连续两次处理的萌芽率均达到50%或超过50%为准,需冷量和萌芽率均以前一次低温处理的为准,后次仅作验证。
1.2 试验方法
1.2.1生理生化指标测定
(1)不同低温处理条件下样品处理与采集
A(田间自然低温休眠处理):利用农田气象自动监测站(HMNL08)进行自动观测和记录,在田间日平均气温降低到连续3 d稳定通过7.2 ℃时开始第一次采样,有效低温积累时间记为0 h;因暖冬原因没有足够的低温积累,即有效低温积累不足,按照每8 d采集一次,直到萌芽前30 d左右达到生态休眠末期;每次采集20个枝条,6个枝条用于培养,观测芽休眠状态,剩余枝条用于生理生化指标和分子试验观测。
B(人工模拟低温条件结合需冷量测定时样品采集时间):一次性采集150个枝条,把采集回来的枝条放在4 ℃冰箱,做人工低温休眠处理;根据猕猴桃的具体需冷量进行了调整,采样时间以达到需冷量的需求为止;室内冷藏样品的取样时间为0、96、192、288、384、480、576、672、768、864、960、1 056 h,每次取出20条,6个枝条用于培养,观测芽休眠状态,剩余枝条用于生理生化指标和分子试验观测。
(2)用于生理生化与分子试验样品材料的采集
把用于生理生化及分子试验的枝条,在每次采样时把混合花芽从枝条上剥出后,立即投入液氮中冻干,保存于冷冻管,存放于-80 ℃冰箱(Thermo Fisher Scientific, USA)备用。猕猴桃的花芽为混合芽,通常花芽比较圆而粗,而叶芽的形状相对较为瘦长,采样时需要仔细辨别。取不同低温处理的猕猴桃枝条芽体组织0.1 g,液氮速冻后研磨,采用蒽酮比色法测定可溶性糖含量,以及碘比色法测定淀粉含量,具体参照Zhang等(2020)的方法进行。使用植物激素ELISA试剂盒(上海钰多生物科技有限公司,中国)测定ABA、GA、生长素吲哚乙酸(indoleacetic acid,IAA)等含量,操作按说明书进行。样品提取采用甲醇-水-冰乙酸(80∶19∶1,V/V/V)溶液,离心后取上清液进行检测(王晓霞等,2020);分别使用试剂盒(科铭生物科技有限公司,中国)测定猕猴桃休眠过程中超氧化物歧化酶(superoxide dismutase,SOD)和过氧化物酶(peroxidase,POD)的活性,所有测定均设3次生物学重复,数据取平均值。
1.2.2 猕猴桃芽休眠的转录组测序与分析
采用TRIzol®试剂(Invitrogen, USA)提取混合芽总RNA。经NanoDropTM 2000(Thermo Fisher Scientific, USA)测定OD260/280,Agilent 2100 Bioanalyzer(Agilent Technologies, USA)检测RNA完整性(RIN>7.0)后,构建mRNA文库,于Illumina NovaSeqTM 6000测序平台(Illumina Inc., USA)进行双端测序(150 bp)。原始数据经Trimmomatic(v0.39)质控后,比对至猕猴桃参考基因组(Actinidia chinensis v3.0, Phytozome database, https://phytozome.jgi.doe.gov)。采用StringTie(v2.2.1)计算基因表达量FPKM值,DESeq2(v1.34.0)进行差异表达分析(| log2Fold Change|>1, FDR<0.05)。GO功能注释与KEGG通路富集分析采用clusterProfiler(v4.2.2)R包完成(𝑃<0.05)。实验流程参照李晓艳等(2020)的方法。
1.3 数据处理
采用SPSS 26.0软件(IBM Corp., Armonk, NY, USA)对生理数据进行单因素方差分析(ANOVA),以及LSD法进行多重比较(𝑃<0.05)。图表使用Origin 2023(OriginLab Corporation, Northampton, MA, USA)及R语言(v4.3.0)的ggplot2包(v3.4.2)绘制。
2 结果与分析
2.1 革叶猕猴桃需冷特性确定
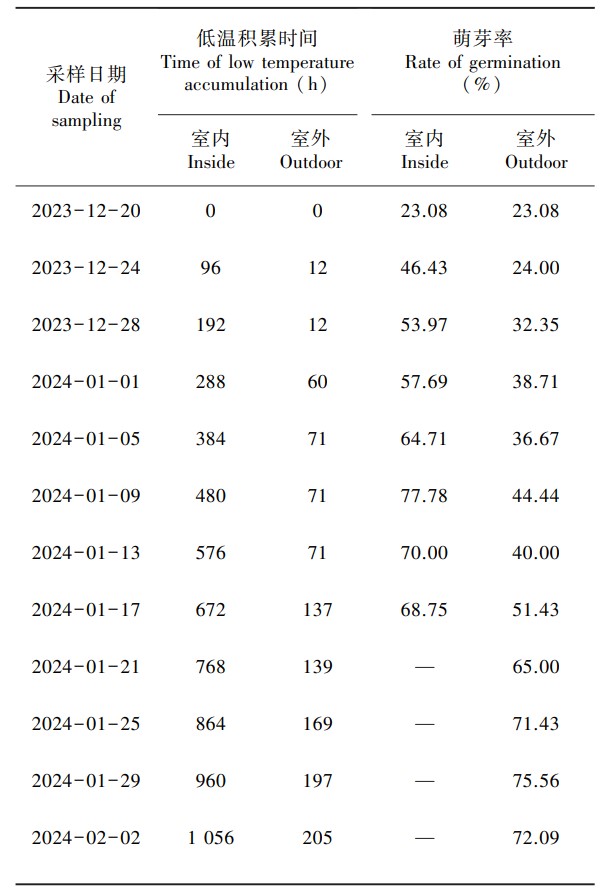
由表1可知,室内低温模拟处理后,革叶猕猴桃的萌芽率随冷量增加呈快速上升趋势,50%萌芽率对应的需冷量为192~288 h(<7.2 ℃),属于低需冷量类型,而田间自然条件下,因为暖冬,有效冷积温不足,休眠时间延长,50%萌芽率对应的需冷量为576~624 h(<7.2 ℃);均明显低于主流品种‘海沃德’(约1 000 h)(Zhao et al., 2017)。证明该种质具有适应暖冬气候的潜力。
表
1
革叶猕猴桃需冷量统计(0~7.2 ℃)
Table
1
Statistics on the chilling requirements of Actinidia rubricaulis var. coriacea(0-7.2 ℃)
2.2 休眠过程中生理代谢物质的动态变化规律
2.2.1 碳水化合物代谢动态
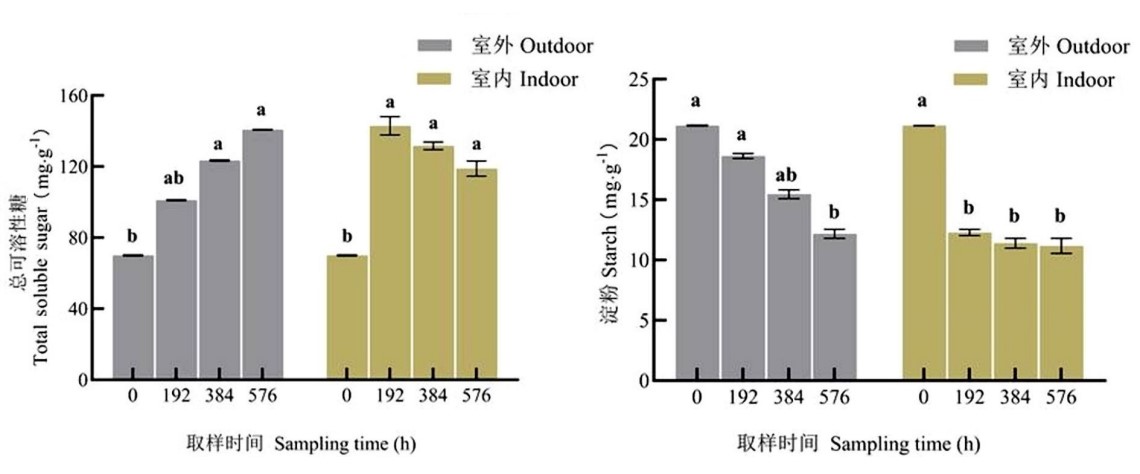
在革叶猕猴桃的休眠过程中,可溶性糖与淀粉含量呈现明显的阶段性变化规律。由图1可知,在休眠起始阶段,芽体内淀粉含量较高,而随着休眠进程的推进,淀粉逐渐降解并转化为可溶性糖,如蔗糖和葡萄糖等,至休眠解除阶段,可溶性糖含量约为初始阶段的2倍,而淀粉含量约下降至最初水平的一半。这种转化模式不仅为芽体提供了必要的能量储备,还通过糖信号调控相关基因表达,从而促进休眠解除。此外,可溶性糖的积累可能作为一种渗透调节物质,增强细胞对低温胁迫的耐受性,进一步支持了芽体在寒冷环境中的生存能力。
图
1
革叶猕猴桃休眠过程中花蕾含糖量的变化
Fig.
1
Changes of sugar contents in flower buds of Actinidia rubricaulis var. coriacea during dormancy
2.2.2 内源激素平衡的调控作用
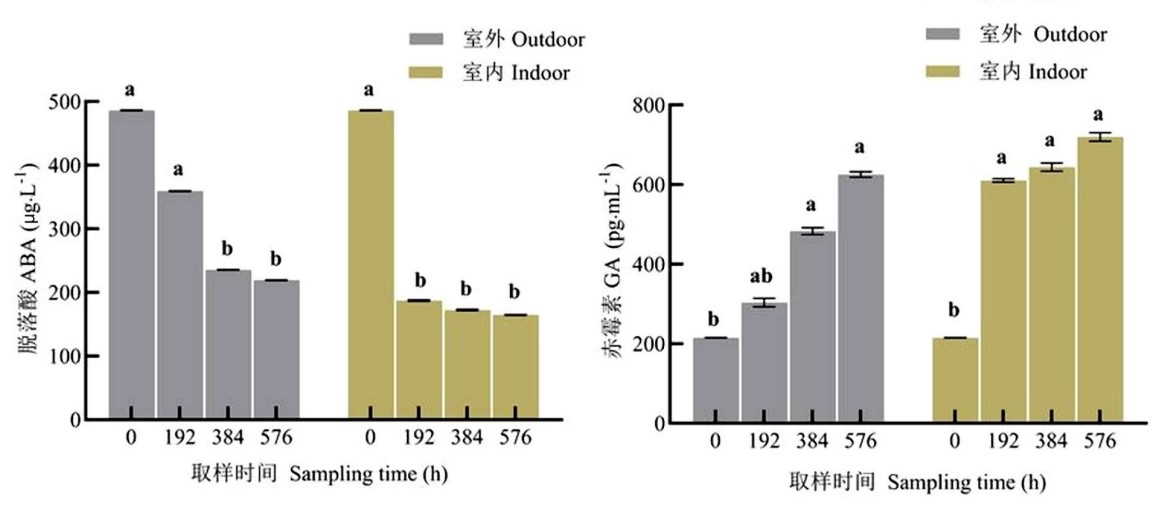
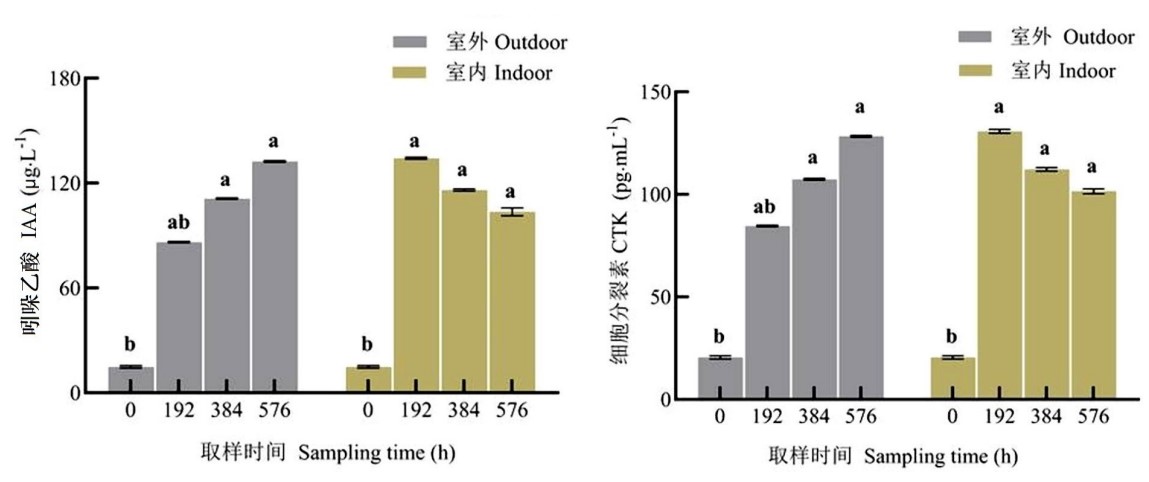
内源激素的动态平衡在革叶猕猴桃休眠解除过程中发挥了关键作用。由图2和图3可知,ABA、GA、IAA和细胞分裂素(cytokinin,CTK)4种主要激素的含量变化,其中ABA含量在休眠起始阶段最高,随后逐渐下降,由起始期的486.75 μg·L-1降至解除期的218.45 μg·L-1;而GA含量则呈现相反的趋势,由214.23 pg·mL-1升至614.75 pg·mL-1,在休眠解除阶段达到峰值。这种ABA与GA的动态平衡被认为是调控休眠解除的核心机制之一,ABA/GA比值从2.27降至0.36,比值的降低直接促进了芽体的萌发,是休眠解除的重要标志。此外,IAA含量在整个休眠过程中保持相对稳定,但其与ABA和GA的相互作用可能对激素信号转导网络产生了重要影响。例如,IAA可能通过调节生长素响应因子ARF的表达,间接影响ABA和GA的信号传递路径,从而协同调控休眠解除过程。这与Arc等(2013)的研究结果一致,ABA抑制萌发,GA促进萌发,二者动态平衡决定休眠状态。
图
2
革叶猕猴桃休眠过程中花芽脱落酸和赤霉素的含量变化
Fig.
2
Changes of ABA and GA contents in flower buds of Actinidia rubricaulis var. coriacea during dormancy
图
3
革叶猕猴桃休眠过程中花芽吲哚乙酸和细胞分裂素的含量变化
Fig.
3
Changes of IAA and CTK contents in flower buds of Actinidia rubricaulis var. coriacea during dormancy
2.2.3 抗氧化系统的响应
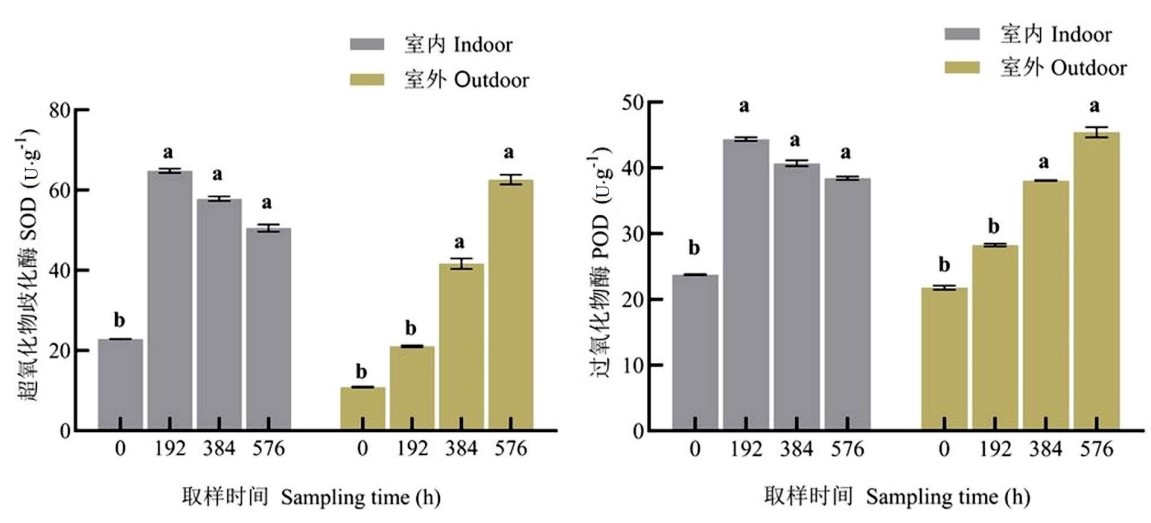
抗氧化系统在革叶猕猴桃应对低温模拟休眠过程中表现出显著的动态响应。本研究测定了SOD和POD的活性变化,图4结果显示,在休眠起始阶段,SOD和POD的活性显著升高,在休眠结束时达到顶峰,以清除细胞内过多的活性氧(reactive oxygen species,ROS),维持氧化还原平衡。上述结果表明,抗氧化酶系统的协同作用不仅有助于减轻低温胁迫引起的氧化损伤,而且还为芽体从休眠状态向萌发状态的过渡提供了必要的保护机制。
图
4
革叶猕猴桃休眠过程中花芽氧化还原酶含量变化
Fig.
4
Changes of redox enzyme contents in flower buds of Actinidia rubricaulis var. coriacea during dormancy
2.3 休眠解除过程中的转录组动态景观
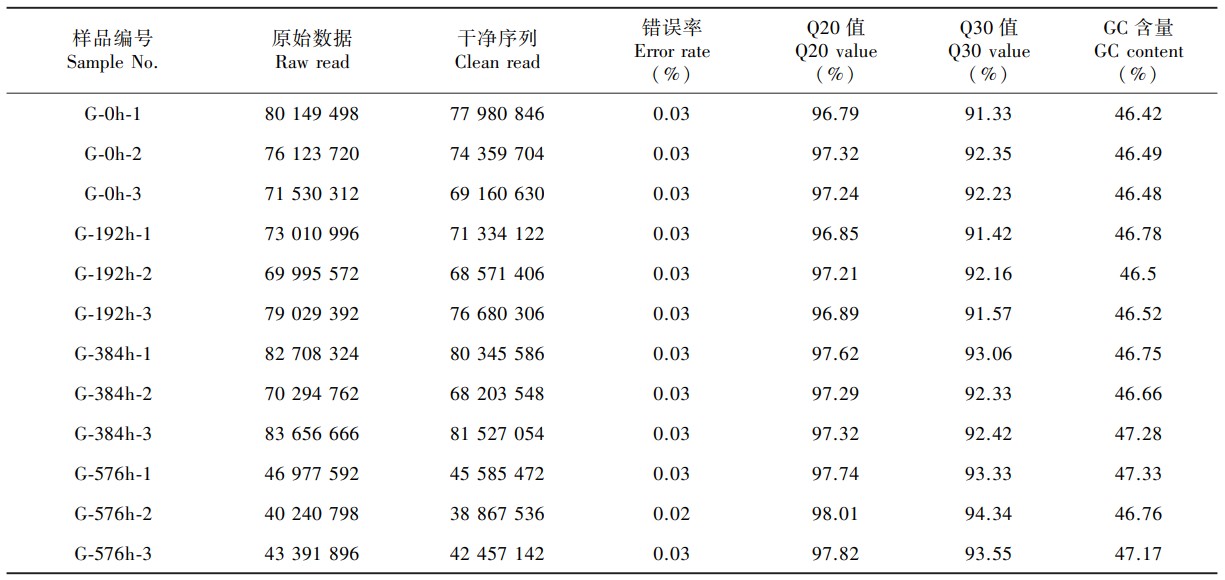
2.3.1 转录组测序及组装选取室内低温模拟休眠处理的4个不同发育时期的革叶猕猴桃样品开展转录组测序,共获得97.30 Gb的高质量干净数据。各单一样品的数据量均超过7.32 Gb,测序准确度良好,Q20值范围为96.79%~98.01%,Q30值范围为91.33%~94.34%,GC含量稳定在46.42%至47.33%之间。上述质控指标表明,测序数据质量可靠,符合后续生物信息学分析的要求(表2)。
表
2
转录组数据统计
Table
2
Statistics of transcriptome data
2.3.2 差异表达基因(DEGs)统计分析
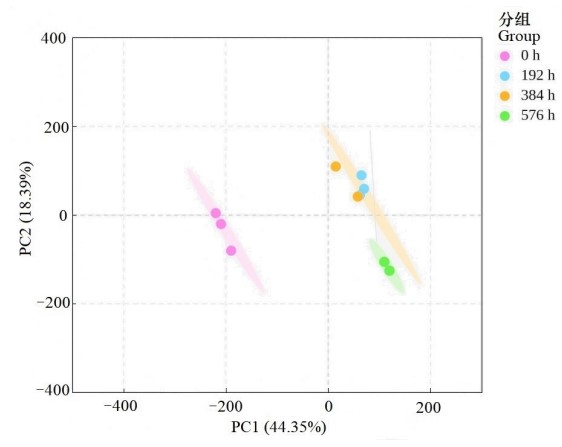
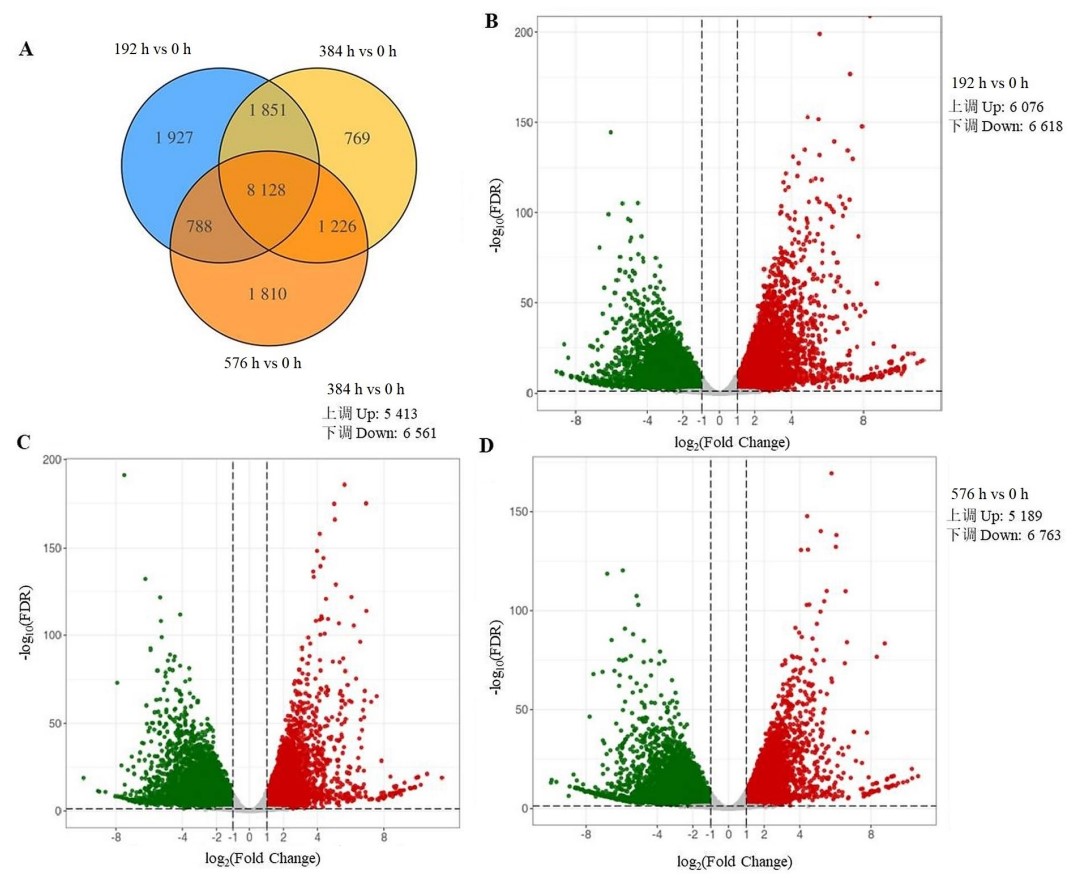
如图5所示,对室内低温模拟处理的革叶猕猴桃样本进行了主成分分析(principal component analysis,PCA),结果显示生物学重复间聚集紧密,表明组内样本一致性较高;而不同处理组之间分离明显,反映了较为显著的组间差异,验证了实验设计的合理性与可靠性。进一步对两两比较组间的DEGs进行韦恩图分析,在192 h vs 0 h、384 h vs 0 h和576 h vs 0 h 3个比较组中,分别鉴定出1 927个、769个和1 810个特异性表达基因(图6:A)。其中,192 h vs 0 h阶段的特异基因最多,高于其余2个时期,揭示在休眠起始阶段,革叶猕猴桃可能通过激活或抑制基因表达来响应低温胁迫。与此同时,3组比较发现,共同拥有的DEGs为8 128个,暗示这些基因为低温响应过程中的核心调控因子。
图
5
革叶猕猴桃低温休眠下转录组主成分分析
Fig.
5
PCA analysis of transcriptome of Actinidia rubricaulis var. coriacea under low-temperature dormancy
通过对各处理组与对照的DEGs进行火山图可视化分析,揭示了革叶猕猴桃在低温休眠过程的转录调控模式。在192 h vs 0 h比较组中,共鉴定出12 685个DEGs,其中6 067个基因上调表达,6 618个基因下调表达;384 h vs 0 h组检测到11 974个DEGs,包含5 413个上调基因和6 561个下调基因;而576 h vs 0 h组中,则观察到11 952个DEGs,其中上调基因为5 189个,下调基因达6 763个(图6:B-D)。这些数据表明,各比较组共有的DEGs可能构成了响应需冷量的核心调控网络,为解析革叶猕猴桃低温休眠的分子机制提供了关键线索。
图
6
革叶猕猴桃低温休眠下转录组韦恩图(A)和差异表达基因火山图(B、C、D)
Fig.
6
Venn diagram (A) of the transcriptome and volcano diagrams (Bꎬ Cꎬ D) of DEGs of Actinidia rubricaulis var. coriacea under low-temperature dormancy
2.3.3 差异表达基因GO功能富集分析
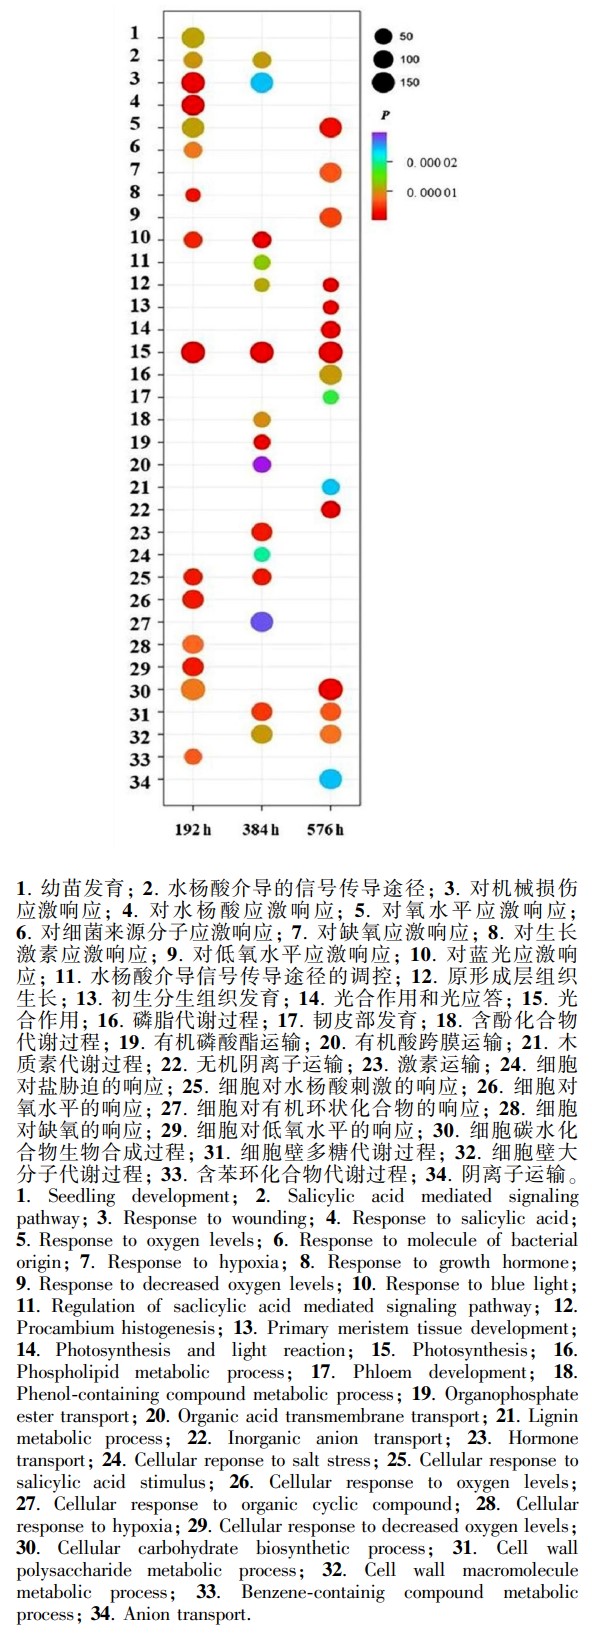
对192 h、384 h 和576 h DEGs的GO富集分析显示了富集的前34条通路(图7),192 h富集的基因主要涉及有机物合成运输过程、响应刺激和氧化还原过程,384 h富集基因最多的是能量代谢过程、激素代谢和糖等碳水化合物代谢过程,576 h富集基因最多的是细胞分裂、木质素代谢和糖等碳水化合物代谢过程,可能与木质素沉积增强芽体抗逆性有关。革叶猕猴桃DEGs多富集于生长发育过程。
图
7
GO富集分析
Fig.
7
GO enrichment analysis
2.3.4 差异表达基因(DEGs)KEGG富集分析
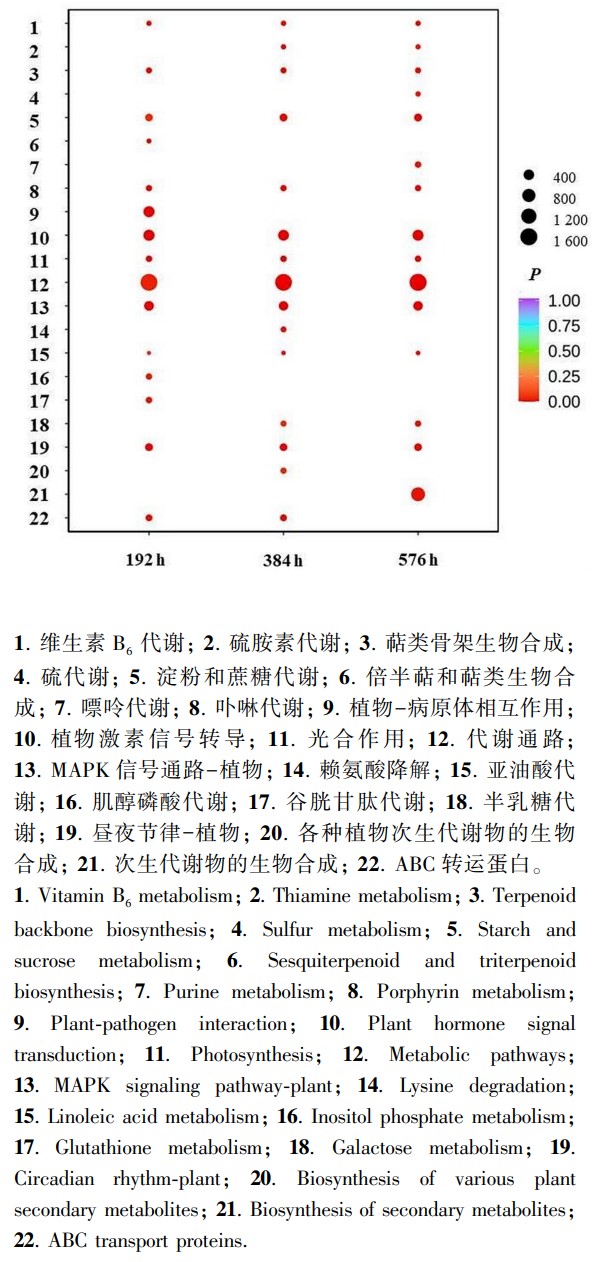
为在此基础上探究差异基因的生物学功能,分析差异基因响应低温休眠的代谢通路,对192 h、384 h和576 h差异表达基因进行了KEGG富集分析,图8显示革叶猕猴桃192 h、384 h和576 h共同的DEGs在KEGG数据库中共同富集到的10条通路,多为MAPK信号通路、淀粉和蔗糖代谢、植物激素信号转导通路。
图
8
KEGG 富集分析
Fig.
8
KEGG enrichment analysis
3 讨论与结论
3.1 革叶猕猴桃需冷量积累的生理基础
休眠是多年生果树在长期进化过程中形成的重要适应机制,通过内源调控暂时抑制生长,以规避冬季不利环境条件,确保在春季条件适宜时恢复生长。革叶猕猴桃在冬季虽保持部分叶片绿色,但其芽体依然进入内源性休眠状态且需要一定时间的低温刺激才能解除休眠(Lang et al., 1987;Horvath et al., 2003;Rohde & Bhalerao, 2007)。本研究表明,革叶猕猴桃的休眠解除是由碳代谢、激素调控和抗氧化系统三者的协同作用所推动,这一多系统交互网络构成了需冷量积累的生理基础(Atkinson et al., 2013)。
3.1.1 碳代谢系统与需冷量积累
碳代谢系统在革叶猕猴桃休眠解除过程中扮演着至关重要的角色。本研究结果显示,休眠开始时,芽体中淀粉含量较高,随着低温积累的持续,淀粉逐渐被水解为葡萄糖、果糖和蔗糖等可溶性糖。这一转化模式既为芽体提供了所需的能量支持,又通过糖信号调控基因表达,在此基础上推动休眠解除(Beauvieux et al., 2018;Falavigna et al., 2019)。可溶性糖的积累在增强芽体对低温胁迫的耐受性方面也发挥着重要作用,这表明碳代谢不仅是物质和能量的基础,也是调控休眠解除的重要信号通路(Yamaguchi, 2008)。与此同时,糖作为信号分子,在休眠解除过程中发挥了调节作用。Suzuki等(2012)研究表明,糖信号可通过调控转录因子和其他代谢途径与激素信号网络产生交互作用,共同调控芽体的休眠和生长过程。因此,碳代谢不同字母表示不同芽期之间的显著性差异(P<0.05)。下同的动态变化不仅为芽体提供了能量保障,还参与了对低温胁迫的生理适应。Different letters indicate significant differences among different bud stages(P<0.05). The same below.
3.1.2 激素系统对休眠解除的调控机制
植物激素在休眠调控中处于核心地位,尤其是脱落酸(ABA)和赤霉素(GA)。已有研究指出,ABA在休眠维持阶段的高浓度抑制了芽体的细胞分裂和生长,确保芽体处于休眠状态(Baxter et al., 2014;Mittler, 2017)。随着低温的积累,ABA的合成逐渐受抑,降解途径被激活,从而导致ABA含量下降。与此同时,GA的含量则随着冷量的积累明显上升。GA既促进细胞伸长和分裂,又通过激活相关的水解酶和结构蛋白的表达,推动休眠解除(Wall et al., 2008;Walton et al., 2009)。在革叶猕猴桃中,ABA/GA比值的变化是休眠解除的关键生理标志。随着ABA的下降和GA的上升,芽体从休眠状态过渡到生长状态,这一过程标志着休眠的解除。值得注意的是,IAA等其他植物激素也在此过程中发挥了辅助作用,它们通过与ABA和GA的相互作用,进一步调节激素信号的平衡,从而确保休眠解除的顺利进行(Arc et al., 2013)。
3.1.3 抗氧化系统在低温胁迫中的作用
低温既促进需冷量的积累,又可能引发活性氧(ROS)的产生,进而对细胞造成损伤。然而,适量的ROS可以作为信号分子,参与低温响应和休眠解除的调控。为了应对低温引起的氧化损伤(Wu et al., 2017),革叶猕猴桃的抗氧化系统通过增加抗氧化酶(如SOD、POD)的活性,维持细胞内的氧化还原平衡(McPherson et al., 2001;Brunner et al., 2014)。ROS与激素信号之间存在复杂的相互作用。过量的ROS会导致细胞损伤,但适量的ROS则能激活与休眠解除相关的信号通路。抗氧化系统不仅能保护芽体免受低温胁迫的损伤,而且还为激素信号通路的激活提供了必要的支持。因此,抗氧化系统在革叶猕猴桃的休眠解除过程中,既作为防御机制保护细胞免受损伤,又通过信号调节参与到整个休眠解除的调控网络中(Barba-Espín et al., 2022)。
3.1.4 三大系统的协同调控网络
总体而言,革叶猕猴桃的休眠解除是碳代谢、激素调控和抗氧化系统三者的协同作用结果。这三大系统通过糖信号、激素信号和氧化还原信号的相互作用,形成了一个多层次、动态的调控网络,确保了革叶猕猴桃在低温胁迫下能够在合适的时机解除休眠,恢复生长(Erez & Lavee, 1971;Mcpherson et al., 1997a, b)。
3.2 本研究与落叶猕猴桃及其他果树休眠机制的异同
常绿猕猴桃与落叶猕猴桃及其他果树在芽休眠机制上既有相似之处,又存在明显差异。总体而言,多年生果树的芽休眠过程通常包括3个阶段,即休眠诱导、维持和解除。休眠解除的调控机制核心在于环境信号(如低温、光周期)和内源性因素(如激素信号)的交互作用(Liu & Sherif, 2019;Yang et al., 2021)。这些信号通过调控激素平衡和关键转录因子(如DAM/SVP基因家族)的表达,决定了芽体的生长-停止-再生长周期。对于常绿猕猴桃而言,其休眠解除机制在多个方面与落叶猕猴桃和其他果树有所不同。常绿猕猴桃(如革叶猕猴桃)在冬季虽然保留部分叶片绿色,但其芽体依然进入内源性休眠状态且对低温的响应较为特殊。以下是革叶猕猴桃与落叶猕猴桃及其他果树在休眠机制上的主要异同:(1)低需冷量特性与冷量积累的差异,革叶猕猴桃具有较低的需冷量特性,相比于落叶猕猴桃需要更少的低温积累即可解除休眠。Zhao等(2017)研究指出,革叶猕猴桃在室内模拟低温下,50%萌芽率对应的需冷量为192~288 h(低于7.2 ℃),明显低于主流品种‘海沃德’约1 000 h。这一低需冷量特性使得常绿猕猴桃能够适应温暖冬季,减少由于低温不足引发的萌芽不齐等问题。相比之下,落叶猕猴桃(如‘海沃德’)通常依赖较高的冷量积累和较长时间的低温刺激来解除休眠。其休眠解除过程中,ABA的浓度逐渐下降,GA的含量上升,而这一过程需要长时间的低温累积才能满足其较高的需冷量要求(Luedeling et al., 2011)。(2)激素响应机制的差异,在革叶猕猴桃的休眠解除过程中,ABA/GA比值的变化表现出较为迅速的动态转变。在休眠维持阶段,ABA含量较高,随着低温积累的持续,ABA逐渐降低,而GA显著上升。这种变化促使芽体尽早从休眠状态过渡到生长状态,表明了常绿猕猴桃在低需冷量环境中的适应性(Arc et al., 2013)。与此不同,落叶猕猴桃的休眠解除通常伴随ABA的缓慢下降且休眠解除的时间跨度较长。在落叶猕猴桃中,ABA持续下降直至冷量满足,GA的升高则相对较为平缓,DAM/SVP类转录因子的高表达与ABA的维持协同作用,共同保持休眠状态,直到低温积累到足够程度后,才会解除休眠(Falavigna et al., 2019)。(3)抗氧化系统的响应与适应性差异,低温胁迫会导致ROS的积累,进而对细胞造成氧化损伤。革叶猕猴桃通过增强抗氧化酶(如SOD、POD)的活性来应对低温胁迫,维持细胞内的氧化还原平衡。这一过程既有助于保护细胞免受低温引起的损伤,又为休眠解除提供了必要的保护(McPherson et al., 2001)。落叶果树在低温下的抗氧化系统响应较为复杂,通常伴随较长时间的低温积累与抗氧化酶活性的逐渐增强。相比之下,常绿猕猴桃由于低需冷量的特性,其抗氧化系统的响应速度较快,并且能够在较短的时间内实现有效的抗氧化保护,帮助芽体更快地从休眠状态恢复生长(Brunner et al., 2014)。(4)本研究与落叶猕猴桃及其他果树休眠机制的异同,休眠解除的生态适应性,革叶猕猴桃的低需冷量特性使其能够在温暖冬季环境中维持较为稳定的生长周期,减少因寒冬不足带来的生产风险。相比之下,落叶猕猴桃和其他高需冷量的果树品种则可能因低温不足而导致休眠解除延迟和萌芽不齐等问题,影响产量和品质(Wang et al., 2020;Pan et al., 2021;Ye et al., 2022)。
通过以上对比,可以看出常绿猕猴桃在休眠机制上具有与落叶猕猴桃及其他果树显著的差异。这些差异主要体现在需冷量、激素响应、抗氧化系统以及整体的生态适应性上。这种差异正是适应不同气候带(温带-亚热带)的遗传与生理基础,革叶猕猴桃的低需冷量特性使其能够适应温暖冬季环境,进而在气候变暖的背景下具有重要的栽培潜力和育种价值。这为在此基础上通过革叶猕猴桃的遗传改良,解决全球气候变暖所带来的“低冷量困境”提供了理论依据和实践指导(Nazir et al., 2024;Asadi et al., 2024)。