


Page 15 - 《广西植物》2026年第9期
P. 15
9 期                阎侃等: 老虎刺叶绿体基因组解析及其对豆科新分类系统的验证                                          1 4 5 1

                                                          续表 2
                                                    低 ENC 组                  高 ENC 组
                                                  Low ̄ENC group             High ̄ENC group
                   氨基酸             密码子
                                                                                                   ΔRSCU
                  Amino acid       Codon
                                                数量                       数量
                                                            RSCU                     RSCU
                                               Number                   Number
                                    CAG          5          0.434 8       35         0.598 3      -0.163 5
                  精氨酸 Arg          AGA∗          25         2.272 7       67         1.942 0       0.330 7
                                    AGG          5          0.454 5       32         0.927 5      -0.473 0
                                   CGA∗          19         1.727 3       50         1.449 3       0.278 0
                                    CGC          3          0.272 7       13         0.376 8      -0.104 1
                                    CGG          3          0.272 7       20         0.579 7      -0.307 0
                                    CGU          11         1.000 0       25         0.724 6       0.275 4
                  丝氨酸 Ser           AGC          5          0.379 7       14         0.281 9       0.097 8
                                    AGU          14         1.063 3       51         1.026 8       0.036 5
                                   UCA∗          22         1.670 9       63         1.268 5       0.402 4
                                    UCC          7          0.531 6       57         1.147 7      -0.616 1
                                    UCG          11         0.835 4       32         0.644 3       0.191 1
                                    UCU          20         1.519 0       81         1.630 9      -0.111 9
                  苏氨酸 Thr           ACA          17         1.283 0       49         1.420 3      -0.137 3
                                    ACC          12         0.905 7       27         0.782 6       0.123 1
                                    ACG          3          0.226 4       18         0.521 7      -0.295 3
                                   ACU∗          21         1.584 9       44         1.275 4       0.309 5
                  缬氨酸 Val          GUA∗          21         1.500 0       39         1.300 0       0.200 0
                                    GUC          9          0.642 9       17         0.566 7       0.076 2
                                    GUG          5          0.357 1       26         0.866 7      -0.509 6
                                   GUU∗          21         1.500 0       38         1.266 7       0.233 3
                  色氨酸 Trp           UGG          23         1.000 0       54         1.000 0       0
                  酪氨酸 Tyr           UAC          4          0.266 7       22         0.382 6      -0.115 9
                                   UAU∗          26         1.733 3       93         1.617 4       0.115 9
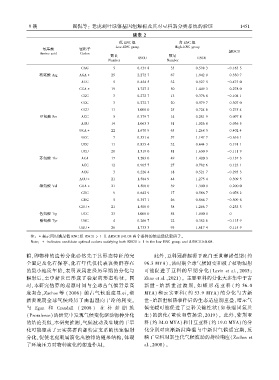
              注: ∗表示同时满足低 ENC 组 RSCU > 1 且 ΔRSCU≥0.08 两个条件的候选最优密码子ꎮ
              Note: ∗ indicates candidate optimal codons satisfying both RSCU > 1 in the low ENC group and ΔRSCU≥0.08.

            辑ꎬ即物种的遗传分化必然先于其形态特征的完                                  此外ꎬ豆科冠群起源于晚白垩世赛诺曼期( 约
            全固定及化石保存ꎬ化石年代仅代表该类群存在                              96.3 MYA)ꎬ该时期全球气候剧变和被子植物辐射
            的最小地质年龄ꎬ表明该属在经历早期的分化与                              可能促进了豆科的早期分化( Lavin et al.ꎬ2005ꎻ
            辐射后ꎬ至中新世已形成了稳定的形态特征ꎮ 同                             Zhao et al.ꎬ2021)ꎮ 主要亚科的分化大多集中于古
            时ꎬ本研究估算的起源时间与全球古气候背景高                              新世 - 始 新 世 过 渡 期ꎬ 如 蝶 形 花 亚 科 ( 约 56. 0
            度契合ꎬZachos 等 (2008) 的古气候重建显示ꎬ渐                     MYA) 和云实亚科( 约 53.9 MYA) 的分化与古新

            新世晚期全球气候经历了由温湿向干冷的剧变ꎮ                              世-始新世极热事件后的生态适应期重叠ꎬ暗示气
            与 Egan 和 Crandall ( 2008 ) 在 补 骨 脂 族               候变暖可能促进了豆科关键性状( 如根瘤固氮共
            (Psoraleeae)的研究中发现气候变化驱动物种分化                       生)的演化( 董汝和曹扬荣ꎬ2019)ꎮ 此外ꎬ紫荆亚
            的结论类似ꎬ本研究推测ꎬ气候波动及生境的干旱                             科(约 34.0 MYA)和甘豆亚科(约 19.0 MYA)的分
            化可能驱动了云实类群内部特定支系的快速辐射                              化分别对应渐新世降温与中新世气候适宜期ꎬ反
            分化ꎬ促使老虎刺属演化出独特的翅果结构ꎬ体现                             映了豆科对新生代气候波动的持续响应( Zachos et
            了环境压力对物种演化的塑造作用ꎮ                                   al.ꎬ2008)ꎮ

